
Габитус молодых особей Quercus robur L. (Fagaceae) вблизи памятника природы «Сосновые насаждения у с. Плеханы» (Саратовское Заволжье)
Журнал: Фиторазнообразие Восточной Европы @phytodiveuro
Статья в выпуске: 3 т.20, 2026 года.
Бесплатный доступ
С позиций модульной организации исследован габитус особей прегенеративных и молодых генеративных особей Quercus robur в культурах, граничащих с памятником природы «Сосновые насаждения у с. Плеханы» (граница Марксовского и Балаковского районов Саратовской области). Изучено 147 особей, произрастающих в дубовых, сосновых, березовых и смешанных насаждениях различной сомкнутости. У молодых деревьев измерены значения морфометрических параметров и установлен календарный возраст. Проанализированы набор жизненных форм (ЖФ) и строение кроны на уровне ствола, ветвей 1-го и 2-го порядков с учетом их направления роста, нарастания и ветвления. Примерно поровну представлены особи одноствольной и порослеобразующей ЖФ. У особей второй ЖФ от основания ствола отходят дополнительные слаборазвитые стволики. У большей части особей они отмерли на момент наблюдения. У единичных особей дополнительные стволики смогли сформировать собственную крону и сохранить жизнеспособность. Выявлено три типа строения кроны. Первый тип – с ортотропным стволом и восходящими ветвями, которые отходят как по одной, так и ярусами, включающими разное число ветвей. Второй тип – с ортотропным стволом и значительной ролью плагиотропных ветвей. Для второго типа выделены варианты в зависимости от соотношения между плагиотропными и восходящими ветвями и их вертикальным распределением вдоль ствола. Третий тип – со стволом, меняющим направление роста от ортотропного к косо-наклонному и далее вплоть до плагиотропного. Направление роста ветвей зависит от расположения на соответствующей части ствола. В тех местообитаниях, в которых верхняя часть кроны не затеняется, абсолютно преобладают особи первого типа. В сосновых и березовых культурах совокупная доля особей второго и третьего типов выше, чем особей первого типа.
Короткий адрес: https://sciup.org/148334100
IDS: 148334100 | УДК: 581.44/.52+582.632.2 | DOI: 10.24412/2072-8816-2026-20-3-184-195
Habitus of young specimens of Quercus robur L. (Fagaceae) near the pine forests near Plekhany natural monument (Saratov Trans-Volga region)
The habitus of pregenerative and young generative Quercus robur specimens in plantations near the Pine Forests near Plekhany natural monument (on the border of the Marks and Balakovo districts of the Saratov region) was studied from a modular organization perspective. A total of 147 specimens, growing in oak, pine, birch, and mixed stands of varying density, were examined. Morphometric parameters were measured in young trees, and their calendar age was determined. The life form (LF) set and crown structure were analyzed at the trunk level, as well as first- and second-order branches, taking into account their growth direction, growth, and branching. Single-trunk and coppice-forming LF specimens were represented approximately equally. In specimens of the second LF, additional, poorly developed stems extend from the trunk base. In most specimens, these stems had died off by the time of observation. In a few individuals, additional stems were able to form their own crown and maintain viability. Three types of crown structure were identified. The first type has an orthotropic trunk and ascending branches that extend either singly or in tiers comprising varying numbers of branches. The second type has an orthotropic trunk and a significant role for plagiotropic branches. For the second type, variants were identified depending on the ratio between plagiotropic and ascending branches and their vertical distribution along the trunk. The third type has a trunk that changes growth direction from orthotropic to oblique and further to plagiotropic. The direction of branch growth depends on the location on the corresponding part of the trunk. In habitats where the upper part of the crown is not shaded, individuals of the first type are absolutely predominant. In pine and birch stands, the combined proportion of individuals of the second and third types is higher than that of individuals of the first type.
Текст научной статьи Габитус молодых особей Quercus robur L. (Fagaceae) вблизи памятника природы «Сосновые насаждения у с. Плеханы» (Саратовское Заволжье)
Популяции растений в краевых частях ареалов подвергаются более жесткому воздействию абиотических факторов по сравнению с зонами оптимума своего произрастания. Особенно явно это проявляется на уровне габитуса особей. Исследования его трансформаций под действием абиотического стресса позволяет точнее установить пределы экологической толерантности и диапазон пластичности видов. Для дуба черешчатого ( Quercus robur L.) один из участков юговосточной границы ареала указывается в Саратовском Заволжье (Lositskiy, 1981). Естественные насаждения Q. robur здесь представлены в основном пойменными, изредка байрачными лесами (Priroda, 1941; Landshaftnoe, 2019). Основной массив дубрав естественного происхождения на надпойменных террасах расположен на Приерусланских песках (Kudryavtsev, 2024). Аутэкология вида в данном физико-географическом регионе изучена недостаточно:
исследованы преимущественно таксационные характеристики древостоев и прирост деревьев в высоту (Mashtakov, Sadykov, 2020). Данные о наборе жизненных форм (ЖФ) и строении кроны с точки зрения модульной организации живых организмов (Marfenin, 1999) у особей Q. robur для данной части ареала отсутствуют. В связи с этим цель нашей работы – анализ организации ЖФ и побеговых систем у молодых особей Q. robur в лесных культурах Саратовского Заволжья на примере ближайших окрестностей памятника природы «Сосновые насаждения у с. Плеханы».
Материалы и методы
Исследования проведены на границе Марксовского и Балаковского районов Саратовской области в июне 2023 г. (рис. 1). Согласно ландшафтному районированию, территория относится к провинции низменно-равнинного степного Сыртового Заволжья, к Волжскому террасовому центральному ландшафтному району южной полосы типичной степи (Landshaftnoe, 2019). Памятник природы приурочен ко второй надпойменной террасе р. Волга. Высоты н.у.м. – 20–22 м. В ближайшем к району исследований г. Балаково средние температуры января и июля, а также среднегодовое количество осадков за период 2015–2025 гг. составляют -8.7° С, 22.7° С и 436 мм соответственно (Pogoda, 2026). Почвообразующими породами являются супеси, пески и легкие суглинки; почвенный покров состоит из комплекса черноземов южных и темно-каштановых почв. В ООПТ представлены разновозрастные насаждения Pinus sylvestris L., Betula pendula Roth, Robinia pseudoacacia L., Q. robur и другие. Самые старые сосновые культуры заложены в начале ХХ в. Травяно-кустарничковый ярус в сосняках образован степными и рудеральными видами, местами с парцеллами из Convallaria majalis L. и Polygonatum odoratum (Mill.) Druce. Пространства между лесными культурами заняты нарушенной разнотравно-молочайно-злаковой степью.
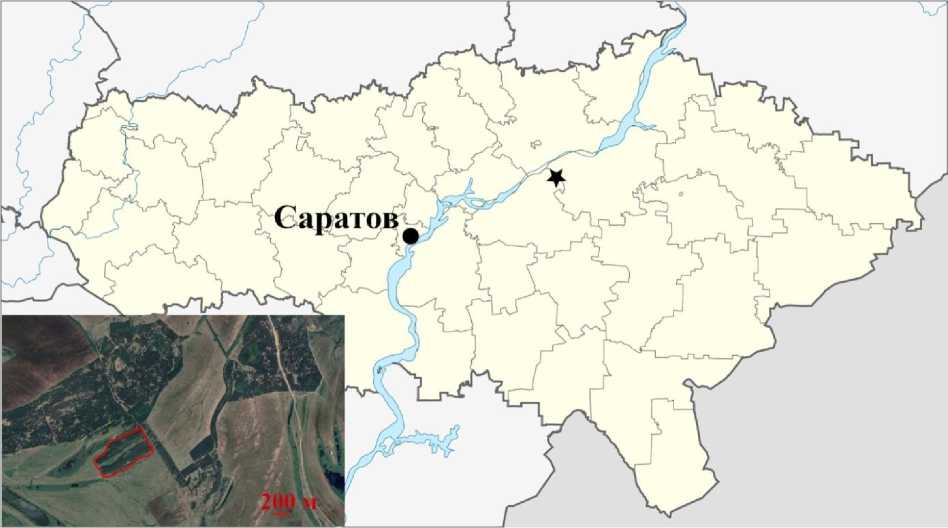
Рис. 1 . Территория исследований. Звездочкой показано расположение памятника природы «Сосновые насаждения у с. Плеханы. На врезке – космоснимок ООПТ. Красной линией обведены изученные местообитания Quercus robur
Fig. 1 . Research area. The location of the Pine Forests near Plekhany natural monument is indicated by an asterisk. The inset shows a satellite image of the protected area. The red line outlines the studied Quercus robur habitats
Объектом исследования выступили особи Q. robur в культурах. Деревья учитывали маршрутным методом, двигаясь по зигзагообразной траектории в пределах оконтуренного участка (врезка на рис. 1). Все исследованные особи не имеют заметных следов поражения грибковыми или бактериальными инфекциями, а также филлофагами, по крайней мере, в пределах живой части кроны.
Исследования проведены в следующих местообитаниях:
-
1. Солитеры или группы по 2–3 дерева (в том числе с присутствием R. pseudoacacia ) в сильно изреженных посадках. Расстояние до ближайших особей Q. robur в том же ряду или в параллельных рядах варьирует в диапазоне 5–50 м, а до соседних сосновых, березовых или смешанных культур – 5–20 м (рис. 2А).
-
2. Локусы Amelanchier spicata (Lam.) K. Koch. Особи Q. robur произрастают по границе локусов кустарника. Локусы A. spicata затеняют молодые деревья Q. robur до высоты 1–2 м (рис. 2Б).
-
3. Опушки сосновых, березовых и смешанных культур. Часть ветвей и нижняя зона ствола у особей Q. robur может частично затеняться кронами P. sylvestris и B. pendula (рис. 2В).
-
4. Окна площадью 20–60 м2 в дубовых, березово-дубовых и робиниево-дубовых культурах. Изучены деревья, растущие по краям окон (рис. 2Г).
-
5. Сосновые и березовые культуры. Деревья Q. robur растут в рядах среди особей P. sylvestris или B. pendula (рис. 2Д, 2Е). Во втором случае расстояние между стволами Q. robur и B. pendula может составлять менее 1 м.
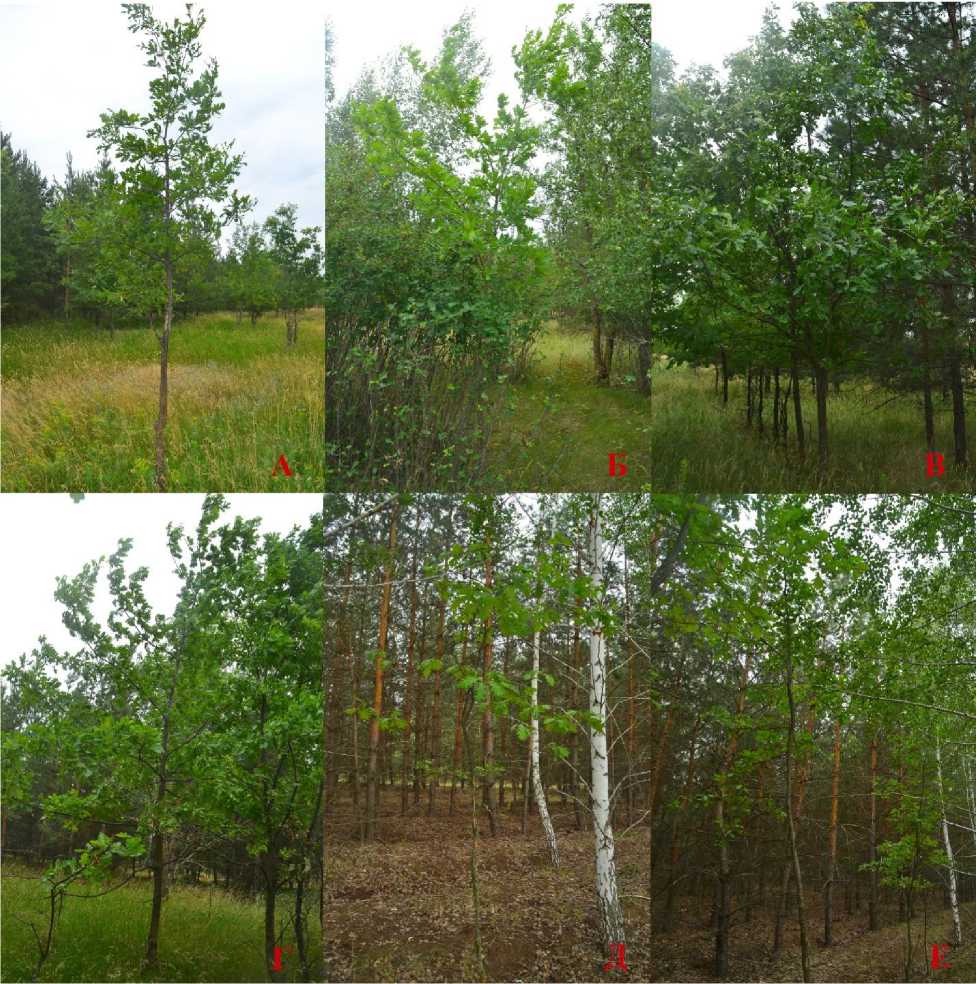
Рис. 2 . Местообитания Quercus robur (буквенные обозначения см. в тексте)
Fig. 2 . Quercus robur habitats (see text for letter designations)
Верхняя часть кроны, включая верхушки ствола или замещающих его осей, полностью освещена в местообитаниях 1–4 и частично затенена в местообитании 5.
Всего исследовано 147 особей (табл.)
Таблица. Распределение особей Quercus robur по местообитаниям
Table. Distribution of Quercus robur individuals by habitat
|
Местообитание |
Число особей |
|
1 |
35 |
|
2 |
8 |
|
3 |
27 |
|
4 |
55 |
|
5 |
22 |
У каждой особи установлено онтогенетическое состояние (Chistyakova, 1989), определен календарный возраст и измерена высота. Изучены особи имматурного, виргинильного и молодого генеративного состояний до 10 м в высоту. У пяти особей в каждом местообитании измерены диаметр ствола на высоте груди (1.3 м), радиус кроны по четырем направлениям и несколько верхних приростов ствола и крупных ветвей 1-го порядка. Все особи сфотографированы. У всех особей проанализированы основные особенности организации кроны: число стволов и сила их развития, направление роста, нарастание и характер ветвления ствола, ветвей 1-го и 2-го порядков, соотношения между стволом, ветвями и высотными зонами кроны. В качестве минимальной единицы строения кроны использована двулетняя побеговая система (ДПС) в понимании И.С. Антоновой с соавт. (Antonova, Fatianova, 2016). Определен набор жизненных форм (ЖФ) в соответствии с классификацией О.В. Смирновой с соавт. (Diagnozy, 1989). Отдельно от ЖФ рассмотрены структурные особенности ствола и живых ветвей с выделением типов кроны.
Результаты и обсуждение
Морфометрические характеристики особей Q. robur . Высота виргинильных и молодых генеративных особей в местообитаниях 1–4 составляет 2.5–5 м и 3.5–6.5 м соответственно. Высота единственной имматурной особи второй подгруппы в местообитании 5 – 1.7 м, а виргинильных особей – 3–5 м.
Диаметр ствола у виргинильных особей составляет 1.7–3 см, а у молодых генеративных особей – 2.5–5 см (у единичных наиболее крупных деревьев – 8–10 см).
Радиус кроны в местообитаниях 1–4 – 1–1.7 м, у отдельных молодых генеративных особей – до 2–3 м. В местообитании 5 радиус кроны у имматурной особи – 0.3–0.6 м, у виргинильных особей – 0.5–1.2 м.
У 67–87% особей в местообитаниях 1–4 и у 45% особей в местообитании 5 живая крона составляет от 2/3 до ¾ высоты всего дерева. У большинства оставшихся особей граница прикрепления кроны находится примерно в середине ствола. У единичных особей первые живые ветви отходят от нижней четверти ствола.
Имматурная особь в местообитании 5 достигла возраста 17 лет, виргинильные особи – 12– 17 лет, молодые генеративные – 12–25 лет. В местообитаниях 1–4 15–30% молодых генеративных особей начинают плодоносить в возрасте до 15 лет.
Длины годичных приростов ствола и наиболее крупных ветвей 1-го порядка (прежде всего восходящих) в местообитаниях 1–4 составляют 30–60 см (иногда до 80 см). В верхней части кроны на стволе и крупных ветвях регулярно образуются по два элементарных побега за сезон.
Жизненные формы особей Q. robur. Примерно равные доли особей принадлежат к одноствольной и порослеобразующей ЖФ. Выявлена одна особь немногоствольной ЖФ с двумя равнозначными стволами. У особей порослеобразующей ЖФ от основания ствола отходят 1–4 саблевидных или ортотропных стволика, как правило, не превышающих по высоте или длине 1 м (рис. 3А). Они нарастают симподиально, образуя отдельные петлеобразные и вильчатые структуры, при этом редко ветвятся. На момент наблюдения стволики засохли. У единичных особей высота стволов достигает 2 м, и они продолжают расти. Живые стволики направлены под углом 10–45° и могут несколько лет нарастать моноподиально. В дистальной части отдельные крупные дополнительные стволики ветвятся (рис. 3В). У 63% всех исследованных особей, независимо от ЖФ, в нижней части ствола, ниже границы прикрепления живой кроны, сохраняются остатки 1–5 (до 9–10) плагиотропно-саблевидных и восходящих ветвей длиной 0.5–0.8 м (рис. 3Б). Ветви, растущие горизонтально, чаще перевершиниваются и образуют петлеобразные структуры, иногда раздваиваются или разделяются на 3–4 мелкие замещающие оси. Дополнительные стволики развиваются из спящих почек в основании основного ствола. Слабые сухие ветви в нижней части ствола имеют как первичное, так и вторичное происхождение. У отдельных особей нижняя часть ствола несет непрерывный комплекс из живых и отмерших первичных и вторичных побеговых систем (рис. 3Г).
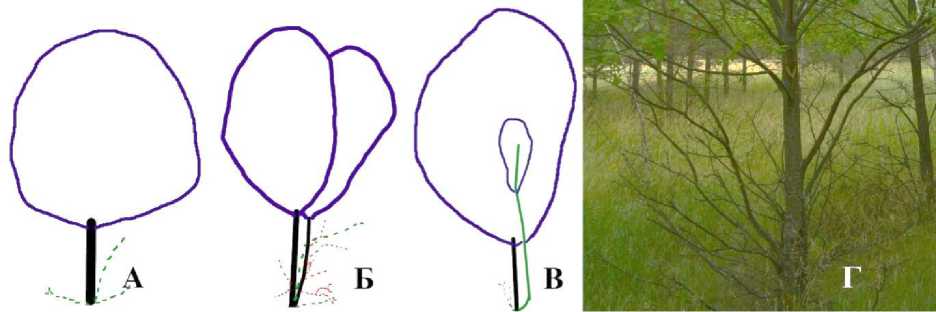
Рис. 3 . Побеговые системы в нижней части ствола у виргинильных и молодых генеративных особей Quercus robur , относящихся к порослеобразующей жизненной форме. Черным цветом показан ствол, синим цветом обведена граница живой кроны. Зеленым цветом показаны дополнительные стволики, красным – сухие ветви. Сплошные линии обозначают живые оси, прерывистые – отмершие. А – только отмершие дополнительные стволики. Б – Два основных ствола, отмершие дополнительные стволики и сухие ветви. В – отмерший и живой дополнительные стволики. Г – фрагмент нижней части ствола с отмершими и живыми побеговыми системами. Высота особей А–В – 3 м.
Fig. 3 . Shoot systems in the lower part of the trunk of virginal and young generative Quercus robur specimens belonging to the coppice-forming life form. The trunk is shown in black, and the border of the living crown is outlined in blue. Additional stems are shown in green, and dead branches in red. Solid lines indicate living axes, and dashed lines indicate dead ones. A – Only dead additional stems. B – Two main trunks, dead additional stems, and dead branches. B – Dead and living additional stems. G – A fragment of the lower part of the trunk with dead and living shoot systems. Height of specimens A–B is 3 m.
Структурная организация кроны особей Q. robur . Ранее для систематизации способов организации кроны Q. robur нами была предложена типология, основанная на направлении роста и соотношениях между крупными осями (Stamenov, 2024). В ООПТ «Сосновые насаждения у с. Плеханы» были выявлены три из четырех ранее описанных типов. В пределах типа наблюдается определенная вариабельность, связанная с особенностями строения и расположения ветвей 1-го порядка. Перечислим типы конструкции кроны и их основные особенности.
Первый тип
Ствол растет вертикально вверх. Ствол и ветви 1-го порядка нарастают неустойчиво-моноподиально. У большинства особей ствол хотя бы один раз раздваивается (рис. 4Б, 4В). У единичных особей ствол разделяется на дочерние замещающие оси по три раза. Наиболее крупные ветви 1-го порядка развиваются из почек верхней части материнского побега ДПС. Эти ветви отходят от ствола по одной, парами, ярусами по 3–7 (рис. 4). Почки, расположенные ниже, могут давать начало 1–3 более тонким и коротким ветвям, зачастую растущим плагиотропно или в форме слабовыпуклого свода. У 15–20% особей в местообитаниях 1–4 и у 60% особей в местообитании 5 крона образована одиночно отходящими ветвями и отдельными парными ветвями 1-го порядка (рис. 4А). У остальных особей на стволе образуется хотя бы один ярус с 3–4 крупными ветвями (рис. 4Б, 4В). Большее число ветвей в ярусе – достаточно редкое явление. Такие многопобеговые ДПС чаще приурочены к нижней части ствола (рис. 4В).
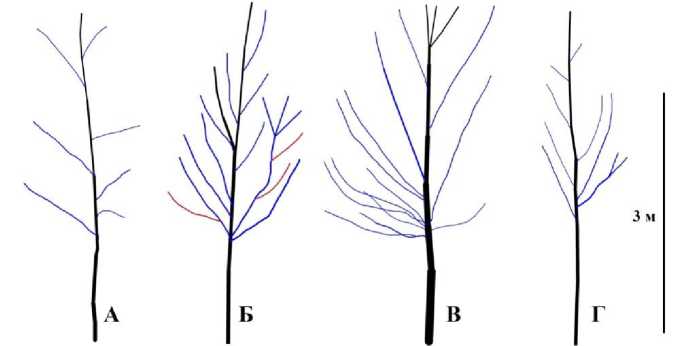
Рис. 4 . Первый тип строения кроны у виргинильных и молодых генеративных особей Quercus robur . Черным цветом показан ствол, синим цветом – ветви 1-го порядка, красным цветом – наиболее крупные ветви 2-го порядка. Оси, замещающие ствол после его разделения, также обозначены черным цветом. А – ветви отходят от ствола нерегулярно и по одной. Б – ярусы из 2–3 ветвей. В – ярус более чем из пяти ветвей в нижней части ствола, нижние ветви длительно растут плагиотропно. Г – близкие к ортотропным ветви отходят от ствола по 1–2.
Fig. 4 . The first type of crown structure in virginal and young generative Quercus robur specimens. The trunk is shown in black, first-order branches in blue, and the largest second-order branches in red. The axes replacing the trunk after its division are also shown in black. A – branches arise irregularly and singly from the trunk. B – tiers of 2–3 branches. C – tier of more than five branches in the lower part of the trunk, the lower branches grow plagiotropically for a long time. D – branches close to orthotropic arise from the trunk 1–2 at a time.
Примерно у 20% особей крона дифференцирована на две основные высотные зоны: более короткую из плагиотропных ветвей и более длинную из растущих косо вверх ветвей (часто дугообразно-саблевидной формы с базальным плагиотропным участком) (рис. 4В). Плагиотропные ветви обычно слабее и короче восходящих. Чем позднее в онтогенезе заложена ветвь, т.е. чем выше она расположена на стволе, тем быстрее она переходит к восходящему росту. Крона остальных особей образована растущими по диагонали вверх ветвями, начиная с нижней границы живой кроны (рис. 4А, Б, Г). У 10% особей одна или несколько ветвей отходят от ствола под очень острым углом (менее 25–30°) и по протяженности составляют не менее 30– 50% от общей высоты ствола (рис. 4Б). Примерно у 5% особей, в основном, в местообитании 4, ветви наиболее мощного яруса отходят вверх в виде веника, значительно опережая по силе развития остальные ветви кроны. У отдельных особей в местообитании 2 «скелет» кроны построен ярусом из нескольких ортотропных ветвей, обычно не превышающих половины высоты кроны. Остальные ветви 1-го порядка гораздо тоньше и короче, что придает кроне несколько «кипарисовидную» форму (рис. 4Г).
Наиболее крупные ветви 2-го порядка отмечены у отдельных особей (прежде всего в местообитаниях 1 и 4), крона которых включает мощные ортотропные ветви 1-го порядка (рис. 4Б). В этом случае длина ветвей 2-го порядка составляет до 30–50% от длины материнской ветви. На одну ортотропную ветвь 1-го порядка приходится по 1–3 крупных ветви 2-го порядка. Они нарастают неустойчиво-моноподиально, как и материнские ветви. У ряда особей в местообитании 3 на растущих в сторону более освещенного пространства восходящих ветвях 1го порядка также образуются по 1–2 довольно длинных ветви 2-го порядка. Однако у большинства особей в местообитаниях 1–4 ветви 2-го порядка не превышают 10–30% от длины ветви 1-го порядка. На ДПС крупной восходящей ветви 1-го порядка формируется по 1–5
средних и слабых по развитию ветвей 2-го порядка. Эти ветви состоят из годичных побегов короче 15 см и чаще перевершиниваются.
Второй тип
Ствол также растет ортотропно, нарастая неустойчиво-моноподиально. У одной особи ствол раздваивается в верхней части. Однако, по сравнению с предыдущим типом, значительную роль в захвате горизонтального пространства вокруг ствола играют крупные плагиотропные ветви 1-го порядка, нарастающие либо неустойчиво-моноподиально, либо симподиально. Они отходят по одной или по две из почек верхней части материнского побега ДПС (редко – по 2– 4). Исходя из пространственных отношений между плагиотропными и восходящими ветвями, в пределах типа различаются три варианта:
Рис. 5 . Второй (А, Б, Г) и третий (В) типы строения кроны у виргинильных и молодых генеративных особей Quercus robur . Черным цветом показан ствол, синим цветом – ветви 1-го порядка, красным цветом – наиболее крупные ветви 2-го порядка. Оси, замещающие ствол и ветви 1-го порядка после их разделения, обозначены черным и синим цветами соответственно. А – крона образована плагиотропными ветвями. Б – в кроне перемежаются плагиотропные и восходящие ветви. В – Ствол отклоняется от ортотропного направления, ветви 1-го порядка дифференцированы в зависимости от расположения на стволе. Г – наиболее крупные ветви расположены в нижней части кроны и растут плагиотропно либо отклоняются вниз к субстрату.
Fig. 5 . The second (А, Б, Г) and third (B) types of crown structure in virginal and young generative specimens of Quercus robur . The trunk is shown in black, first-order branches in blue, and the largest second-order branches in red. The axes replacing the trunk and first-order branches after their division are shown in black and blue, respectively. A – the crown is formed by plagiotropic branches. B – plagiotropic and ascending branches alternate in the crown. C – the trunk deviates from the orthotropic direction, first-order branches are differentiated depending on their location on the trunk. D – the largest branches are located in the lower part of the crown and grow plagiotropically or deviate downwards toward the substrate.
-
2) 20–40 % ветвей в кроне растут косо вверх на всем протяжении, остальные ветви плагиотропные (рис. 5Б). Выраженной приуроченности к вертикальной части ствола восходящие ветви не имеют. Они могут быть парными с плагиотропными ветвями, составляя один ярус. Для растущих косо вверх ветвей также характерно нерегулярное ветвление.
-
3) В кроне отчетливо выражены две вертикальные зоны: из плагиотропных и восходящих ветвей (рис. 5Г). Первая составляет 30–50% от высоты дерева, однако, в отличие от тех особей первого типа, в нижней части кроны которых также сформированы горизонтально растущие ветви, в данном случае плагиотропные ветви значительно опережают по длине восходящие. За счет длины проекции нижней зоны кроны отношение ширины кроны к высоте дерева достигает у особей третьего варианта 0.9–1.1. Часть плагиотропных ветвей имеет сводчатую форму или же растет в направлении субстрата в периферической части кроны. Ветви нижней зоны кроны ветвятся чаще, чем плагиотропные ветви у особей двух предыдущих вариантов (по 1–3 относительно слабо развитой ветви на ДПС). Часть восходящих ветви второй зоны в целом сходны с ветвями особей первого типа. Однако у ряда ветвей в дистальной части ось раздваивается. Одна из осей замещения растет вниз к субстрату, как бы «поникая».
Особи первого и второго вариантов отмечены в местообитаниях 1 и 5, а третьего варианта – в местообитании 4.
Третий тип
Ствол в середине или в верхней трети кроны меняет направление роста с ортотропного на наклонное, а в ряде случаев – и на плагиотропное (в частности, у единственной описанной имматурной особи). Ветви 1-го порядка дифференцированы по направлению роста в зависимости от того, на какой стороне перегиба ствола они растут. От «внутренней» стороны одиночно или по две отходят плагиотропные ветви, а от «внешней» – восходящие, иногда близкие к ортотропным, или в виде перевернутой буквы г (рис. 5В). Ветви на «внешней» стороне либо единичные и крупные, либо более многочисленные, но при этом короткие и нарастающие симподиально. Плагиотропные ветви аналогичны описанным выше.
В местообитаниях 1 – 4 абсолютно преобладают особи первого типа (рис. 6). В местообитании 5 суммарная доля особей первого и второго типов больше, чем особей первого типа.
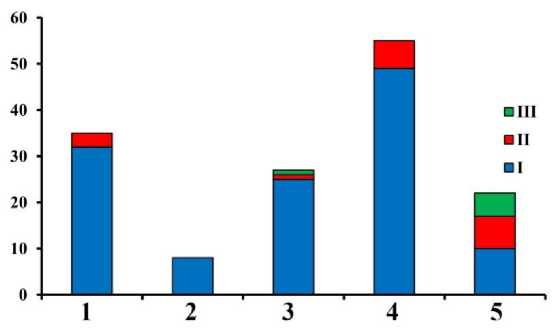
Рис. 6. Распределение типов кроны особей Quercus robur по местообитаниям. По оси абсцисс – местообитания. По оси ординат – число особей. В легенде – типы кроны.
Fig. 6. Distribution of Quercus robur crown types by habitat. The x-axis shows habitats. The y-axis shows the number of individuals. The legend shows crown types.
