
Геномное разнообразие, ROH-инбридинг и популяционная структура красной степной породы крупного рогатого скота по данным 50K SNP-генотипирования
Журнал: Сельскохозяйственная биология @agrobiology
Рубрика: Генетика, геномика
Статья в выпуске: 4 т.61, 2026 года.
Бесплатный доступ
Красная степная порода крупного рогатого скота представляет собой локально адаптированную породу юга России и служит ценным генетическим ресурсом для ведения животноводства в условиях аридных и континентальных экосистем. Несмотря на ее практическое значение, геномное разнообразие по данным SNP-маркеров, профиль инбридинга по участкам гомозиготности и внутренняя популяционно-генетическая структура этой породы изучены недостаточно. В настоящей работе мы впервые получили интегральную геномную SNP-характеристику красной степной породы по данным 50K SNP-генотипирования с одновременной оценкой индивидуальной мультилокусной гетерозиготности, инбридинга на основе участков гомозиготности (runs of homozygosity, ROH) и внутренней популяционно-генетической структуры. Цель заключалась в оценке геномного разнообразия красной степной породы с формированием геномной основы для управления этой локально адаптированной породой и ее сохранения. Материалом для исследования служили образцы крови клинически здоровых коров (n = 40) красной степной породы из племенного стада КФХ «Агрофирма Согратль» (Республика Дагестан). Образцы цельной крови отбирали из яремной вены в пробирки с ЭДТА 17 апреля 2025 года. Геномную ДНК выделяли стандартным фенол-хлороформным методом и количественно оценивали на спектрофотометре NanoDrop («Thermo Fisher Scientific Inc.», США). Генотипирование проводили с использованием SNP-чипа средней плотности Illumina BovineSNP50 BeadChip («Illumina, Inc.», США), содержащего 53218 SNP-маркеров. После контроля качества по частоте минорного аллеля (>0,01), доле успешно типированных SNP (≥0,95), доле успешно типированных образцов (≥0,90) и равновесию Харди-Вайнберга (p ≥ 0,001) для анализа было оставлено 52781 аутосомных SNP. Геномное разнообразие у отдельных животных оценивали по мультилокусной гетерозиготности (MLH). Участки ROH выявляли методом последовательного анализа SNP при минимальной длине 1 Мб, наличии не менее 50 SNP в сегменте, не более 1 гетерозиготного генотипа и 1 пропущенного значения на участок и максимальном расстоянии между соседними SNP 1000 кб. Геномный инбридинг рассчитывали как F_ROH = ∑L_ROH/L_auto. Популяционную структуру оценивали методами анализа главных компонент (PCA) и ADMIXTURE при K = 2-5. Значения индивидуальной мультилокусной гетерозиготности варьировали от 0,285 до 0,334 при среднем значении 0,307±0,014, что свидетельствовало об умеренном геномном разнообразии по данным SNP-маркеров. Всего было выявлено 967 ROH-сегментов длиной ≥1 Мб, в среднем 24,2 сегмента на животное. Суммарная длина ROH на геном варьировала приблизительно от 120 до 410 Мб, а коэффициент F_ROH — от 0,030 до 0,130 при среднем значении 0,076±0,022, что указывало на выраженные различия по степени автозиготности. Среди ROH преобладали сегменты промежуточной длины (2-8 Мб), тогда как длинные ROH (>16 Мб) встречались реже, но вносили заметный вклад в суммарную гомозиготность генома. Анализ ADMIXTURE поддержал модель с 3 внутристадными генетическими компонентами (K = 3), а PCA выявил согласующуюся с ней постепенную кластеризацию, при этом PC1 и PC2 объясняли соответственно 5,1 и 4,7 % общей SNP-дисперсии. Совокупность полученных данных свидетельствовала об умеренном генетическом разнообразии, неоднородности по инбридингу и наличии внутренней популяционно-генетической стратификации в пределах стада. Исследованное поголовье красной степной породы следует рассматривать как популяционно-генетически гетерогенную, но сохраняющую породную целостность локально адаптированную популяцию. Полученные результаты формируют геномную SNP-базу для природоохранно-ориентированной селекции и показывают, что устойчивое управление породой должно учитывать как индивидуальную ROH-нагрузку, так и внутреннюю структуру генетических компонентов, выявленных в пределах стада.
Короткий адрес: https://sciup.org/142248601
IDS: 142248601 | УДК: 636.2:575.174 | DOI: 10.15389/agrobiology.2026.4.607rus
Genomic diversity, ROH-based inbreeding, and population structure of red steppe cattle based on 50K SNP genotyping
Red Steppe cattle are a locally adapted breed of southern Russia and represent a valuable genetic resource for livestock production in arid and continental ecosystems. Despite its practical importance, genomic diversity inferred from SNP markers, the inbreeding profile based on runs of homozygosity, and within-breed population structure remain insufficiently studied. Here, for the first time, we obtained an integrated SNP-based genomic characterization of Red Steppe cattle using 50K SNP genotyping and simultaneously assessed individual multilocus heterozygosity, ROH-based inbreeding, and within-breed population structure. The aim was to assess genomic diversity in Red Steppe cattle and provide a genomic basis for management and conservation of this locally adapted breed. Blood samples were collected from clinically healthy Red Steppe cows (n = 40) from the breeding herd of the Agrofirma Sogratl farm (Republic of Dagestan). Whole blood was collected from the jugular vein into EDTA tubes on April 17, 2025. Genomic DNA was extracted using the standard phenol-chloroform method and quantified with a NanoDrop spectrophotometer (Thermo Fisher Scientific Inc., USA). Genotyping was performed using the medium-density Illumina BovineSNP50 BeadChip (Illumina, Inc., USA) comprising 53,218 SNP markers. After quality control for minor allele frequency (>0.01), SNP call rate (≥0.95), sample call rate (≥0.90), and Hardy-Weinberg equilibrium (p ≥ 0.001), 52,781 autosomal SNPs were retained for analysis. Genomic diversity in individual animals was evaluated from multilocus heterozygosity (MLH). Runs of homozygosity were called using a consecutive-run approach with a minimum length of 1 Mb, at least 50 SNPs per segment, no more than one heterozygous genotype and one missing call per segment, and a maximum gap of 1,000 kb between adjacent SNPs. Genomic inbreeding was calculated as FROH = ∑LROH/Lauto. Population structure was assessed by principal component analysis (PCA) and ADMIXTURE at K = 2-5. Individual MLH values ranged from 0.285 to 0.334, with a mean of 0.307±0.014, indicating moderate SNP-based genomic diversity. In total, 967 ROH segments ≥1 Mb were identified, averaging 24.2 segments per animal. The total ROH length per genome ranged approximately from 120 to 410 Mb, while FROH ranged from 0.030 to 0.130, with a mean of 0.076±0.022, indicating pronounced heterogeneity in autozygosity. Intermediate-length ROH (2-8 Mb) predominated, whereas long ROH (>16 Mb) were less frequent but contributed appreciably to total genomic homozygosity. ADMIXTURE supported a model with three within-herd genetic components (K = 3), and PCA revealed a concordant gradual clustering pattern, with PC1 and PC2 explaining 5.1 and 4.7 % of total SNP variance, respectively. Together, the data indicate moderate genetic diversity, heterogeneous inbreeding, and within-herd population structure. The studied Red Steppe herd should therefore be regarded as a genetically heterogeneous, locally adapted population that nevertheless retains breed integrity. These findings provide an SNP-based genomic baseline for conservation breeding and show that sustainable breed management should account for both individual ROH burden and the internal structure of genetic components within the herd.
Текст научной статьи Геномное разнообразие, ROH-инбридинг и популяционная структура красной степной породы крупного рогатого скота по данным 50K SNP-генотипирования
Геномные технологии занимают все более важное место в устойчивом развитии скотоводства, поскольку позволяют объективно контролиро-
Исследование выполнено при финансовой поддержке Министерства науки и высшего образования Российской Федерации (тема ¹ FNMN-2025-0003).
вать генетическое разнообразие и степень инбридинга, а также поддерживают подходы, основанные на данных генотипирования, к отбору и геномному прогнозированию в различных системах ведения животноводства (14). Их значение возросло в условиях быстро меняющихся природно-климатических и производственных факторов, когда геномные инструменты рассматриваются как один из ключевых элементов долгосрочной устойчивости селекционных систем в скотоводстве (5-7). Геномные подходы повышают возможности выявления генетических связей между стадами и селекционными программами, что улучшает интерпретацию результатов геномной оценки (8, 9). Кроме того, они способствуют достижению селекционных целей, связанных со здоровьем, благополучием и адаптивным потенциалом животных (10-12), включая признаки резистентности, оцениваемые у разных пород и в неодинаковых условиях среды (13). Интегративные муль-тиомные подходы дополнительно расширяют возможности SNP-анализа, позволяя связать геномную изменчивость с биологическими путями, важными для продуктивности и адаптивности (14-16).
Локальные и регионально адаптированные породы крупного рогатого скота особенно ценны, поскольку нередко сохраняют генетические варианты, сформированные в результате длительной адаптации к специфическим экологическим и технологическим условиям (17-20). Исследования по геномно распределенным SNP-маркерам у местных и аборигенных популяций скота показали, что такие породы могут содержать тонкие, но биологически значимые паттерны разнообразия, примеси и дифференциации, которые следует учитывать в селекционных и охранных программах (21-24).
В России геномные SNP-подходы уже применялись для изучения происхождения, селекции и адаптации отечественных пород крупного рогатого скота, тогда как региональные популяционно-генетические исследования охватывали популяции Ярославской области и Республики Дагестан, а также полиморфизм генов белков молока у локально разводимых пород (25-28). Эти работы подтверждают актуальность геномных и популяционногенетических методов для характеристики локально адаптированного скота в условиях российской селекционной практики.
Участки гомозиготности (runs of homozygosity, ROH) представляют собой широко используемый инструмент количественной оценки автозиготности и реконструкции отдельных аспектов популяционной истории и геномной архитектуры (29, 30). ROH-паттерны также сопоставлялись у популяций скота из различных климатических зон и контрастных систем содержания (31). Современные исследования показывают, что внутри пород паттерны инбридинга и сигналы отбора могут проявляться совместно, что дополнительно подчеркивает значение ROH-метрик для мониторинга генетических ресурсов животных (32, 33).
Данные о геномно распределенных SNP-маркеров используются для выявления геномных участков, ассоциированных с морфологическими особенностями и развитием мускулатуры (34, 35), а также для изучения генетически детерминированных заболеваний и вредных гаплотипов (36, 37), что демонстрирует широкий аналитический потенциал SNP-данных при характеристике внутрипородной изменчивости.
Красная степная порода представляет собой исторически значимую и экологически адаптированную породу восточноевропейского происхождения, которая издавна ценится за устойчивость к климатическим стрессорам, удовлетворительную продуктивность в экстенсивных условиях и приспособленность к аридным и полуаридным территориям. Порода имеет сложную историю формирования и последующего совершенствования: ее 608
развитие было связано с использованием местного степного скота и ряда улучшающих красных молочных пород, включая англерскую породу в отдельных зонах советской селекционной практики. Поэтому внутрипородная неоднородность, выявляемая по SNP-маркерам, может отражать не только современную структуру конкретного стада, но и более длительную историю формирования породы, улучшения, неодинаковый вклад отдельных линий и производителей. Несмотря на практическую значимость красной степной породы, ее комплексная геномная SNP-характеристика остается ограниченной, особенно в части внутрипородного разнообразия, распределения ROH и внутренней популяционно-генетической структуры.
В настоящей работе мы впервые получили интегральную геномную SNP-характеристику красной степной породы по данным 50K SNP-генотипирования с одновременной оценкой индивидуальной мультилокусной гетерозиготности, инбридинга на основе ROH и внутренней популяционногенетической структуры.
Цель заключалась в оценке геномного разнообразия красной степной породы с формированием геномной основы для управления этой локально адаптированной породой и ее сохранения.
Методика. Исследование было выполнено на 40 клинически здоровых коровах ( Bos taurus ) красной степной породы из племенного стада КФХ «Агрофирма Согратль» (Республика Дагестан). Образцы цельной крови отбирали из яремной вены в пробирки с ЭДТА 17 апреля 2025 года. Геномную ДНК выделяли стандартным фенол-хлороформным методом и количественно оценивали на спектрофотометре NanoDrop («Thermo Fisher Scientific, Inc.», США). Образцам были присвоены коды KRS_01-KRS_40, которые последовательно использовались на всех этапах анализа. Результаты генотипирования были получены 20 мая 2025 года.
Генотипирование выполняли с использованием SNP-чипа средней плотности Illumina BovineSNP50 BeadChip («Illumina, Inc.», США), содержащего 53218 SNP-маркеров, распределенных по геному крупного рогатого скота. Использованный SNP-чип не был методом полногеномного секвенирования и не охватывал все варианты генома; он позволял получить по-лилокусные SNP-генотипы по заранее отобранным маркерам.
В связи с этим полученные результаты интерпретировали как геномную SNP-характеристику исследованного стада, а не как анализ полной последовательности генома. Сырые генотипические данные были экспортированы из первичного выходного формата платформы и преобразованы в формат, совместимый с PLINK, для последующего анализа. Контроль качества проводили в PLINK v1.9 (38). Исключали SNP с частотой минорного аллеля (MAF) < 0,01, долей успешно типированных SNP < 95 %, долей успешно типированных образцов < 90 % и отклонением от равновесия Харди-Вайнберга при p < 0,001. Во всех последующих расчетах использовали только аутосомные маркеры, сохранившиеся после контроля качества.
Индивидуальную мультилокусную гетерозиготность (multilocus heterozygosity, MLH) рассчитывали как долю гетерозиготных генотипов среди успешно типированных аутосомных SNP у каждого животного. Среднее значение MLH по выборке использовали как описательную характеристику общего геномного разнообразия исследованного стада. Геномный инбридинг оценивали по участкам гомозиготности (ROH), которые выявляли в среде R с использованием пакета detectRUNS (39, 40) на основе последовательного анализа SNP-маркеров.
ROH определяли по следующим критериям: минимальная длина 1 Мб, не менее 50 SNP в сегменте, не более 1 гетерозиготного генотипа и не более 1 пропущенного генотипа на участок, а также максимальное расстояние между соседними SNP 1000 кб. Коэффициент инбридинга на основе ROH (Froh) рассчитывали для каждого животного по формуле:
F roh = ∑ L ROH /L auto , где ∑ L ROH — суммарная длина ROH, L auto — общая длина аутосомного генома, охваченная используемым набором SNP.
Для облегчения интерпретации профиля инбридинга ROH-сегменты дополнительно суммировали по классам длины.
Внутрипородную популяционную структуру изучали с использованием анализа главных компонент (PCA) и ADMIXTURE. PCA выполняли в PLINK v1.9 по отфильтрованному набору аутосомных SNP после стандартного прореживания маркеров для уменьшения влияния неравновесия по сцеплению. Индивидуальные собственные векторы визуализировали в R. Внутреннюю генетическую структуру оценивали в ADMIXTURE v1.3 (41). Тестировали модели с K = 2-5 генетическими компонентами, наиболее подходящее значение K выбирали по критерию минимальной ошибки кросс-валидации. Полученные индивидуальные коэффициенты из Q-матриц затем использовали для визуализации внутренней генетической стратификации стада. Поскольку внешние референтные породы в анализ не включали, выделенные компоненты не интерпретировали как вклад конкретных исходных или улучшающих пород.
Для проверки возможного влияния родственных связей на результаты PCA и ADMIXTURE дополнительно оценивали попарное геномное сходство животных по LD-прореженному набору из 31250 SNP. Расчет выполняли по стандартизированной матрице генотипов с последующей оценкой GRM-подобного коэффициента родства и доли идентичных по состоянию генотипов (IBS). Этот анализ использовали как вспомогательный инструмент интерпретации внутристадной структуры, а не как основание для исключения животных из выборки.
Исследование представляло собой базовую геномную SNP-оценку одного стада, поэтому в его основе лежали преимущественно описательные популяционно-генетические и популяционно-геномные статистики. Количественные результаты представлены как средние значения ( M) и стандартные отклонения (±SD), если не указано иное; дополнительно приведены диапазоны значений (min-max). Подготовку данных и агрегацию таблиц, полученных для отдельных животных и стада, выполняли в электронных таблицах. Сводные статистики и графические материалы формировали в R с использованием интерфейса RStudio.
Результаты. Значения индивидуальной мультилокусной гетерозиготности (MLH) у 40 коров красной степной породы варьировали от 0,285 до 0,334, при среднем по выборке 0,307±0,014 (табл. 1), что указывает на умеренное геномное разнообразие по SNP-маркерам в исследованном стаде.
У 10 животных значения MLH превышали 0,32, тогда как у 5 особей MLH была ниже 0,29, что отражает заметную индивидуальную неоднородность по доле гетерозиготных локусов.
Для дополнительной характеристики индивидуальных профилей «разнообразие-инбридинг» в таблице 2 представлены животные с 10 наиболее высокими и 10 наиболее низкими значениями описательного критерия MLH - F_ROH.
Животные, занявшие верхние позиции по S = MLH - F_ROH, сочетали сравнительно более высокие значения индивидуальной мультило-кусной гетерозиготности со сниженным ROH-обусловленным инбридингом, тогда как у особей из нижней части ранга наблюдалась противополож- ная ситуация. Поэтому таблицу 2 следует рассматривать как обобщенное представление индивидуальной популяционно-генетической неоднородности внутри исследованного стада. Полученное среднее значение MLH указывало на умеренное генетическое разнообразие и в целом соответствовало картине, описанной для многих локальных и регионально адаптированных популяций крупного рогатого скота, в которых разнообразие по SNP-маркерам сохраняется, но распределено между животными и внутрипопуляци-онными группами неравномерно (19, 20, 23, 24).
-
1. Геномное разнообразие и ROH-инбридинг в стаде коров ( Bos taurus ) красной степной породы ( n = 40; КФХ «Агрофирма Согратль», Республика Дагестан, 2025 год)
-
2. Индивидуальные значения мультилокусной гетерозиготности, ROH-инбридинга и критерия MLH - F_ROH у коров ( Bos taurus ) красной степной породы с высокими и низкими значениями MLH - F_ROH (КФХ «Агрофирма Со-гратль», Республика Дагестан, 2025 год)
Показатель M ±SD min-max
MLH 0,307±0,014 0,285-0,334
F_ROH 0,076±0,022 0,030-0,130
Суммарная длина ROH, Мб 230±85 120-410
Примечание. MLH — индивидуальная мультилокусная гетерозиготность, рассчитанная как доля гетерозиготных генотипов среди успешно типированных аутосомных SNP; F_ROH — коэффициент геномного инбридинга на основе участков гомозиготности.
Идентификатор животного I MLH F _ ROH S = MLH - F _ ROH
|
Высокие значения |
MLH - F_ROH |
||
|
A01 |
0,333 |
0,032 |
0,301 |
|
A02 |
0,333 |
0,035 |
0,298 |
|
A03 |
0,330 |
0,048 |
0,282 |
|
A04 |
0,329 |
0,051 |
0,278 |
|
A05 |
0,317 |
0,046 |
0,271 |
|
A06 |
0,326 |
0,059 |
0,267 |
|
A07 |
0,314 |
0,048 |
0,266 |
|
A08 |
0,300 |
0,036 |
0,264 |
|
A09 |
0,323 |
0,060 |
0,263 |
|
A10 |
0,298 |
0,044 |
0,254 |
|
Низкие значения |
MLH - F_ROH |
||
|
A31 |
0,303 |
0,098 |
0,205 |
|
A32 |
0,312 |
0,109 |
0,203 |
|
A33 |
0,325 |
0,125 |
0,200 |
|
A34 |
0,289 |
0,089 |
0,200 |
|
A35 |
0,323 |
0,127 |
0,196 |
|
A36 |
0,310 |
0,117 |
0,193 |
|
A37 |
0,294 |
0,101 |
0,193 |
|
A38 |
0,320 |
0,127 |
0,193 |
|
A39 |
0,309 |
0,125 |
0,184 |
|
A40 |
0,287 |
0,103 |
0,184 |
Примечание. MLH — индивидуальная мультилокусная гетерозиготность; F_ROH — коэффициент инбридинга на основе ROH. Показатель S использовали только для описательного ранжирования животных и не рассматривали как самостоятельный селекционный индекс.
Такая интерпретация согласуется с данными других авторов, показавших, что локально адаптированные породы часто сохраняют ценные аллельные варианты, сформированные в условиях длительной адаптации, при этом демонстрируя внутреннюю неоднородность, которая связана с историей разведения, численностью популяции и использованием отдельных линий производителей (21, 22, 25-27). В этом контексте исследованное нами стадо красной степной породы следует рассматривать не как генетически обедненную популяцию, а как стадо с сохраняющимся резервом разнообразия, но с заметными различиями между животными по индивидуальным SNP-профилям.
С прикладной точки зрения наличие животных с более благоприятным сочетанием повышенной MLH и пониженного F_ROH указывает на то, что в стаде сохраняются особи, которые могут быть приоритетными при формировании схем подбора, направленных на поддержание разнообразия и ограничение дальнейшего накопления автозиготности. Такой подход соответствует современным стратегиям геномно обоснованного управления генетическими ресурсами животных, в которых внутрипородная изменчивость рассматривается как важнейший элемент устойчивой селекции и охраны породы (1, 2, 6).
Всего у 40 животных было выявлено 967 ROH-сегментов длиной более 1 Мб, что соответствует в среднем 24,2 сегментам на особь. Суммарная длина ROH на геном варьировала приблизительно от 120 до 410 Мб. Соответственно, коэффициент инбридинга на основе ROH (F_ROH) изменялся от 0,030 до 0,130, при среднем значении 0,076±0,022. Эти величины указывают на выраженные различия между животными по автозиготной нагрузке внутри стада.
Распределение ROH по классам длины позволило более детально охарактеризовать структуру геномной автозиготности. Преобладали ROH промежуточной длины (2-8 Мб): на их долю приходилось около 82 % всех выявленных сегментов и примерно 59 % суммарной длины ROH. Напротив, длинные ROH-сегменты (>16 Мб) встречались относительно редко (около 4,4 % всех сегментов), но вносили несоразмерно высокий вклад (около 19,5 %) в общую ROH-нагрузку. Такой паттерн в большей степени соответствовал смешанной истории инбридинга, чем сценарию равномерно недавнего и интенсивного родственного разведения во всем стаде.
Для получения абсолютной характеристики геномной гомозиготности суммарную длину ROH дополнительно оценивали для каждого животного. Средняя по популяции общая длина ROH составила 230±85 Мб, а максимальные значения были отмечены у животных A08 (410 Мб), A19 (390 Мб), A37 (380 Мб) и A39 (365 Мб).
Абсолютная геномная гомозиготная нагрузка у отдельных животных представлена в таблице 3, где представлены 10 особей с наибольшей суммарной длиной ROH.
3. Коровы ( Bos taurus ) красной степной породы с наибольшей в изученном стаде суммарной длиной ROH (максимальная автозиготная нагрузка) (КФХ «Агрофирма Согратль», Республика Дагестан, 2025 год)
|
Ранг |
Идентификатор животного |
Суммарная длина ROH, Мб |
|
1 |
A08 |
410 |
|
2 |
A19 |
390 |
|
3 |
A37 |
380 |
|
4 |
A39 |
365 |
|
5 |
A12 |
355 |
|
6 |
A30 |
345 |
|
7 |
A25 |
340 |
|
8 |
A17 |
330 |
|
9 |
A22 |
315 |
|
10 |
A38 |
306 |
Примечание. Суммарная длина ROH приведена в Мб. Ì ±SD по полной выборке ( n = 40) для суммарной длины ROH составили 230±85 Мб.
Эти животные характеризовались наибольшей автозиготностью в выборке и потому требуют особого внимания с точки зрения подбора пар и управления инбридингом. Ранжирование по суммарной длине ROH дополняет интерпретацию на основе F_ROH, позволяя выделить особей с особенно высокой абсолютной долей гомозиготного геномного покрытия даже в популяции, которая в целом сохраняет умеренное геномное разнообразие.
В совокупности представленные данные (см. табл. 2, 3) дают взаимодополняющее представление о геномном разнообразии и инбридинге в 612
исследованном стаде. Совместная интерпретация этих результатов показывает, что стадо сочетало умеренное геномное разнообразие с выраженными различиями между животными по автозиготности.
ROH-анализ биологически информативен, поскольку участки гомозиготности широко рассматриваются как надежные индикаторы автозиготности и демографической истории популяций (29, 30). В настоящем исследовании преобладание ROH промежуточной длины в сочетании с меньшим, но все же заметным вкладом длинных сегментов указывает на то, что исследованное стадо испытывало не единичный недавний эпизод инбридинга, одинаково затронувший всех животных, а скорее сочетание более давнего родства и более недавнего накопления гомозиготности в отдельных линиях. Такой паттерн согласуется с опубликованными ROH-анализами локальных и регионально адаптированных пород крупного рогатого скота, где смешанный спектр длин ROH обычно интерпретируется как свидетельство неоднородной истории разведения и неравномерного накопления автозиготности у разных животных (17, 30-32).
В то же время наличие животных со значениями F_ROH выше 0,10 и с очень высокой суммарной длиной ROH требует особого внимания, поскольку длинные гомозиготные сегменты обычно связаны с более недавним общим происхождением и могут указывать на повышенный риск фиксации неблагоприятных рецессивных вариантов (29, 30). Подобные риски подчеркиваются и в исследованиях малочисленных и локально поддерживаемых популяций крупного рогатого скота, где ROH-основанные показатели рассматриваются как особенно ценный инструмент для мониторинга скрытого инбридинга, не всегда полностью отраженного в обычной племенной документации (17, 30, 33).
Выявленный нами ROH-профиль подтверждает, что красная степная порода все еще сохраняет полезный резерв разнообразия, однако ее устойчивое использование должно прямо учитывать индивидуальные различия по величине автозиготной нагрузки.
Внутреннюю генетическую структуру стада красной степной породы оценивали с помощью ADMIXTURE в моделях с K от 2 до 5. Среди протестированных вариантов минимальная ошибка кросс-валидации была получена при K = 3, что указывает на наибольшую адекватность трехкомпонентной модели для описания внутренней SNP-структуры исследованной выборки.
Выявленная внутренняя генетическая структура стада при оптимальном решении ADMIXTURE (K = 3) представлена на рисунке 1.
Для большинства животных были характерны смешанные профили генетических компонентов, тогда как у части особей наблюдалось явное преобладание одного компонента. Это указывает на неоднородность SNP-профилей исследованного стада и подтверждает наличие популяционно-генетической стратификации при K = 3. Вместе с тем отсутствие резко разграниченных групп позволяет интерпретировать наблюдаемую структуру скорее как постепенную внутристадную неоднородность, чем как наличие дискретных и изолированных внутрипородных единиц. Полученный результат важен, поскольку показывает, что при дизайне «одна порода — одно стадо» популяция генетически неоднородна. Следовательно, геномное управление стадом должно учитывать не только степень инбридинга, но и представленность различных внутристадных генетических компонентов.
Выявленная трехкомпонентная структура согласуется с опубликованными данными, согласно которым локальные и аборигенные популяции крупного рогатого скота нередко демонстрируют слабую, но отчетливую внутреннюю стратификацию и смешанные SNP-профили, а не жесткое разделение на изолированные группы (13, 20, 22). Такие паттерны могут отражать совместное действие истории формирования породы, региональных особенностей разведения, родственных связей и неравномерного вклада отдельных производителей или линий-основателей.
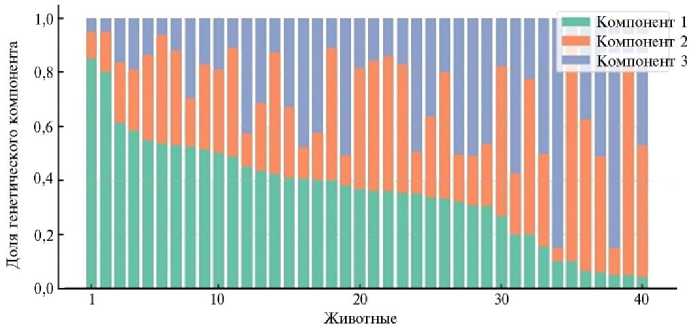
Рис. 1. Индивидуальные доли генетических компонентов у 40 коров ( Bos taurus ) красной степной породы по данным ADMIXTURE при K = 3 (КФХ «Агрофирма Согратль», Республика Дагестан, 2025 год) . Каждый вертикальный столбец соответствует одному животному, разные цвета обозначают генетические компоненты, выделенные ADMIXTURE. Доля каждого цвета в пределах столбца отражает относительный вклад соответствующего компонента в индивидуальный SNP-профиль. Компоненты ADMIXTURE отражают внутреннюю структуру исследованной выборки и не интерпретируются как вклад конкретных внешних пород, поскольку референтные породы в анализ не включали.
При этом следует подчеркнуть, что ADMIXTURE-анализ в настоящей работе был выполнен только внутри исследованного стада, без включения внешних референтных пород. Поэтому выделенные при K = 3 генетические компоненты не следует напрямую отождествлять с вкладом конкретных исторических или улучшающих пород. Для точной атрибуции этих компонентов необходим дополнительный сравнительный анализ с включением пород, участвовавших в формировании и улучшении красной степной породы. В настоящем исследовании полученные компоненты рассматриваются как характеристика внутристадной популяционно-генетической неоднородности, имеющая значение для более сбалансированных решений по подбору животных и предотвращения непреднамеренного доминирования узкого спектра SNP-профилей в пределах стада.
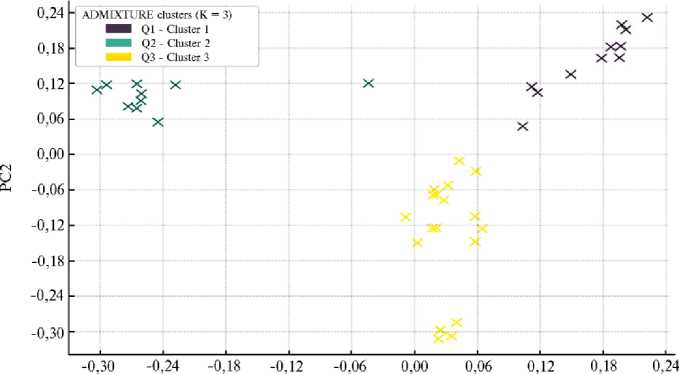
Для интеграции обоих подходов, использованных при оценке геномного разнообразия, положение животных в пространстве PCA анализировали совместно с их преобладающим генетическим компонентом, установленным по данным ADMIXTURE. Такая совмещенная визуализация позволила оценить, отражается ли структура, выявленная по соотношению генетических компонентов, в многомерной ординации SNP-данных (рис. 2).
Животные с одинаковым доминирующим генетическим компонентом, как правило, занимали частично перекрывающиеся, но все же различимые области графика PCA, тогда как особи с более смешанным профилем располагались в промежуточных зонах. Такое согласование результатов ADMIXTURE и PCA показывает, что оба метода фиксируют один и тот же базовый паттерн внутренней SNP-структуры. Перекрывание цветовых групп дополнительно подтверждает интерпретацию наблюдаемой картины как постепенной внутристадной стратификации, а не дискретного генетического разделения.
PCI
Рис. 2. Анализ главных компонент для 40 коров ( Bos taurus ) красной степной породы с окраской по преобладающему генетическому компоненту, выделенному ADMIXTURE при K = 3 (КФХ «Агрофирма Согратль», Республика Дагестан, 2025 год) . Каждая точка соответствует одному животному, положение которого определяется значениями PC1 и PC2. Цвет точки указывает на преобладающий генетический компонент, выделенный ADMIXTURE в модели K = 3. Компоненты отражают внутреннюю структуру исследованной выборки и не отождествляются с конкретными внешними породами.
Мы показали (см. рис. 1, 2), что стадо красной степной породы сочетает умеренную популяционно-генетическую целостность с выявляемой внутренней структурой. Это важно для селекционного управления, поскольку сохранение разнообразия должно учитывать не только индивидуальную ROH-нагрузку и показатель MLH, но и представленность различных внут-ристадных генетических компонентов.
Согласованность между PCA и ADMIXTURE повышает достоверность интерпретации выявленной структуры, поскольку совпадающие результаты методов многомерной ординации и модельной кластеризации обычно рассматриваются как более убедительное доказательство, чем данные любого из этих подходов по отдельности.
Дополнительная проверка попарного геномного сходства по LD-прореженному набору из 31250 SNP показала, что в выборке присутствовали отдельные умеренно близкие пары животных, но выявленная PCA/ADMIXTURE-структура не сводилась исключительно к близкому родству. Максимальное значение GRM-подобного коэффициента было отмечено для пары A24-A37 (0,257). Среди животных, отмеченных при визуальной интерпретации PCA, умеренно повышенное геномное сходство наблюдалось для пар A01-A16 (0,190), A15-A16 (0,176) и A01-A15 (0,129), тогда как A39 и A27 не показали выраженного близкого родства с этой группой. Следовательно, выявленная структура может частично отражать вклад отдельных родственных групп или линий, однако ее следует рассматривать шире — как проявление внутристадной популяционно-генетической неоднородности.
С точки зрения практики разведения этот вывод имеет особое значение. Он показывает, что природоохранно-ориентированное управление породой должно быть направлено не только на снижение избыточной индивидуальной автозиготности, но и на предотвращение эрозии внутренней генетической структуры вследствие многократного преимущественного использования животных, относящихся к узкому спектру SNP-профилей. Такая интерпретация полностью соответствует современным подходам к управлению генетическими ресурсами животных, при которых устойчивое разведение предполагает сочетание контроля инбридинга с сохранением того внут-рипородного разнообразия, которое обеспечивает долгосрочный адаптивный потенциал популяции (1, 2, 6, 17, 33).
Следует также подчеркнуть, что выявленная внутристадная генетическая гетерогенность не должна автоматически связываться с функциональными или ветеринарно значимыми признаками. В частности, возможная связь генетической структуры красной степной породы с различиями по восприимчивости к вирусу лейкоза крупного рогатого скота в настоящей работе специально не анализировалась. Поэтому такие ассоциации не рассматриваются как результат настоящего исследования и требуют отдельной проверки с привлечением фенотипических, ветеринарных и генотипических данных по соответствующим маркерам.
Таким образом, SNP-генотипирование 40 коров красной степной породы с использованием чипа Illumina BovineSNP50 с последующим контролем качества по 52781 аутосомному маркеру показало, что исследованное стадо сохраняет умеренное геномное разнообразие. Средняя индивидуальная мультилокусная гетерозиготность составила 0,307±0,014, тогда как ROH-инбридинг заметно различался между животными: F_ROH варьировал от 0,030 до 0,130 при среднем значении 0,076±0,022. Всего было выявлено 967 ROH-сегментов длиной более 1 Мб, а суммарная длина ROH на животное изменялась приблизительно от 120 до 410 Мб. ADMIXTURE-анализ поддержал модель с тремя внутристадными генетическими компонентами, а PCA показал согласующуюся популяционно-генетическую неоднородность, при которой PC1 и PC2 объясняли соответственно 5,1 и 4,7 % общей SNP-дисперсии. При этом, поскольку внешние референтные породы в анализ не включались, выделенные компоненты не интерпретируются как вклад конкретных исходных или улучшающих пород. Полученные данные позволяют рассматривать исследованное поголовье как популяционно-генетически гетерогенную, но сохраняющую породную целостность группу красной степной породы. Практическое значение результатов состоит в том, что при управлении стадом следует учитывать не только индивидуальную ROH-нагрузку, но и представленность разных внутристадных генетических компонентов.
ФГБНУ Федеральный аграрный научный центр Республики Дагестан,
