
Индуцированный «эффект спасения» у облучённых мышей как результат их совместного содержания с необлучёнными животными
Рубрика: Научные статьи
Статья в выпуске: 3 т.35, 2026 года.
Бесплатный доступ
В результате проведённого комплексного изучения клеточных популяций периферической крови и кроветворных органов у облучённых в дозе 3 Гр мышей, находившихся на протяжении 90 сут в контакте с необлучёнными особями, выявлен «эффект спасения» на межорганизменном уровне. В ближайшие сроки после начала эксперимента преобладал феномен снижения выраженности радиационноиндуцированных нарушений в организме облучённых мышей вследствие их контакта с необлучёнными. Нормализовалось процентное содержание лимфоцитов, нейтрофилов и моноцитов, уменьшилось количество эритроцитов с микроядрами. Значения pvalue (отличие от облучённого контроля) варьировали от 1,3105 до 3,0102. В отдалённые сроки преобладал феномен увеличения радиационноиндуцированных изменений в организме облучённых мышей вследствие их контакта с необлучёнными особями: снижение абсолютного количества лейкоцитов, снижение процентного содержания лимфоцитов и увеличением относительного количества нейтрофилов. Наблюдалось возрастание уровня моноцитов на 30 сут и эозинофилов на 30 и 90 сут. Отмечалось также повышение частоты нормохроматофильных эритроцитов с микроядрами на 30 сут. Значения pvalue варьировали от 6,0105 до 7,0102. На 90 сут выявлено существенное повышение количестве ядросодержащих клеток костного мозга и снижение числа ядросодержащих клеток тимуса у облучённых особей, контактировавших с необлучёнными мышами (р=0,03 и р=0,01 соответственно). Непостоянство проявлений рассматриваемого феномена на протяжении эксперимента подчёркивает сложный характер «взаимодействия» эффектов пострадиационного восстановления организма и влияния на него необлучённых животных«свидетелей».
Короткий адрес: https://sciup.org/170213761
IDS: 170213761 | УДК: 539.1.047:616.419:616.151:599.323.4-071 | DOI: 10.21870/0131-3878-2026-35-3-38-53
Induced "rescue effect" in irradiated mice kept in contact with non-irradiated animals
As a result of a comprehensive study of peripheral blood cell populations and hematopoietic organs in mice exposed to 3 Gy dose and kept in contact with non-irradiated mice for 90 days, a "rescue effect" was observed at the interorganism level. In general, the immediate aftermath of the experi-ment was characterized by a reduction in the severity of radiation-induced disorders in the organism of exposed mice due to their contact with non-irradiated mice. This was manifested by the normali-zation of the percentage of lymphocytes, neutrophils, and monocytes, as well as a decrease in the severity of the genotoxic effects of radiation, as evidenced by a decrease in the frequency of eryth-rocytes with micronucleus. The p-value values (differences from the irradiated control) ranged from 1,310-5 to 0,03. In the long term after the exposure, the phenomenon of increased severity of radi-ation-induced changes in the organism of irradiated mice due to their contact with non-irradiated individuals prevailed. This is manifested by a decrease in the absolute number of leukocytes, a de-crease in the percentage of lymphocytes and an increase in the relative number of neutrophils. In addition, there was an increase in the level of monocytes (the 30-th day) and eosinophils (the 30-th and the 90-th day). There was an increase in the frequency of normochromatophilic erythrocytes with micronuclei (the 30-th day). The p-value values ranged from 6,010-5 to 0,07. At the end of the ex-periment (the 90-th day), there was a significant increase in the number of nucleated bone marrow cells and a decrease in the number of nucleated thymus cells in irradiated individuals that were in contact with non-irradiated mice (cage with a septum, p=0,03, and without a septum, p=0,01, respec-tively). The inconsistency of the phenomenon under consideration throughout the experiment high-lights the complex nature of the "interaction" between the effects of post-radiation recovery and the influence of signals from unexposed "bystander animals".
Текст научной статьи Индуцированный «эффект спасения» у облучённых мышей как результат их совместного содержания с необлучёнными животными
На протяжении последних десятилетий в научной литературе отмечается устойчивый интерес к проблеме радиационно-индуцированного «эффекта спасения» как общебиологического явления. Радиационно-индуцированный «эффект спасения» – это биологический феномен, при котором негативные эффекты в облучённых клетках уменьшаются за счёт получения сигналов обратной связи от необлучённых клеток-«свидетелей» или из среды, в которой ранее культивировались эти необлучённые клетки. Данный эффект (наблюдаемый как в первичных фибробластах человека NHLF, так и в раковых клетках HeLa) был обнаружен в 2011 г. Chen S. и соавт. и определён как снижение «отрицательных» эффектов в облучённых клетках в результате их контакта с необлучёнными («эффект спасения» № 1) [1].
В 2016 г. Fu J. и соавт. [2] выявили ещё один тип «эффекта спасения», при котором негативные результаты в облучённых клетках при получении сигналов обратной связи от клеток-«сви-детелей» усугублялись намного больше. В дальнейшем исследовательские группы добились
успеха в изучении «эффекта спасения» в экспериментах in vitro (Lam R.K. и соавт. [3], Desai S. и соавт. [4] и др.), in vivo на межорганизменном уровне на эмбрионах Данио Рерио (Choi V.W. и соавт. [5]) и между облучёнными и необлучёнными мышами (Когарко И.Н. и соавт. [6]) при облучении разными видами ионизирующего излучения. Выраженность этого нового радиобиологического феномена варьировала в зависимости от типов облучённых клеток и клеток-«свидетелей», а также дозы излучения.
Целью настоящей работы является подведение итогов комплексного изучения (состояние кроветворных органов, лейкоцитарная формула периферической крови, частота микроядерных эритроцитов) «эффекта спасения», индуцированного у облучённых мышей, в результате их контакта с необлучёнными животными (межорганизменный уровень).
Материалы и методы
Исследовательская работа проводилась на 60 белых беспородных мышах (CD1), содержащихся в виварии экспериментального отдела ФГБУН УНПЦ РМ ФМБА России. Животные поступили из новосибирского «Центра генетических ресурсов лабораторных животных, сформированного на базе ЦКП SPF-виварий ИЦиГ СО РАН». Эксперимент был проведён с использованием половозрелых самок возраста 2,5 мес. и достигших массы тела 23-26 г на момент начала исследования. До начала и во время проведения экспериментов животные содержались в стандартных условиях вивария конвенционального типа при искусственном освещении и получали полнорационный гранулированный корм, а также питьевую воду ad libitum . В качестве подстила использовались древесные гранулы (фракция № 3, размер от 2-4 мм, ТУ 5313-001-0084157135-2015), произведённые ИП Филонич (Новосибирск), подстил заменялся еженедельно. При проведении эксперимента соблюдались все установленные международные правила работы с животными [7, 8].
Группа мышей (n=20) была облучена в дозе 3 Гр на радиобиологической гамма-установке ИГУР-1М с 4 источниками 137Cs, мощность дозы 0,79 Гр/мин, неравномерность γ -поля в рабочем пространстве не более 5%, при этом поглощённая доза для животных составила 3,0 Гр. Непосредственно после облучения мыши были рассажены в четыре клетки по следующей схеме: в каждой клетке содержалось по пять облучённых и по пять необлучённых животных (экспериментальная группа, обозначенная далее как мыши-«свидетели», n=20). При этом две из четырёх клеток имели разделительные металлические сетки, исключавшие тактильный контакт между животными облучённой и необлучённой групп. В отдельных клетках содержалась группа биологического контроля (необлучённые животные, n=10) и группа облучённого контроля (облучённые в дозе 3 Гр животные, n=10). Таким образом, эксперимент продолжительностью 90 сут включал 6 групп животных.
Для оценки влияния эксперимента на организм животных путём комплексного анализа клеточного состава регулярно отбирались образцы периферической крови из хвостовой вены (3, 7, 14, 30, 60 и 90 сут). С использованием гемоцитометра Пикоскель PS-4 определялось общее количество лейкоцитов (в 8 мкл крови) [9]. Кроме того, мазки крови фиксировали метанолом в течение 3 мин, готовились и окрашивались по Романовскому-Гимза для микроскопического исследования. Анализ мазков после их кодирования проводился на микроскопах Axio Scop A1 и Axio Image M2 (Ziess), что позволяло составить лейкоцитарную формулу и определить частоту эритроцитов с микроядрами. В ходе анализа оценивалось процентное соотношение лимфоцитов, моноцитов, нейтрофилов и эозинофилов. Лейкоцитарная формула составлялась на основе подсчёта
200 лейкоцитов. Для оценки частоты микроядерных эритроцитов подсчитывалось 1000 полихроматофильных и не менее 2000 нормальных эритроцитов, а также их соотношение.
На 90 день эксперимента животных подвергали эвтаназии методом шейной дислокации. После этого из особи извлекали и взвешивали селезёнку и тимус. Из одной бедренной кости вымывали костный мозг для последующего определения количества ядросодержащих клеток. Количество ядросодержащих клеток в костном мозге, селезёнке и тимусе определяли при помощи гемоцитометра Пикоскель PS-4. Из второй бедренной кости готовили мазок костного мозга для определения частоты эритроцитов с микроядрами.
Для анализа данных в каждой группе использовалась выборка из 10 животных, независимо от их размещения в двух разных клетках. Для всех измеряемых параметров вычислялись средние значения и стандартная ошибка среднего. Анализ проводился с помощью t-критерия Стьюдента, а статистически значимыми считались различия при p<0,05. Экспериментальные условия определялись следующими факторами: гамма-облучение, время после начала эксперимента и «фактор контакта» (0 – отсутствие контакта; 1 – обонятельный контакт через перегородку; 2 – тактильный и обонятельный контакт без перегородки). Статистическая обработка данных осуществлялась с использованием пакета R (R Core Team, 2018) [10].
При наличии значимых изменений показателя в группе облучённых особей в результате их контакта с необлучёнными животными (сравнение с облучённой группой сравнения) тип индуцированного «эффекта спасения» определялся следующим образом. Если у экспонированной особи направленность эффекта характеризовалась нормализацией (приближение к значениям в необлучённом контроле) анализируемого параметра, он относился к феномену «спасения» I типа. В случае увеличения выраженности отклонений в этой экспериментальной группе животных (отличия от необлучённого контроля) или появление изменений показателя, не наблюдавшихся в облучённой группе сравнения, делался вывод об индукции «эффекта спасения» II типа.
Результаты
Эффекты, регистрируемые у облучённых мышей, контактировавших с необлу-чёнными особями, в ближайшие сроки после начала эксперимента (3-14 дней). Как видно из табл. 1, в ближайшие сроки после перенесённого радиационного воздействия у мышей (облучённый контроль) наблюдается резкое снижение абсолютного количества лейкоцитов в периферической крови по сравнению с необлучённым контролем (р=4,1 х 10 -9 ; р=3,2 х 10 -8 ; р=5,4 х 10 -7 для 3, 7 и 14 сут соответственно). У облучённых мышей, находившихся в одной клетке с неэкспонированными животными-«свидетелями», наблюдается значимое (или на уровне тенденции) снижение этого показателя по сравнению с особями облучённого контроля. Такой эффект регистрировался через 3 и 14 сут при содержании мышей как в клетке с перегородкой, так и без нее. На 7 сут количество лейкоцитов крови у облучённых мышей, контактировавших с необлучёнными особями-«свидетелями» в клетке без перегородки, было ниже (на уровне тенденции), чем в соответствующем облучённом контроле. Таким образом, у облучённых мышей имеет место усиление выраженности эффектов радиационного воздействия, что связано с их обонятельным и/или тактильным контактом с необлучёнными особями-«свидетелями».
Уже на 3 сут после радиационного воздействия наблюдается тенденция к уменьшению относительного количества лимфоцитов крови, сопровождающегося возрастанием процентного содержания нейтрофилов (отличия от контроля р=0,13 и р=0,11 соответственно). При этом, у облучённых мышей, находившихся с необлучёнными в одной клетке с перегородкой, наблюдается нормализация этих показателей, приводящая к тому, что они не отличаются от контрольных значений (значимые отличия от облучённого контроля р=0,02 и р=0,03 для лимфоцитов и нейтрофилов соответственно). У экспонированных животных, контактировавших с особями-«свидетелями» в клетке без перегородки, такого эффекта не наблюдалось.
На 7 сут после радиационного воздействия у мышей выявлены значимые отличия процентного содержания рассматриваемых форменных элементов крови от контрольных уровней (р=0,04 и р=0,03 для лимфоцитов и нейтрофилов соответственно). У облучённых мышей, контактировавших с мышами-«свидетелями» (исключительно клетка без перегородки), наблюдается существенная нормализация этих показателей (р=0,01 и р=0,004 для лимфоцитов и нейтрофилов соответственно).
На 14 сут после радиационного воздействия у облучённых мышей отмечается эффект другой направленности (по сравнению с предыдущими сроками): возрастание относительного количества лимфоцитов крови, сопровождающегося уменьшением процентного содержания нейтрофилов (отличия от контроля р=0,03 и р=0,01 соответственно). При этом, у экспонированных животных, контактировавших с мышами-«свидетелями» в клетке без перегородки (тактильные контакты), наблюдается значимая нормализация этих показателей: р=0,005 и р=0,012 (для лимфоцитов и нейтрофилов соответственно). Противоположный эффект выявлен для особей из клетки с перегородкой (обонятельные контакты): у облучённых мышей наблюдается ещё большее возрастание количества лимфоцитов и уменьшение содержания нейтрофилов, что приводит к значимым различиям этих показателей между облучёнными мышами, контактировавшими с необлу-чёнными особями, и соответствующим неэкспонированным контролем (р=6,0 х 10 -4 и р=4,0 х 10 -4 для лимфоцитов и нейтрофилов соответственно); различия с облучённым контролем также значимы (р=0,02 для лимфоцитов и р=0,02 для нейтрофилов).
При относительном количестве моноцитов крови у облучённых мышей, не отличающемся значимо от контрольного уровня (тенденция к снижению), их совместное содержание с живот-ными-«свидетелями» в клетке без перегородки приводит к значимому возрастанию уровня этих форменных элементов крови у экспонированных особей на 3 и 14 сут после начала эксперимента. При этом значимых отличий этих показателей от необлучённого контроля не выявлено. Контакт необлучённых и облучённых мышей не привёл к значимым отличиям уровней эозинофилов у последних от соответствующего экспонированного контроля. При этом само по себе радиационное воздействие привело к значимому возрастанию уровня эозинофилов только на 14 сут после начала эксперимента.
У облучённых мышей, начиная с 7 сут после воздействия, частота полихроматофильных эритроцитов с микроядрами значимо отличается от контрольного уровня. Уровень нормохромато-фильных эритроцитов с микроядрами (суммарный уровень эритроцитов с микроядрами) у экспонированных животных существенно выше этого показателя в контроле во всех проанализированных экспериментальных точках. У облучённых животных в результате совместного их содержания с необлучёнными особями наблюдается уменьшение выраженности генотоксических эффектов радиационного воздействия. А именно, у облучённых мышей, контактировавших с необлучёнными особями, отмечается значимое снижение полихроматофильных эритроцитов с микроядрами на 14 сут после начала эксперимента (р=0,03, обонятельные контакты) и нормохроматофильных красных клеток крови с этими цитогенетическими нарушениями (р=0,03 – 3 сут, обонятельные контакты; р=1,1 х 10 -5 и р=0,004 - 14 сут, тактильные и обонятельные контакты соответственно).
Таблица 1
Выраженные эффекты*, зарегистрированные у облучённых мышей, находившихся в одной клетке с необлучёнными особями, в ближайшие сроки после радиационного воздействия
|
Показатель |
Время после начала эксперимента, сут |
||||||||||||
|
3 |
7 |
14 |
|||||||||||
|
К |
О |
О с |
О сп |
К |
О |
О с |
О сп |
К |
О |
О с |
О сп |
||
|
Количество лейкоцитов ПК, х 10 6 /мл |
12,04±0,93 |
2,24±0,09 P i =4,1x10 -9 |
1,85±0,21 Р 2 =3,3х10 -9 р 2 =0,1 |
1,71±0,08 P i =2,2x10⁻⁹ Р 2 =2,0х10-4 |
12,33±0,94 |
3,03±0,34 P i =3,2x10⁻⁸ |
2,29±0,32 P i =8,2xi0 —9 р 2 =0,13 |
2,89±0,2 p 2 =0,72 |
13,89±0,82 |
7,03±0,36 P i =5,4xi0 —7 |
5,92±0,32 P i =4,0xi0-8 р 2 =0,04 |
5,54±0,53 P i =8,8xi0-8 р 2 =0,03 |
|
|
Лейкоцитарная формула крови (относительное содержание клеток, %) |
лимфоциты |
82,90±1,62 |
79,10±1,74 p 1 =0,13 |
77±2,47 p 2 =0,5 |
84,60±1,20 р 1 =0,41 р 2 =0,02 |
81,30±2,69 |
73,70±2,08 р 1 =0,04 |
80,60±0,92 р 1 =0,81 р 2 =0,01 |
69,3±2,31 p 2 =0,17 |
79,9±1,27 |
83,4±0,73 p 1 =0,03 |
75,7±2,32 р 1 =0,13 р 2 =0,005 |
86,6±0,98 P i =6,0xi0-4 р 2 =0,018 |
|
нейтрофилы |
15,9±1,4 |
19,5±1,66 р 1 =0,11 |
19,7±2,46 p 2 =0,94 |
14,7±1,11 р 1 =0,51 р 2 =0,03 |
17,7±2,73 |
26±2,14 р 1 =0,03 |
18,6±0,75 р 1 =0,75 р 2 =0,004 |
30±2,23 p 2 =0,21 |
19±1,41 |
14,7±0,72 p 1 =0,01 |
21,7±2,41 р 1 =0,34 р 2 =0,012 |
12,1±0,71 P i =4,0xi0-4 р 2 =0,019 |
|
|
моноциты |
0,9±0,28 |
0,4±0,22 p 1 =0,18 |
1,8±0,55 р 1 =0,16 р 2 =0,03 |
0,3±0,21 p 2 =0,75 |
0,6±0,27 |
0,3±0,21 p 1 =0,39 |
0,8±0,29 p 2 =0,18 |
0,7±0,26 p 2 =0,25 |
0,5±0,22 |
0,3±0,15 p 1 =0,47 |
1,2±0,36 р 1 =0,11 р 2 =0,03 |
0,3±0,15 p 2 =1 |
|
|
эозинофилы |
0,4±0,22 |
0,9±0,23 p 1 =0,14 |
1,3±0,52 p=0,49 |
0,4±0,22 p 2 =0,14 |
0,4±0,22 |
0 р 1 =0,09 |
0 |
0 |
0,5±0,22 |
1,4±0,27 р 1 =0,02 |
1,4±0,22 p 2 =1 |
0,9±0,35 |
|
|
Частота полихроматофильных эритроцитов с МЯ в ПК, ‰ |
0,4±0,27 |
1,0±0,45 p 1 =0,27 |
0,6±0,31 p 2 =0,47 |
0,6±0,43 p 2 =0,52 |
0,6±0,31 |
2,8±0,68 p 1 =0,01 |
2±0,52 p 2 =0,36 |
2±0,52 p 2 =0,36 |
0,6±0,31 |
2,8±0,33 P i =i,ixi0-4 |
1,8±0,47 p 2 =0,1 |
1,6±0,4 р 1 =0,06 р 2 =0,03 |
|
|
Частота нормохрома-тофильных эритроцитов с МЯ в ПК, ‰ |
1,09±0,18 |
2,01±0,23 p 1 =0,005 |
1,21±0,25 р 1 =0,70 р 2 =0,03 |
2,12±0,31 p 2 =0,78 |
1,17±0,11 |
2,71±0,35 P i =5,1x10⁻⁴ |
2,93±0,52 p 2 =0,74 |
2,22±0,3 p 2 =0,29 |
0,64±0,11 |
2,37±0,22 P i =i,ixi0 —6 |
0,9±0,11 р 1 =0,10 P 2 =i,ixi0-5 |
1,47±0,16 P i =5,0xi0-4 р 2 =0,004 |
|
|
Частота эритроцитов с МЯ в ПК, ‰ |
0,95±0,15 |
1,8±0,17 p 1 =0,001 |
1,09±0,2 р 1 =0,58 р 2 =0,01 |
1,81±0,25 p 2 =0,97 |
1,05±0,09 |
2,74±0,34 P i =1,6x10⁻⁴ |
1,16±0,14 p 2 =0,16 |
1,4±0,16 p 2 =0,02 |
0,63±0,09 |
2,47±0,21 P i =2,0xi0 —7 |
1,09±0,11 р 1 =0,01 P 2 =i,3xi0-5 |
1,5±0,16 P i =2,0xi0-4 P 2 =2,0xi0-3 |
|
Примечание: * Здесь и в табл. 2 представлены только показатели, по которым зарегистрированы значимые эффекты (или тенденция к ним) у облучённых мышей в результате их контакта с необлучёнными животными-«свидетелями»: р 1 – отличия между облучёнными мышами, находившимися в одной клетке с необлучёнными особями, и животными необлучённого контроля, р 2 – отличия между облучёнными мышами, находившимися в одной клетке с необлучёнными особями, и животными облучённого контроля. К – необлучённый контроль; О – облучённый контроль; О с – группа облучённых мышей, контактировавших с необлучёнными мышами без перегородки; О сп – группа облучённых мышей, контактировавших с необлучёнными мышами через перегородку; ПК – периферическая кровь; МЯ – микроядра.
Радиация и риск. 2026. Том 35. № 3 ЕСТЕСТВЕННЫЕ НАУКИ Научные статьи
В целом, в ближайшие сроки после начала эксперимента преобладает феномен снижения выраженности радиационно-индуцированных изменений в облучённом организме вследствие его контакта с необлучённой особью. Это проявляется нормализацией процентного содержания лимфоцитов и нейтрофилов (обонятельные контакты, 3 сут; клетка без перегородки, 7 и 14 сут), моноцитов (клетка без перегородки, 3 и 14 сут), а также снижением частоты полихроматофильных (обонятельные контакты, 14 сут) и нормохроматофильных (тактильные контакты, 3 сут и клетка с обонятельные и тактильные контакты, 14 сут) эритроцитов крови с микроядрами. Усиление выраженности последствий радиационного воздействия в облучённом организме вследствие его контакта с необлучённой особью наблюдается в отношении абсолютного количества лейкоцитов крови во все сроки эксперимента (оба вида контактов) и возрастание процентного содержания лимфоцитов и снижение нейтрофилов по сравнению с облучённым контролем (14 сут, обонятельные контакты).
Эффекты, регистрируемые у облучённых мышей, контактировавших с необлу-чёнными особями, в отдалённые сроки после начала эксперимента (30-90 дней). Как видно из табл. 2, абсолютное количество лейкоцитов в периферической крови у мышей в отдалённый период после перенесённого радиационного воздействия (30-90 сут) значимо не отличалось от такового показателя в необлучённом контроле. Между тем, у облучённых мышей, находившихся в одной клетке с неэкспонированными животными-«свидетелями», наблюдается заметное снижение этого показателя (или на уровне тенденции) по сравнению с особями облучённого контроля. Такой эффект наблюдался через 60 (тактильные контакты, р=0,01) и 90 сут (обонятельные контакты, р=0,06).
К 30 сут после радиационного воздействия у мышей в крови восстанавливается процентное содержание лимфоцитов, которое количественно не отличается от аналогичного показателя в контроле. Отметим, что в этот срок наблюдается некоторая тенденция к повышению процентного количества лимфоцитов у облучённых мышей по сравнению с неэкспонированными особями (р=0,08), что сопровождается снижением содержания нейтрофилов в крови (р=0,03). Однако у облучённых животных, находившихся в одной клетке с особями-«свидетелями», имеет место значимое снижение процентного содержания лимфоцитов крови по сравнению с облучённым животными (р=0,03 и р=2,0 х 10 -4 для клетки без перегородки и с перегородкой соответственно) и необлучённым контролем (р=0,02 и р=7,0 х 10 -4 для клетки без перегородки и с перегородкой соответственно). Это сопровождается значимым увеличением относительного содержания нейтрофилов (р=0,002 и р=6,5 х 10-3 для клетки без перегородки и с перегородкой соответственно). Тенденция (р=0,09) к снижению уровня лимфоцитов наблюдается на 90 сут после начала эксперимента для экспонированных мышей, имевших обонятельный контакт (клетка с перегородкой) с мышами-«свидетелями» (р=0,09, сравнение с облучённым контролем). При этом на 60 сут наблюдается противоположный эффект, а именно имеет место значимое повышение процентного содержания лимфоцитов крови (отличия от облучённого контроля: р=6,0 х 10-5 и р=0,03 для клетки без перегородки и с перегородкой соответственно). Это привело к существенным различиям по рассматриваемому показателю между облучёнными мышами, находившимися с необлучёнными «свидетелями» в клетке без перегородки, и необлучённым контролем (р=0,02).
Таблица 2
Выраженные эффекты, зарегистрированные у облучённых мышей, находившихся в одной клетке с необлучёнными особями, в отдалённые сроки после радиационного воздействия
|
Показатель |
Время после начала эксперимента, сут |
||||||||||||
|
30 |
60 |
90 |
|||||||||||
|
К |
О |
О с |
О сп |
К |
О |
О с |
О сп |
К |
О |
О с |
О сп |
||
|
Количество лейкоцитов ПК, х 10 6 /мл |
10,46±0,96 |
8,50±0,62 p 1 =0,1 |
7,92±0,74 p 2 =0,56 |
8,61±0,64 p 2 =0,91 |
10,06±0,36 |
10,24±0,62 р 1 =0,81 |
8,09±0,39 р 1 =0,002 р 2 =0,01 |
9,19±0,82 p 2 =0,32 |
11,96±1,01 |
12,61±0,65 р 1 =0,6 |
12,32±0,7 p 2 =0,76 |
10,36±0,9 р 1 =0,25 р 2 =0,06 |
|
|
Лейкоцитарная формула крови (от-носитель-ное содержание клеток, %) |
лимфоциты |
79,5±0,85 |
81,7±0,86 p 1 =0,08 |
73,7±2,19 р 1 =0,024 р 2 =0,003 |
65,3±3,37 P i =7,0x10⁻⁴ Р 2 =2,0х10 -4 |
80,8±1,67 |
78,0±1,07 р 1 =0,18 |
85,9±1,07 р 1 =0,02 Р 2 =6,0х10-5 |
82,9±1,76 р 1 =0,4 р 2 =0,03 |
75,6±1,12 |
77,9±0,97 p 1 =0,14 |
78,8±1,92 p 2 =0,68 |
71,9±3,16 р 1 =0,29 р 2 =0,09 |
|
нейтрофилы |
19,0±0,98 |
16,0±0,82 р 1 =0,03 |
23,7±2,01 р 1 =0,05 р 2 =0,002 |
21,7±1,66 р 1 =0,18 Р 2 =6,5х10 -3 |
17,2±1,66 |
19,8±0,99 р 1 =0,19 |
11,4±1,14 р 1 =0,01 Р 2 =3,0х10-5 |
15,3±1,79 р 1 =0,45 р 2 =0,041 |
22,2±1,06 |
20,1±1,06 p 1 =0,18 |
19,9±1,97 p 2 =0,93 |
19,3±1,16 p 2 =0,616 |
|
|
моноциты |
0,60±0,22 |
0,9±0,23 p 1 =0,36 |
0,8±0,25 p 2 =0,78 |
5,2±1,44 р 1 =0,01 р 2 =0,01 |
0,9±0,28 |
0,7±0,15 р 1 =0,54 |
0,5±0,22 p 2 =0,47 |
0,5±0,17 p 2 =0,39 |
0,7±0,21 |
0,7±0,21 p 1 =1,0 |
0,8±0,25 p 2 =0,77 |
5,1±1,81 р 1 =0,03 р 2 =0,03 |
|
|
эозинофилы |
0,80±0,20 |
1,30±0,21 p 1 =0,10 |
1,7±0,47 p 2 =0,45 |
7,60±2,20 р 1 =0,01 р 2 =0,01 |
1,00±0,26 |
1,40±0,22 р 1 =0,25 |
2,20±0,36 р 1 =0,01 р 2 =0,07 |
1,3±0,37 p 2 =0,82 |
1,40±0,22 |
1,20±0,25 р 1 =0,56 |
0,50±0,22 р 1 =0,01 р 2 =0,05 |
3,60±1,02 р 1 =0,05 р 2 =0,04 |
|
|
Частота полихроматофильных эритроцитов с МЯ в ПК, ‰ |
0,40±0,27 |
0,60±0,31 p 1 =0,63 |
1±0,45 p 2 =0,47 |
0,8±0,33 p 2 =0,66 |
0,20±0,20 |
1,20±0,33 p 1 =0,018 |
1±0,54 p 2 =0,75 |
1,2±0,44 p 2 =1 |
0,40±0,27 |
0,80±0,33 p 1 =0,355 |
1,2±0,53 p 2 =0,53 |
0,6±0,31 p 2 =0,66 |
|
|
Частота нормохрома-тофильных эритроцитов с МЯ в ПК, ‰ |
0,58±0,10 |
0,95±0,13 p 1 =0,037 |
1,2±0,14 p 2 =0,21 |
1,55±0,19 Р 1 =3,0х10 -4 р 2 =0,02 |
0,37±0,14 |
1,05±0,13 p 1 =0,003 |
0,52±0,14 р 1 =0,46 р 2 =0,01 |
1,42±0,24 p 2 =0,2 |
0,26±0,12 |
1,31±0,18 Р 1 =1,0-10-4 |
0,82±0,17 р 1 =0,02 р 2 =0,06 |
1,14±0,23 p 2 =0,57 |
|
|
Частота эритроцитов с МЯ в ПК, ‰ |
0,54±0,06 |
0,88±0,13 p 1 =0,035 |
1,16±0,14 p 2 =0,16 |
1,40±0,16 Р 1 =1,0х10 -4 р 2 =0,02 |
0,34±0,14 |
1,09±0,11 Р 1 =1,0х10-3 |
0,62±0,18 р 1 =0,23 р 2 =0,04 |
1,37±0,21 p 2 =0,24 |
0,29±0,09 |
1,20±0,14 Р 1 =4,0-10-5 |
0,9±0,17 p 2 =0,19 |
1,03±0,22 p 2 =0,52 |
|
|
Количество ядерных клеток в тимусе, х 10 6 |
4,97±0,57 |
4,97±0,24 p 1 =0,99 |
3,53±0,41 p 1 =0,06 p 2 =0,01 |
4,58±0,59 p 2 =0,55 |
|||||||||
|
Количество ядерных клеток КМ, х 10 6 |
20,51±0,96 |
17,02±0,81 p 1 =0,01 |
16,54±0,66 p 2 =0,65 |
19,64±0,76 p 1 =0,49 p 2 =0,03 |
|||||||||
Примечание: К – необлучённый контроль; О – облучённый контроль; О с – группа облучённых мышей, контактировавших с необлучёнными мышами без перегородки; О сп – группа облучённых мышей, контактировавших с необлучёнными мышами через перегородку; ПК – периферическая кровь; МЯ – микроядра; КМ – костный мозг.
Радиация и риск. 2026. Том 35. № 3 ЕСТЕСТВЕННЫЕ НАУКИ Научные статьи
Не выявлены отличия в процентном содержании моноцитов между особями облучённого и необлучённого контроля на 30-90 сут после начала эксперимента. При этом у облучённых животных, имевших обонятельный контакт с мышами-«свидетелями» (клетка с перегородкой) на 30 и 90 сут наблюдается значимое превышение относительного количества этих форменных элементов крови по сравнению с облучённым (р=0,01 и р=0,03) и необлучённым контролем (р=0,01 и р=0,03).
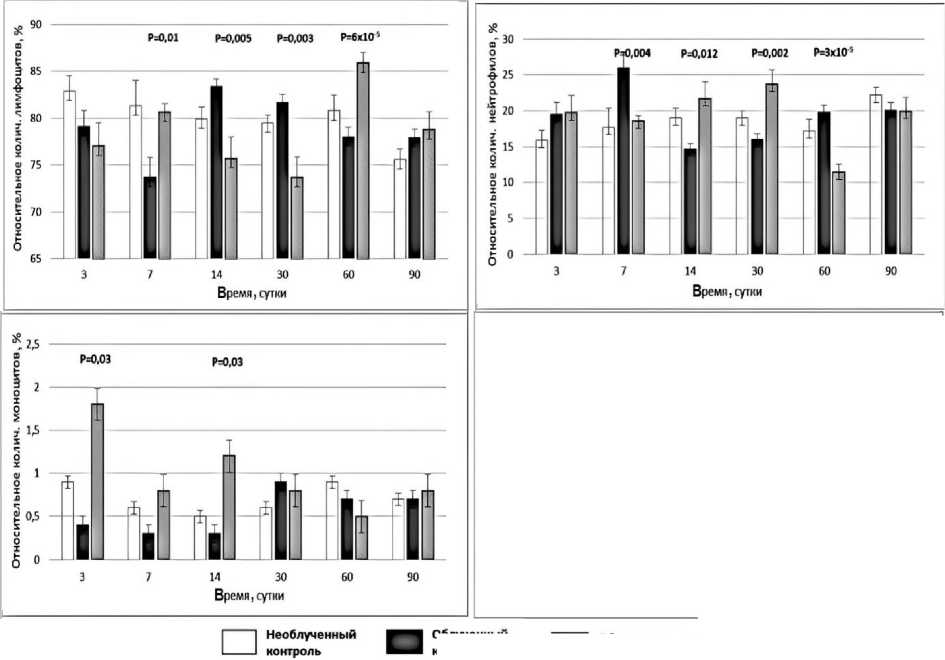
Различие содержания эозинофилов (%) у особей облучённого и необлучённого контроля на 30-90 сут после начала эксперимента не выявлено. При этом у облучённых животных, имевших обонятельный контакт с мышами-«свидетелями» (клетка с перегородкой), на 30 и 90 сут наблюдается существенное превышение относительного количества этих форменных элементов крови по сравнению с облучённым (р=0,01 и р=0,04) и необлучённым контролем (р=0,01 и р=0,05 соответственно). Аналогичная тенденция наблюдалась на 60 сут для клетки без перегородки (отличия от облучённого и необлучённого контроля р=0,07 и р=0,01). Однако, у облучённых мышей, содержавшихся с облучёнными особями в клетке без перегородки, процентное содержание эозинофилов крови на 90 сут снижено по сравнению с экспонированным и необлучённым контролем (р=0,05 и р=0,01).
У облучённых мышей только на 60 сут выявлена повышенная частота полихроматофильных эритроцитов с микроядрами по сравнению с необлучённым контролем (р=0,02). Контакт не-облучённых и облучённых мышей не привёл к значимым отличиям этого показателя у последних от соответствующего экспонированного контроля. У облучённых мышей на 30, 60 и 90 сут выявлены повышенные частоты нормохроматофильных эритроцитов по сравнению с необлучённым контролем (р=0,04, р=0,003 и р=1,0 х 10-4, для указанных выше сроков). Вследствие обонятельного контакта облучённых и необлучённых животных на 30 сут после начала эксперимента выявлено возрастание частоты клеток с этими цитогенетическими нарушениями у экспонированных мышей (отличие от облучённого контроля р=0,02). При этом на 60 и 90 сут для тактильного контакта наблюдался противоположный эффект: у облучённых мышей, контактировавших с необлучёнными «свидетелями», отмечается снижение уровня нормохроматофильных эритроцитов с микроядрами по сравнению с облучённым контролем (р=0,01 и р=0,06 соответственно).
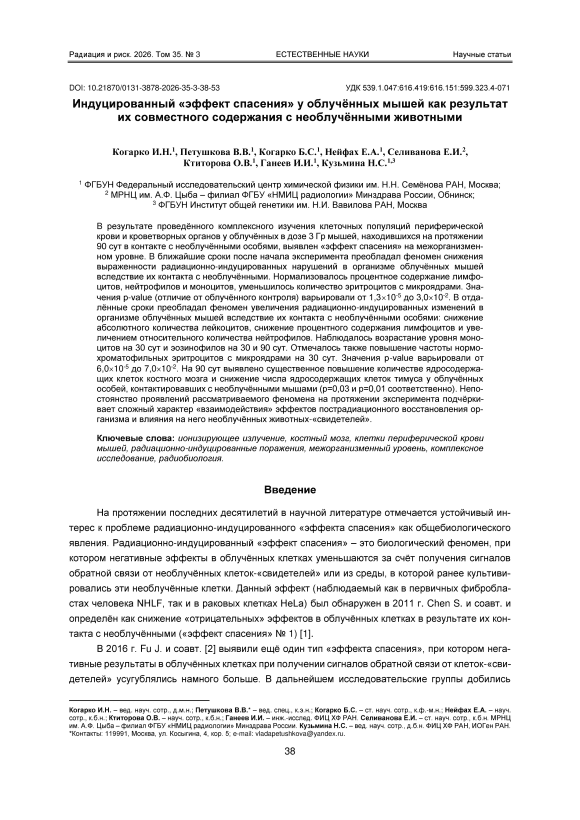
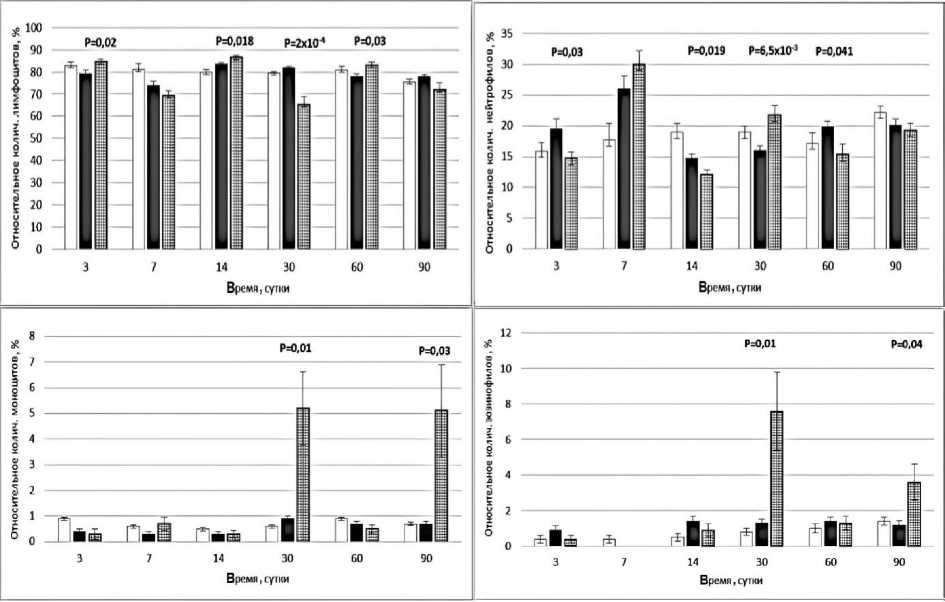
Таким образом, в отдалённые сроки после начала эксперимента преобладает феномен увеличения выраженности радиационно-индуцированных изменений в облучённом организме вследствие его контакта с необлучённой особью. Имеет место также значимое отклонение того или иного показателя у облучённых мышей, контактировавших с необлучёнными, от облучённого контроля, при том, что последний не отличается от необлучённой группы сравнения. Это проявляется снижением абсолютного количества лейкоцитов (60 сут, клетка без перегородки и 90 сут, клетка с перегородкой), снижением процентного содержания лимфоцитов и увеличением относительного количества нейтрофилов (оба вида контакта, 30 сут; обонятельный контакт, 90 сут) и противоположным эффектом на 60 сут (тактильный контакт). Кроме того, наблюдалось возрастание уровня моноцитов (клетка с перегородкой, 30 сут) и эозинофилов (обонятельный контакт, 30 и 90 сут; тактильный контакт 60 сут). При этом на 90 сут после начала эксперимента наблюдается снижение относительного количества эозинофилов у облучённых животных, содержавшихся с необлучёнными особями в клетке без перегородки. Имеет место повышение частоты нормохроматофильных эритроцитов с микроядрами (клетка с перегородкой, 30 сут). Ослабление выраженности последствий радиационного воздействия в облучённом организме вследствие его контакта с необлучённой особью проявляется снижением уровня нормохроматофильных эритроцитов с микроядрами на 60 и 90 сут после начала эксперимента (тактильный контакт) и повышением относительного количества лимфоцитов крови и снижением уровня нейтрофилов (обонятельный контакт, 60 сут). Результаты изменения периферической крови животных при различных условиях их содержания представлены на рис. 1 и 2.
Оценка в конце эксперимента (на 90 сут) количества ядросодержащих клеток тимуса показала их существенное снижение у облучённых особей, находившихся в одной клетке без перегородки с необлучёнными мышами, по сравнению с животными экспонированного контроля. При этом существенных различий по этому показателю между особями необлучённого и облучённого контроля не выявлено.
Итоговая (на 90 сут) оценка количества ядросодержащих клеток костного мозга выявила повышение этого показателя у облучённых особей, находившихся в одной клетке с перегородкой с необлучёнными мышами, по сравнению с животными экспонированного контроля (р=0,03). Однако, у мышей облучённого контроля количество ядерных клеток костного мозга было значительно снижено по сравнению с таковым показателем в необлучённой группе сравнения. Таким образом, мы наблюдаем нормализацию рассматриваемого показателя у облучённых животных в результате их контакта с необлучёнными особями.
Облученный контроль
Рис. 1. Изменение формулы периферической крови мышей при их содержании без перегородки.
Облученные со сеид, без перегородки
□ Необлученный М Облученный БЕЦ Облученные со сеид, контроль контроль с перегородкой
Рис. 2. Изменение формулы периферической крови мышей при их содержании с перегородкой.
Обсуждение
Проведённое комплексное исследование показало, что изменение выраженности последствий радиационного воздействия (клеточный состав крови, генотоксические цитогенетические эффекты, состояние органов кроветворения и лимфопоэза), являющееся результатом тактильного или обонятельного контакта облучённых особей с необлучёнными животными, может происходить в двух направлениях: имеет место как ослабление, так и усиление степени проявлений негативных эффектов воздействия этого мощного мутагена. В определённые сроки после начала эксперимента наблюдалось также возникновение отклонений от контрольных значений у облучённых мышей в результате контакта с необлучёнными особями. Согласно данным, полученным на клеточных культурах в исследовании [11], «положительное» и «отрицательное» влияние необ-лучённых «свидетелей» на состояние облучённых клеток предложено относить к «эффекту спасения» I и II типа. При этом авторы не исключают того, что «эффект спасения» II следует выделить как отдельный феномен. Полученные нами данные на животных ( in vivo ) согласуются с результатами этой работы. На данном этапе мы будем использовать ту же терминологию.
В целом направленность эффекта, являющегося результатом совместного содержания облучённых особей с необлучёнными, зависит от анализируемого показателя, времени, прошедшего после радиационного воздействия, вида контакта между этими животными (обонятельный или тактильный). Если в ближайшие сроки после начала эксперимента преобладает феномен снижения выраженности радиационно-индуцированных изменений в облучённом организме вследствие его контакта с необлучённой особью, то есть «эффект спасения» I типа, тогда в отдалённые сроки наблюдался противоположный «эффект спасения» II типа (табл. 3).
Проявления «эффекта спасения» в клетках периферической крови и кроветворных органах облучённых мышей в результате их контакта с необлучёнными особями в разные сроки после начала эксперимента
Таблица 3
|
Ближайшие сроки |
Отдалённые сроки |
|||
|
«эффект спасения» тип 1 |
«эффект спасения» тип 2 |
«эффект спасения» тип 1 |
«эффект спасения» тип 2 |
|
|
Клетки без перегородки |
лимфоциты (↑, 7, 14 сут) нейтрофилы (↓, 7; ↑, 14 сут) моноциты (↑, 3, 14 сут) МЯ НХЭ (↓, 3, 14 сут) |
лейкоциты (↓, 3-14 сут) |
МЯ НХЭ (↓, 60, 90 сут) |
лейкоциты (↓, 60 сут) лимфоциты (↓, 30 сут; ↑, 60 сут) нейтрофилы (↑, 30 сут; ↓, 60 сут) эозинофилы (↑, 60 сут; ↓, 90 сут) масса тимуса (↓, 90 сут) |
|
Клетки с перегородкой |
лимфоциты (↑, 3 сут) нейтрофилы (↓, 3 сут) МЯ ПХЭ (↓, 14 сут) МЯ НХЭ (↓, 14 сут) |
лейкоциты (↓, 3, 14 сут) лимфоциты (↑, 14 сут) нейтрофилы (↓, 14 сут) |
Лимфоциты (↑, 60 сут) нейтрофилы (↓, 60 сут) ЯС клетки КМ (↑, 90 сут) |
лейкоциты (↓, 90 сут) лимфоциты (↓, 30, 90 сут) нейтрофилы (↑, 30 сут) моноциты (↑, 30, 90 сут) эозинофилы (↑, 30,90 сут) МЯ НХЭ (↑, 30 сут) |
Примечание: «эффект спасения» тип 1 – снижение радиационно-индуцированных изменений; «эффект спасения» тип 2 – усугубление изменений; ↑ – повышение показателя, ↓ – снижение показателя; МЯ – микроядра; НХЭ – нормохроматофильные эритроциты; ПХЭ – полихроматофильные эритроциты; ЯС – ядросодержащие; КМ – костный мозг.
Радиация и риск. 2026. Том 35. № 3 ЕСТЕСТВЕННЫЕ НАУКИ Научные статьи
В нашей предыдущей публикации [12] мы обобщили результаты изучения «эффекта свидетеля», проявляющегося появлением отклонений ряда рассмотренных показателей у необлу-чённых особей-«свидетелей», контактировавших с облучёнными мышами. Наибольшая выраженность этого феномена, проявившегося системными нарушениями кроветворения у необлу-чённых мышей, совместно содержавшихся с облучёнными животными, наблюдалась в отдалённые сроки после начала эксперимента. Таким образом, вероятно, имеет место «накопление сигналов повреждения», получаемых необлучёнными мышами от экспонированных соседей. В свою очередь создаётся впечатление, что имеет место значение «дозы» этого кумулятивного сигнала, когда возникает обратная связь, проявляющаяся ответным влиянием мышей-«свидетелей» на облучённых особей. Сначала этот эффект «положительный» – соответствует наименьшей выраженности негативных проявлений у необлучённых «свидетелей» и индукции у облучённых животных «эффекта спасения» I типа. При нарастании негативных эффектов у мышей-«свидетелей» в их организме индуцируются «повреждающие негативные сигналы» влияния на облучённых соседей, что соответствует индукции у последних «эффекта спасения» II типа.
Отметим, что значимое снижение количества ядросодержащих клеток тимуса у облучённых особей, находившихся в одной клетке без перегородки (тактильный контакт) с необлучён-ными мышами, по сравнению с животными экспонированного контроля (р=0,01) сопровождается следующим. Во-первых, имело место существенное повышение процентного содержания лимфоцитов крови на 7 сут после начала эксперимента, что является проявлением «эффекта спасения» I типа. Во-вторых, наблюдалось повышение относительного количества этих форменных элементов крови на 60 сут, соответствующее «эффекту спасения» II типа. Можно полагать, что реализация этих двух типов «эффекта спасения» связана с атрофией тимуса, вызванная «стресс-индуцированным» (результат сигналинга, запускающего «эффект спасения») выходом из него предшественников зрелых лимфоцитов.
Значимое повышение количества ядерных клеток костного мозга у облучённых особей, находившихся в одной клетке с перегородкой (обонятельный контакт) с необлучёнными мышами, по сравнению с животными экспонированного контроля, сопровождается следующим. Во-первых, наблюдалось снижение уровня эритроцитов с микроядрами на 14 сут после начала эксперимента у облучённых мышей, контактировавших с необлучёнными, по сравнению с таковым показателем в облучённом контроле, что является проявлением «эффекта спасения» I типа. В этом случае не исключена программа запуска апоптотической гибели клеток эритроидного ряда с повреждённым геномом и как результат – компенсаторное увеличение пролиферативной активности клеток костного мозга. Во-вторых, у облучённых мышей, контактировавших с необлучёнными, имело место увеличение процентного содержания моноцитов и эозинофилов в периферической крови по сравнению с облучённой группой сравнения, что являлось проявлением «эффекта спасения» II типа. Это неизбежно связано со стимуляцией деления ядросодержащих костномозговых предшественников этих субпопуляций лимфоцитов. Таким образом, как и в случае изменения состояния тимуса, наблюдаемая нормализация клеточности костного мозга может являться результатом реализации «эффекта спасения» двух типов.
Следует подчеркнуть, что непостоянство проявлений рассматриваемого феномена на протяжении трёх месяцев эксперимента, подчёркивает сложный характер «взаимодействия» эффектов пострадиационного восстановления организма и влияния на него сигналов от необлучённых животных-«свидетелей».
Заключение
Таким образом, обобщение и анализ результатов исследований выявили у облучённых мышей в процессе их контактов с неэкспонированными особями эффекты, свидетельствующие о реальности индукции феномена «спасения» в организмах экспериментальных животных, уже достаточно хорошо описанные другими исследователями на клеточных культурах. Показано, что передача «сигналов» от необлучённых мышей-«свидетелей» их облучённым «соседям» может приводить к реализации «эффекта спасения» двух типов, характеризующихся разной направленностью (уменьшение или увеличение выраженности радиационно-индуцированных измене-ний/повреждений). К сожалению, механизмы этого сложного феномена на межорганизменном уровне практически не изучены. Что касается исследований in vitro , большая роль в его реализации отводится сигнальному пути циклического аденозинмонофосфатная (освобождение cAMP из клеток-«свидетелей»), участвующему в функционировании ядерного фактора NF-κB в облучённых клетках. На активность последнего, как показано, влияют и NO-опосредованные механизмы.
Финально – в данной работе при совместном содержании необлучённых и облучённых мышей на протяжении 90 сут эксперимента зафиксировали «эффект спасения». Наблюдаемый контакт между необлучёнными и облучёнными животными даёт новое представление о дистанционных эффектах при радиационно-индуцированном облучении.
Работа выполнена рамках темы Государственного задания Минобрнауки России «Молекулярная и химическая физика биологических процессов», регистрационный номер 125012200614-6, регистрационный номер ПТНИ (заявки) 1024040100181-4. Частично работа выполнена в рамках подтемы Государственного задания Минобрнауки России «Разработка прогностической модели оценки индивидуальных рисков индукции отдалённых генетических и эпигенетических нарушений в организме человека, подвергшегося генотоксическому воздействию» (номер госрегистрации № 125091010190-9).
