
К вопросу модернизации технологии по утилизации крупных древесных остатков в полезащитных лесных полосах
Журнал: Лесохозяйственная информация @forestry-information
Рубрика: Защита лесов
Статья в выпуске: 3, 2026 года.
Бесплатный доступ
Многолетние исследования сукцессии микоассоциаций берёзы в полезащитных лесных полосах показали, что скорость биодеградации её древесины напрямую зависит от доступа к ней дендробионтных базидиомицетов. Использование мицелированной древесины в качестве инокулюма при складировании поленьев обеспечивает эффективное заражение всего объёма древесного сырья и создаёт оптимальные условия для его ускоренного разложения. Поскольку для решения различных задач по биодеградации крупных древесных остатков берёзы требуются специфические штаммы грибов, не представленные на рынке в виде готовых биопрепаратов, необходимо проведение дальнейших изысканий в этой области.
Короткий адрес: https://sciup.org/143186231
IDS: 143186231 | УДК: 630.4+632.4 | DOI: 10.24419/LHI.2304-3083.2026.3.06
On the Issue of Modernization of Technology for the Biodegradation of Coarse Woody Debris in Protective Forest Belts
Long-term studies of the mycosuccession of birch in protective forest belts have shown that the rate of biodegradation of its wood directly depends on the access of dendrobiont basidiomycetes to it. The use of micellated wood as an inoculum when storing logs ensures effective contamination of the entire volume of wood raw materials and creates optimal conditions for its accelerated decomposition. Since specific strains of fungi that are not available on the market in the form of ready-made biological products are required to solve various problems of biodegradation of birch coarse woody debris, further research in this area is necessary.
Текст научной статьи К вопросу модернизации технологии по утилизации крупных древесных остатков в полезащитных лесных полосах
Введение
В условиях современных климатических трансформаций проблема санитарного состояния деградирующих полезащитных лесных полос в Центральной Нечерноземной зоне приобретает особую актуальность. Реформирование системы колхозных лесничеств привело к тому, что древесина, получаемая в ходе санитарных рубок в лесных полосах, стала невостребованной [1]. Ситуацию усугубляют сложности с транспортировкой и утилизацией неликвидной древесины хвойных и лиственных пород. Вместе с тем использование процессов биодеградации является перспективным направлением для поиска грибных культур, способных ускорить разложение крупных древесных остатков (КДО) непосредственно в местах их раскряжёвки [2]. Наибольшее влияние на деструкцию КДО оказывают базидиальные политрофы. Группа биотрофов представлена грибами, имеющими высокий уровень агрессивности и широкий спектр условий поселения, что исключает их применение для задач биодеградации древесины [3]. В настоящее время организации, ответственные за содержание полезащитных лесных полос, проявляют повышенный интерес к экологически безопасным методам утилизации древесных отходов. В связи с этим грибы, развивающиеся на отмершей древесине, такие как ксилотрофы, сапроксилотрофы и гумифика-торы, приобретают особое значение в качестве биологических катализаторов для ускорения процессов разложения древесины.
Цель исследования – изучение перспективных видов ксилотрофных и сапроксилотрофных дендробионтных грибов в рамках технологии биодеградации КДО в полезащитных лесных полосах (на примере представителей рода Betula ).
Объекты и методы исследования
С 2017 по 2025 г. на территории Московской и Рязанской областей проведено обследование полезащитных лесных полос с преобладанием деревьев берёз повислой (Betula pendula) и пушистой (B. pubescens). Мониторинг осуществляли на 99 пробных площадях, где было отобрано 297 модельных деревьев. Для детального анализа подбирали экземпляры с выраженными признаками патогенного поражения [4, 5], оценивали состояние штамба, средней части ствола, вершины и ветвей первого порядка (в верхней, средней и нижней частях кроны). С модельных деревьев отбирали плодовые тела грибов, прикреплённые к субстрату, фрагменты коры, пробы древесины ствола, образцы побегов с листьями и корней [6–8]. Для изучения корневой системы проводили её частичную раскопку с отбором образцов, имеющих видимые патологические изменения [9].
Собранные образцы грибов гербаризировали в соответствии с утверждёнными методическими рекомендациями: фиксировали морфологические характеристики плодовых тел и сохраняли типовые участки поражённых тканей для последующего микологического анализа [8, 10]. Каждый образец маркировали с указанием места и даты отбора, номера пробной площади и модельного дерева.
Границы энзимного взаимодействия определяли путём разбора образцов по годичным кольцам с применением метода «влажной камеры». Для этого отбирали образцы поперечного сечения ствола в зоне активного плодоношения [11–13].
Исследования морфологического строения спор, мицелиальных нитей и интенсивности развития мицелия в древесине осуществляли методом прямого микроскопирования. Для анализа использовали оптический микроскоп Nikon E200 (объективы 4х-100х, окуляры 10х и 15х) и бинокулярный стереоскопический микроскоп МБС-9 с диапазоном увеличения 3,33–100 крат [13, 14]. Видовую принадлежность грибов устанавливали по справочникам-определителям и научным публикациям [15–28]. Стадии развития грибов фиксировали, а для многолетних плодовых тел дополнительно определяли возраст [29]. Современное таксономическое положение исследуемых видов устанавливали на основе актуальных данных международных баз данных Index Fungorum и MycoBank (по состоянию на 2026 г.).
Результаты и обсуждение
В ходе многолетних исследований установлено, что в биодеградации КДО берёзы участвуют три группы базидиальных политрофов. Группа ксилотрофов представлена родами Bjerkandera, Fomitopsis, Ganoderma, Inonotus, Lenzites, Oxyporus, Phellinus, Pleurotus, Skeletocutis, Stereum, Trametes, что свидетельствует о высокой энзимной активности грибов. Группу сапроксилотрофов формируют грибы родов Cerrena, Hymenochaete, Hydnophlebia, Phlebiopsis, обеспечивающие глубокое разрушение древесины. На завершающем этапе деструкции древесины ведущая роль переходит к агарикоидным базидиомицетам, представленным сапроксилотрофами-гумифи-каторами родов Coprinellus, Hypholoma, Mycena, Pholiota (табл. 1).
Исследования полезащитных полос из берёзы показали, что смена грибных сообществ здесь происходит по принципу антагонизма: на начальной стадии наблюдается конкуренция между активными и пассивными антагонистами. В ходе микогенной сукцессии первоначально на древесине доминируют биотрофы, некротрофы и кси-лотрофы. На следующем этапе они вытесняются грибами, способными на обратный антагонизм, в основном сапроксилотрофами. В дальнейшем при снижении биоразнообразия в грибном комплексе отмечалось «возвращение» к изначальным стратегиям взаимодействия, но уже между сапроксилотрофами и гумификаторами.
Особенность химического состава коры берёзы, содержащей бетулин, формирует особую стратегию преодоления грибами защитных механизмов дерева. Установлено, что поселение ксилотрофов крайне затруднено из-за отсутствия механических повреждений ствола и активного подавления их роста защитными веществами, содержащимися в коре и заболони деревьев.
Процесс колонизации ксилотрофами КДО берёзы начинается ещё на стоящих деревьях. В ходе освоения субстрата грибы родов Bjerkandera, Inonotus, Fomes, Pleurotus и Trametes вступают в острую конкурентную борьбу за питание как с агариковыми биотрофами (Armillaria ostoyae, Flammulina velutipes), так и с полипоральными видами (Fomes fomentarius, Phellinus igniarius). Это приводит к образованию зон мицелиального антагонизма. В условиях дефицита питательных веществ наблюдаются адаптивные механизмы: например, растущие на стволе вместе Trametes hirsuta и Fomes fomentarius способны продолжать развитие на субстрате даже после его перехода в стадию сухой гнили. Параллельно происходит заселение древесины видами Hymenochaete tabacina и Irpex lacteus, причем H. tabacina проявляет высокую конкурентоспособность, вытесняя другие ксилотрофы при достижении влажности древесины 50%.
Наибольшую сложность представляет запуск процесса биодеградации у ветровальных деревьев. Анализ модельных образцов выявил три основные пути проникновения патогенов: через обломанные ветви, механические повреждения ствола и корневую систему (в последнем случае первичным агентом выступают грибы рода Armillaria ). При повреждении ветвей или коры (например, в результате ошмыга ствола при падении) группа первопоселенцев включает Bjerkandera adusta, Inonotus obliquus, Lenzites betulina, Pleurotus ostreatus, Pallidohirschioporus biformis, Stereum hirsutum, Trametes hirsuta, Trametes versicolor . В среднем в состав патокомплекса одного дерева входит 4 вида денд-робионтных базидиомицетов, на модельных деревьях с механическими повреждениями коры и ветвей – до 5 видов, в то время как на неповреждённых деревьях этот показатель в среднем составляет лишь 2,8 (рис. 1).
Для анализа закономерностей развития дендробионтных базидиомицетов в условиях ослабления защитного действия бетулина были заложены два полевых эксперимента на берёзовых сегментах. В первом случае, при исходной влажности древесины 28%, на торцах брёвен с плодовыми телами Trametes versicolor сформировалась мозаика зон энзимной интерференции.
Таблица 1. Сукцессионные группы широких базидиальных политрофов, участвующих в биодеградации КДО берёзы в районе исследования
|
Экологотрофическая группа |
Название вида |
Живые деревья |
Сухостой |
Валеж |
ик |
Гумифицированная древесина |
|
Ксилотрофы |
Bjerkandera adusta (Willd.) P. Karst. |
На отмерших тканях |
▼ |
^ |
||
|
Bjerkandera fumosa (Pers.) P. Karst. |
На отмерших тканях |
▼ |
^ |
|||
|
Fomitopsis pinicola (Sw.) P. Karst. |
На отмерших тканях |
▼ |
^ |
|||
|
Polyporus lipsiensis (Batsch) E.H.L. Krause |
На отмерших тканях |
▼ |
^ |
|||
|
Ganoderma lucidum (Curtis) P. Karst |
На отмерших тканях |
▼ |
^ |
|||
|
Inonotus rheades (Pers.) Bondartsev & Singer |
На отмерших тканях |
▼ |
^ |
|||
|
Lenzites betulina (Fr.) Fr. |
На отмерших тканях |
▼ |
^ |
|||
|
Oxyporus populinus (Schumach.) Donk |
На отмерших тканях |
▼ |
^ |
|||
|
Phellinus laevigatus (P. Karst.) Bourdot & Galzin |
На отмерших тканях |
▼ |
^ |
|||
|
Pallidohirschioporus biformis (Fr.) Y.C. Dai, Yuan Yuan & M. Zhou |
На отмерших тканях |
▼ |
^ |
|||
|
Fomitiporia punctata (P. Karst.) Murrill |
На отмерших тканях |
▼ |
^ |
|||
|
Pleurotus ostreatus (Jacq.) P. Kumm. |
На отмерших тканях |
▼ |
^ |
|||
|
Skeletocutis nivea (Jungh.) Jean Keller |
На отмерших тканях |
▼ |
^ |
|||
|
Stereum gausapatum (Fr.) Fr. |
На отмерших тканях |
▼ |
^ |
|||
|
Stereum hirsutum (Willd.) Pers. |
На отмерших тканях |
▼ |
^ |
|||
|
Trametes gibbosa (Pers.) Fr. |
На отмерших тканях |
▼ |
^ |
|||
|
Trametes hirsuta (Wulfen) Lloyd |
На отмерших тканях |
▼ |
^ |
|||
|
Trametes pubescens (Schumach.) Pil a t |
На отмерших тканях |
▼ |
^ |
|||
|
Trametes versicolor (L.) Lloyd |
На отмерших тканях |
▼ |
^ |
|||
|
Сапрокси-лотрофы |
Phlebiopsis gigantea (Fr.) J u lich |
Твердая сухая гниль |
▼ |
^ |
||
|
Antrodiella semisupina (Berk. & M.A. Curtis) Ryvarden |
Твердая сухая гниль |
▼ |
^ |
|||
|
Cerrena unicolor (Bull.) Murrill |
Твердая сухая гниль |
▼ |
^ |
|||
|
Datronia mollis (Sommerf.) Donk |
Твердая сухая гниль |
▼ |
^ |
|||
|
Hymenochaete tabacina (Sowerby) L e v. |
Твердая сухая гниль |
▼ |
^ |
|||
|
Irpex lacteus (Fr.) Fr. |
Твердая сухая гниль |
▼ |
^ |
|||
|
Hydnophlebia chrysorhiza (Eaton) Parmasto |
Твердая сухая гниль |
▼ |
^ |
|||
|
Гумификаторы |
Coprinellus disseminatus (Pers.) J.E. Lange |
Мягкая гниль |
▼ |
^ |
||
|
Coprinellus micaceus (Bull.) Vilgalys, Hopple & Jacq. Johnson |
Мягкая гниль |
▼ |
^ |
|||
|
Hypholoma capnoides (Fr.) P. Kumm. |
Мягкая гниль |
▼ |
^ |
|||
|
Hypholoma fasciculare (Huds.) P. Kumm. |
Мягкая гниль |
▼ |
^ |
|||
|
Hypholoma lateritium (Schaeff.) P. Kumm. |
Мягкая гниль |
▼ |
^ |
|||
|
Mycena galericulata (Scop.) Gray |
Мягкая гниль |
▼ |
^ |
|||
|
Mycena haematopus (Pers.) P. Kumm. |
Мягкая гниль |
▼ |
^ |
|||
|
Pholiota adiposa (Batsch) P. Kumm. |
Мягкая гниль |
▼ |
^ |
|||
Примечание: ▼ - поселение на субстрате; ^ - продолжение развития на следующей стадии биодеградации субстрата.
Гумифицированный валежник (n=51)
Ветровал старше 2-х лет (n=72)
Ветровал текущего года (n=54)
Сухостой 2-х лет (n=63)
Усыхающие (n=57)
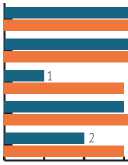
Деревья без повреждения ствола
Деревья с механическими повреждениями ствола
Рис.1. Биоразнообразие дендробионтных базидиомицетов на модельных деревьях, имеющих различные повреждения ствола
Спустя полгода наблюдений было зафиксировано активное заселение субстрата сапроксилотрофом Skeletocutis nivea , который продемонстрировал высокую конкурентоспособность по отношению к T. versicolor при повышении влажности древесины до 63%. Во втором опыте на сегментах с мицелием Fomes fomentarius (начальная влажность 28%) через 6 мес. произошло полное вытеснение исходного вида грибом Pallidohirschioporus biformis , что сопровождалось ростом влажности субстрата до 68%. Полученные данные подтверждают, что интенсивность биодеградации древесины напрямую коррелирует с уровнем её влажности, определяющим биохимическую активность сапроксилотрофов.
В ходе серии экспериментов была апробирована модель природоподобной технологии – использование поленницы в качестве биореактора для утилизации древесных отходов. Технологический процесс включал раскряжёвку модельных деревьев и их последующую укладку в поленницы объёмом 1 м 3 на специально отведённых площадях (за исключением зон с гумифицированной древесиной). Исследование охватывало три сценария: А – биодеградация берёзы в составе смешанных поленниц; Б – глубокая переработка берёзовой древесины в поленницах; В – технология получения лигногумата.
Установлено, что для ускорения процесса биодеградации КДО оптимальным является формирование поленниц из древесины одной породы, где не менее 30% объёма составляют образцы, уже поражённые мицелием. Процесс деструкции идет поэтапно: на начальном этапе доминируют Pleurotus ostreatus и Stereum hirsutum; на промежуточном – Trametes hirsuta и Bjerkandera adusta; финальная стадия обеспечивается инокуляцией грибов родов Coprinellus и Hypholoma. Результаты эксперимента показали, что эффективная инокуляция поленниц споровым раствором возможна преимущественно при использовании грибов родов Coprinellus и Hypholoma. В то же время выделение чистых культур ксилотрофных грибов сопряжено со значительными трудностями; исключение составил Pleurotus ostreatus, мицелирование которым было успешным в 24% случаев. Эффективное проникновение мицелия в соседние поленья в составе поленницы (до трёх месяцев) обеспечивали сегменты, заражённые мицелием Trametes hirsuta, Bjerkandera adusta и Stereum hirsutum.
Практика закладки мицелированных поленьев в поленницы подтвердила целесообразность этого метода для глубокой переработки сырья. Аналогичный положительный эффект был достигнут при использовании комплекса дендробионтных базидиомицетов (деструкторов бетулина), включающего Inonotus obliquus и Stereum hirsutum , которые способны успешно колонизировать немодифицированную древесину. Активными деструкторами лигнина были грибы рода Trametes, Pallidohirschioporus biformis, а деструкторами ксилана – Bjerkandera adusta, B. fumosa, Lenzites betulina . На завершающем этапе модифицированную древесину заселял Hydnophlebia chrysorhiza , способный разрушать кору и продукты ксилолиза.
В ходе исследования технологии получения лигногумата из древесного сырья было установлено, что оптимальным субстратом являются берёзовые поленницы. Процесс включает первичную биомодификацию грибами Pleurotus ostreatus и Stereum hirsutum , после чего требуется инокуляция поленниц мицелием Hymenochaete tabacina , Hydnophlebia chrysorhiza и Sceletocutis nivea (табл. 2). Для интенсификации процесса биодеструкции целесообразно использовать препараты на основе Phlebiopsis gigantea [30] в качестве биоактиваторов.
Таблица 2. Структура микокомплексов для биодеструкции древесины берёзы в поленницах-биореакторах
|
Вариант утилизации КДО |
Назначение |
Грибной комплекс |
|
А. Биодеградация берёзы в смешанных поленницах |
Пионеры (старт) |
Pleurotus ostreatus, Stereum hirsutum . |
|
Активаторы |
Trametes hirsuta, Bjerkandera adusta . |
|
|
Стабилизаторы |
Род Coprinellus, Hypholoma |
|
|
Б. Глубокая переработка древесины березы в поленницах |
Детоксикатор |
Inonotus obliquus, Stereum hirsutum |
|
Деструкторы лигнина |
Род Trametes, Pallidohirschioporus biformis |
|
|
Деструкторы ксилана |
Bjerkandera adusta, Bjerkandera fumosa, Lenzites betulina |
|
|
Архитектор гумуса |
Hydnophlebia chrysorhiza |
|
|
В. Получение лигногумата |
Пионеры (старт) |
Pleurotus ostreatus, Stereum hirsutum |
|
Активаторы |
Hymenochaete tabacina, Hydnophlebia chrysorhiza, Sceletocutis nivea |
|
|
Стабилизаторы |
Phlebiopsis gigantea |
Заключение
По данным многолетних исследований на большой выборке модельных деревьев и пробных площадей установлено, что процесс биодеградации древесины берёзы существенно зависит от прямого доступа к ней дендробионтных базидио-мицетов. Внесение мицелированной грибными агентами древесины в поленницы позволяет обеспечить условия биодеградации, т.е. устойчивое заражение всей древесины. Поскольку для решения различных задач по биодеградации КДО берёзы требуются специфические штаммы грибов, не представленные на рынке в виде готовых биопрепаратов, необходимо проведение дальнейших изысканий в этой области.
Исследование выполнено в рамках
Государственного задания Министерства науки и высшего образования РФ (тема № FGGU-2025-0007)
