
Морфологическая изменчивость и эколого-биологические особенности Stuckenia pectinata (Potamogetonaceae) на Западно-Сибирской равнине и Казахском мелкосопочнике
Статья: Морфологическая изменчивость и эколого-биологические особенности Stuckenia pectinata (Potamogetonaceae) на Западно-Сибирской равнине и Казахском мелкосопочнике
Журнал: Вестник Пермского университета. Серия: Биология @vestnik-psu-bio
Рубрика: Ботаника
Статья в выпуске: 3, 2026 года.
Бесплатный доступ
Представлены новые данные о морфологической изменчивости и эколого-биологических особенностях Stuckenia pectinata (L.) Börner. Материал получен на севере Казахстана и в западносибирских регионах России в 1982–2025 гг. Выполнен анализ 125 гербарных образцов S. pectinata из 57 водных объектов. Отмечено, что максимальная длина побегов S. pectinata достигает 4.5 м. Длина листьев составляет 1.4–9.1 см, при этом популяции с листьями длиной 1.4–2.2 см отмечены впервые. Ширина листьев S. pectinata варьирует в пределах от 0.2 мм до 5 мм. Отмечена отрицательная зависимость ширины листьев S. pectinata от прозрачности воды. Длина плодиков S. pectinata в разных популяциях варьирует от 2.1 мм до 5.8 мм, представляя непрерывный ряд (континуум). Узколистные мелкоплодные формы с длиной плодиков 2.1–3.0 мм распространены на мелководьях до 0.1–0.7 м при прозрачности воды до дна. Крупноплодная форма с плодиками 4.5–5.0 мм длиной, известная как таксон S. macrocarpa (Dobrochot.) Tzvelev, является синонимом S. pectinata. Наиболее продуктивные популяции вида, занимающие иногда акватории до десятков квадратных километров, отмечены в хлоридно-натриевых водах с минерализацией 0.67–4.96 г/дм3, жесткостью 4.91–28.53 мг-экв/дм3, рН = 7.6–8.8 (9.2). Важная биологическая особенность S. pectinata проявляется в конце вегетационного периода. В сентябре-октябре побеги образуют в основании особый отделительный слой длиной 2–3 см, поэтому основная часть фитомассы выносится ветровыми течениями на берег, формируя береговые валы высотой до 0.5–1.0 м и протяженностью от сотен метров до нескольких километров. В итоге деструкция органического вещества и стратификация семян S. pectinata происходит в основном не в воде, а на суше.
Короткий адрес: https://sciup.org/147255434
IDS: 147255434 | УДК: 58.04 | DOI: 10.17072/1994-9952-2026-3-272-282
Morphological variability and ecological and biological features of Stuckenia pectinata (Potamogetonaceae) in the West Siberian Plain and the Kazakh Uplands
Morphological variability and ecological-biological features of Stuckenia pectinata (L.) Börner are discussed. The material was obtained in Northern Kazakhstan and in the West Siberian regions of Russia in 1982–2025. 125 herbarium samples of S. pectinata from 57 water bodies were analyzed. The maximum length of shoots of S. pectinata is 4.5 m. The length of the leaves is 1.4–9.1 cm, and populations with 1.4–2.2 cm long leaves are reported for the first time. The width of the leaves of S. pectinata varies between 0.2 mm to 5 mm. The width of the leaves of S. pectinata was found to have a negative correlation with water transparency. The length of the fruits of S. pectinata in various populations continuously varies between 2.1 mm to 5.8 mm. Narrow-leaved small-fruit forms with 2.1–3 mm long fruits are common in shallow waters up to 0.1–0.7 m deep provided water is transparent down to the bottom. A large-fruit form with 4.5–5 mm long fruits known as taxon S. macrocarpa (Dobrochot.) Tzvelev is a synonym of S. pectinata. The most productive populations of the species, sometimes occupying water areas up to tens of square kilometers, were found in sodium chloride waters with total dissolved solids 0.67–4.96 g/dm3, hardness 4.91–28.53 meq/dm3, рН = 7.6–8.8 (9.2). The underground shoot system of S. pectinata has annual apical wintering tubers. An important biological peculiarity of S. pectinata is observed in the end of vegetation period. In September and October, the basal parts of the submersed shoots form a detachable layer 2–3 cm long. As a result, the submersed shoots easily detach from the underground part to be brought by wind-drift currents to the bank forming bank levees up to 0.5–1 m high and up to several kilometers long. Thus, destruction of the organic substance and stratification of S. pectinata seeds mostly take place not in water, but on land.
Текст научной статьи Морфологическая изменчивость и эколого-биологические особенности Stuckenia pectinata (Potamogetonaceae) на Западно-Сибирской равнине и Казахском мелкосопочнике
Stuckenia pectinata (штукения гребенчатая) – космополитный представитель семейства рдестовых ( Po-tamogetonaceae Bercht. et J. Presl.), имеющий большое экологическое значение в природных и техногенных водных объектах. Вид распространен в континентальноводных и морских экосистемах. Особенно большое ценозообразующее значение S. pectinata имеет в лесостепной, степной и пустынной природноклиматических зонах Земли с суммой активных температур свыше 1700°С. Известны примеры массового развития S. pectinata в больших озерах, где одновидовые или маловидовые фитоценозы с доминированием этого вида занимают акваторию до 20–30 км2 при проективном покрытии 80–100% (рис. 1).
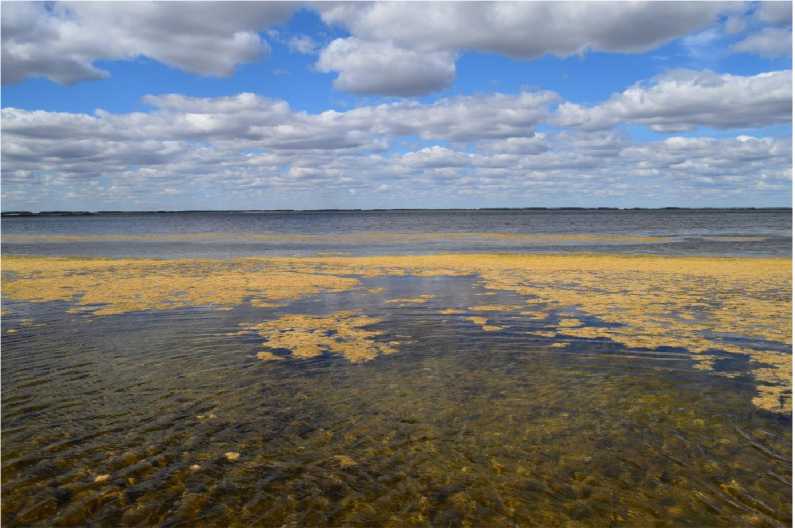
Рис. 1. Фитоценоз Stuckenia pectinata + Cladophora glomerata (L.) Kütz. в оз. Лебяжьем (Оконешниковский р-н, Омская обл.)
[Phytocenosis of Stuckenia pectinata + Cladophora glomerata (L.) Kütz. in the Lake Lebyazhy (Okoneshnikovsky district, Omsk region)]
В связи с очень обширным ареалом и высокой экологической толерантностью к ведущим факторам водной и грунтовой сред S. pectinata отличается значительной морфологической изменчивостью [Юзеп-чук, 1934; Доброхотова, 1956; Kaplan, 2002, 2008]. Морфология этого вида зависит от условий окружающей среды и значительной генетической дифференциации разных популяций [Patten, Boyer, 2023]. Широко распространенный вид S. pectinata демонстрирует внутривидовую генетическую изменчивость, которая структурирована географически [Fehrer et al., 2022]. Этот важный ценозообразователь и продуцент остается еще недостаточно изученным как в морфологическом, так и в экологическом отношении, поэтому дальнейшие всесторонние исследования биологии этого растения остаются актуальными.
Цель работы заключается в обобщении полевых материалов о морфологической изменчивости и экологобиологических особенностях Stuckenia pectinata (L.) Börner ( Potamogeton pectinatus L. – рдест гребенчатый), полученных в северных областях Казахстана и некоторых западносибирских регионах России.
Материалы и методы исследования
Материал получен в период 1982–2025 гг. Полевые исследования охватывали северные области Казахстана (Северо-Казахстанская, Кокчетавская, Кустанайская, Павлодарская обл.) и западносибирские регионы России (Омская, Курганская, Новосибирская, Тюменская обл., Ханты-Мансийcкий и ЯмалоНенецкий автономные округа). В геоморфологическом отношении район исследований расположен на Западно-Сибирской равнине и частично на Казахском мелкосопочнике. В широтном направлении район простирается от 51°22ʹ с.ш. на юге (оз. Кемель в Кустанайской обл) до 66°35ʹ с.ш. на севере (р. Таз в Ямало-Ненецком автономном округе). Была собрана гербарная коллекция S. pectinata в количестве 125 гербарных образцов из 57 водных объектов. Основной материал получен в озерных популяциях (до 85% образцов), остальные образцы собраны в Каратомарском, Верхнетобольском, Сергеевском водохранилищах, водохранилище-охладителе Экибастузской ГРЭС-2, в водохранилищах канала Иртыш – Караганда им. К.И. Сатпаева, в реках Иртыш, Ишим, Тобол, Убаган, Таз, в некоторых малых реках и иных водных объектах.
Для оценки экологических условий обитания S. pectinata пробы воды из экотопов вида анализировались в гидрохимических лабораториях. В 1982–1994 гг. сбор данных выполнялся в казахстанской части района исследования. Изучалась концентрация основных ионов (Cl-, SO 4 2-, HCO 3 -, K+, Na+, Mg2+, Ca2+), общая минерализация, общая жесткость, активная реакция воды. В начале работы исследования параметров воды выполнялись Т.В. Свириденко в Северо-Казахстанской комплексной гидробиологической лаборатории Казахского НИИ рыбного хозяйства. Минерализация воды определялась как сумма основных ионов, количественно определяемых в трехкратной повторности с точностью до 5% на основе общепринятых методик [Алекин, Семенов, Скопинцев, 1973]. В 1995–2025 гг. эти исследования были продолжены на территории России. Анализ проб воды выполнен Ю.А. Мурашко в гидрохимической лаборатории НИИ экологии Севера и Центре коллективного пользования Сургутского государственного университета на основе современного аналитического оборудования по соответствующим методикам1. В полевых условиях проведено визуальное описание донных грунтов [Бахман, Овсянникова, Вадковская, 1965; Даувальтер, 2006]. Глубина воды в экотопах определялась лотом с мерным шнуром, прозрачность воды оценивалась по белому диску Секки2.
Длина листовых пластинок и влагалищ, ширина листьев S. pectinata определялись из средних частей гербарных образцов на влажном материале. Для S. pectinata характерен акротонный тип ветвления, поэтому основное число боковых побегов располагается в верхних слоях водной среды. В результате именно эти части растений попадают в гербарные сборы. Длина сухих зрелых плодиков (вместе с носиком) определялась у гербарных образцов, собранных в разные годы. Измерения длины плодиков и листовых пластинок (без влагалищ) выполнены с помощью электронного штангенциркуля с разрешением 0.1 мм. Определение ширины листьев, длины листовых влагалищ, а также фотосъемка верхушек листьев выпол- нены с использованием оптического микроскопа Levenhuk и цифрового видеоокуляра DCM35E. Для сравнения полученных результатов измерений с диагностическими признаками S. pectinata использованы данные из работы Z. Kaplan [2008], в которой обобщены материалы ведущих мировых коллекций рода Stuckenia. Также учтены некоторые ранние публикации [Юзепчук, 1934; Доброхотова, 1956; Мяэметс, 1979; Кашина, 1988]. Написание таксонов и фамилии их авторов приведены с учетом IPNI1.
Результаты и их обсуждение
Выполненные измерения диагностических признаков образцов, идентифицированных как Stuckenia pectinata, дополняют опубликованные данные по некоторым морфометрическим параметрам (табл. 1).
Таблица 1
Количественные признаки генеративных побегов Stuckenia pectinata по данным разных авторов [Quantitative signs of generative shoots of Stuckenia pectinata according to various authors]
|
Признак |
Автор, год |
||||
|
Собственные данные |
Юзепчук, 1934 |
Доброхотова, 1966 |
Кашина, 1988 |
Kaplan, 2008 |
|
|
Длина побегов, см |
25–350 (450) |
100 и более |
50–200 |
50–150 |
- |
|
Длина листьев, см |
1.4–9.1 |
5–15 |
5–15 |
5–15 |
2.8–12.5 |
|
Ширина листьев, мм |
0.2–5.0 |
1.0–2.5 |
1.0–2.5 |
0.3–3.0 |
0.3–4.0 |
|
Длина влагалищ, мм |
3–23 |
2–5 |
- |
2–5 |
7–28 |
|
Длина язычков, мм |
0.4–7.0 |
до 10 |
до 10 |
до10 |
1–14 |
|
Длина колосков, см |
1.1–5.5 |
3–6 |
3–6 |
до 3 |
1.9–6.3 |
|
Количество мутовок в колоске |
2–7 |
5 |
4–5 |
5 |
3–8 |
|
Длина цветоносов, см |
2.2–20.3 |
5–10 |
5–20 |
3.5–20.0 |
1.8–35.0 |
|
Длина плодиков, мм |
2.1–5.8 |
3.5–4.5 |
3.5–4.5 |
2.5–3.0 (4) |
3.4–4.2 |
Примечание: в цитируемых работах [Юзепчук, 1934; Кашина, 1988] длина листовых влагалищ была ошибочно указана в сантиметрах (2–5 см). В таблице исправлено на миллиметры (2–5 мм).
В публикациях, цитируемых в табл. 1, указаны максимальные размеры генеративных побегов вида до 100–200 см, также для европейских популяций известны побеги длиной до 300 см [Patten, Boyer, 2023]. Поскольку S. pectinata является подводноцветущим растением, его побеги обычно дорастают до верхнего слоя воды, размещая соцветия у водной поверхности. При малых глубинах (0.2–3.5 м) генеративные побеги вместе с соцветиями имеют длину, равную глубине. Побеги длиной от 0.2 м до 3.5 м обычны в озерах Малый Тарангул, Большой Тарангул, Сасыккколь, Бараншулы, в водохранилище-охладителе Экиба-стузской ГРЭС-2. Максимальная отмеченная длина побегов S. pectinata на изученной территории составила 4.5 м в Верхнетобольском водохранилище при прозрачности воды по диску Секки 3.5–5.8 м.
Длина листьев варьирует в широких пределах, но общий диапазон этого показателя на рассматриваемой территории смещен в меньшую сторону в сравнении с опубликованными данными. Отмечены листья длиной всего 1.4–2.2 см (озера Большой Тарангул, Алаколь, Стеклянное, Бараншулы, Жаркуль и другие), максимальная выявленная длина составила 9.1 см (оз. Баталы). Ширина листьев S. pectinata варьирует также очень значительно. Общий диапазон по данным измерений составил от 0.2 мм до 5.0 мм (рис. 2). Близкое максимальное значение ширины листьев S. pectinata (4 мм) приводят для европейской части ареала вида [Мяэметс, 1979; Patten, Boyer, 2023]. Мелкие узколистные формы S. pectinata в различных коллекциях из равнинных территорий Евразии нередко ошибочно определены как S. filiformis (Pers.) Börner [Мяэметс, 1979]. Такие узколистные формы S. pectinata обычны на мелководьях с глубиной до 0.2–0.7 м и прозрачностью воды до дна. Эти же формы имеют и минимальные размеры плодиков.
Отметим, что вид S. filiformis отличается влагалищами листьев, сросшимися в нижней части, а также базитонным ветвлением от S. pectinata. Последний имеет несросшиеся края влагалищ и акротонное ветвление. В изученном регионе вид S. filiformis ( Potamogeton filiformis Pers.) за весь период наблюдений был отмечен только в двух горных озерах Казахского мелкосопочника [Свириденко, 2000, 2025а, б].
В ходе наблюдений установлено, что ширина листьев и форма их верхушек не являются стабильными для популяций S. pectinata. Э ти признаки сильно варьируют в одной и той же популяции в разные вегетационные периоды, что является нормой реакции вида на условия прозрачности воды (рис. 3, 4).
Многолетние наблюдения на оз. Райнфельд показали, что прозрачность воды выступает основным фактором, влияющим на ширину листьев этого вида. Водосборный бассейн озера занят пашнями, с которых в ходе ветровой и водной эрозии в акваторию поступают почвенные частицы. Разные вегетационные периоды отличаются по степени ветровой деятельности, определяющей взмучивание донных грунтов и показатель прозрачности воды. Хотя прозрачность воды очень динамичный показатель, в итоге ширина листьев S. pectinata интегрированно отражает его режим в водном объекте за вегетационный период. При прозрачности воды в оз. Райнфельд до 0.6 м (на дату полевых исследований) ширина листьев составляла 0.8–1.3 мм, при прозрачности 0.3–0.5 м ширина была равна 2.1–5.0 мм, при прозрачности 0.8–1.0 м ширина не превышала 0.5–0.6 мм. При сравнении эмпирических данных о прозрачности воды с шириной листьев S. pectinata в разных водных объектах установлена умеренная отрицательная зависимость, коэффициент корреляции составил 0.4. Отмечено также, что в разных популяциях в начале вегетации нижние листья S. pectinata, развивающиеся при меньшей освещенности, значительно шире верхних листьев.
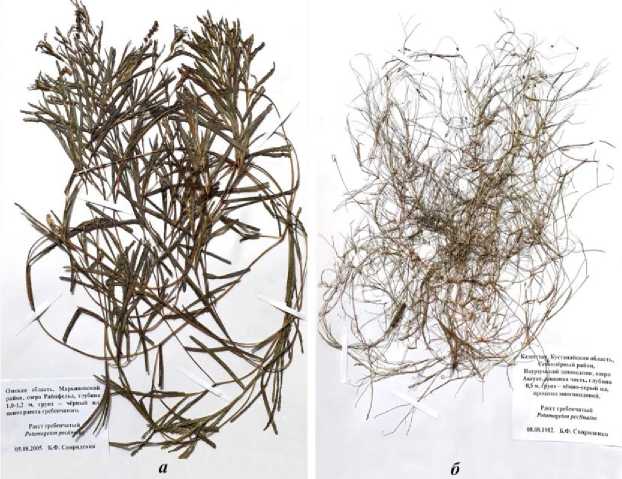
Рис. 2. Примеры изменчивости ширины листьев Stuckenia pectinata. а – до 5 мм, оз. Райнфельд, 05.08.2005; б – до 0.3 мм, оз. Большой Аксуат, 08.08.1982
[Examples of variability in the width of the leaves of Stuckenia pectinata. a – up to 5 mm, Lake Reinfeld, 05.08.2005; б – up to 0.3 mm, Lake Big Aksuat, 08.08.1982]
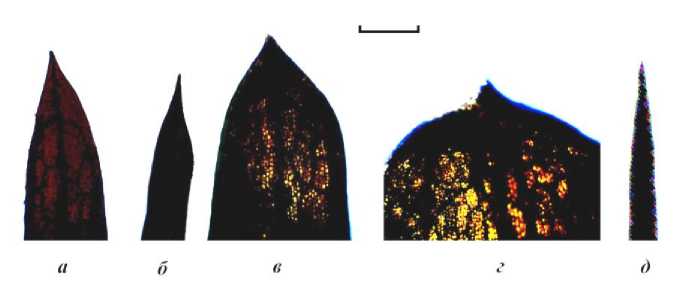
Рис. 3. Форма и ширина верхушек листьев Stuckenia pectinata в популяции из оз. Райнфельд (Марьяновский р-н, Омская обл.) в разные годы: а , б – 30.07.2002 г.; в , г – 05.08.2005 г.; д – 20.06.2011 г.
Масштабная линейка 1 мм
[The shape and width of the leaf tips of Stuckenia pectinata in a population from Lake Reinfeld (Mar-yanovsky district, Omsk region) in different years: а , б – 30.07.2002; в , г – 05.08.2005; д – 20.06.2011.
Graduated scale 1 mm]
Все рассмотренные образцы S. pectinata имели несросшиеся края листовых влагалищ. Длина влагалищ варьировала в пределах 3–23 мм, что в целом совпадает с данными, приведенными Z. Kaplan [2008], но максимальные значения выше указанных в цитируемых работах для регионов бывшего СССР. В большинстве популяций влагалища были узкоцилиндрическими (плотно охватывали стебель). В некоторых озерах листовые влагалища S. pectinata были вздутыми, т. е. расширенными в основании или по всей длине (озера Райнфельд, Бараншулы, Сарымоин, Многосопочное, Тобол-Кушлы, Жасыбай). Длина язычка составляла от 0.4 до 7 мм. Минимальная длина язычка (0.4 мм) была отмечена у образцов из оз. Стеклянного (Калачинский р-н, Омская обл.).
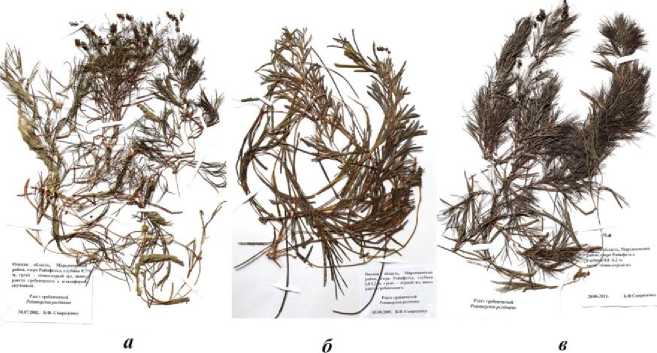
Рис. 4. Гербарные образцы Stuckenia pectinata из оз. Райнфельд в разные вегетационные периоды: а – 2002 г . , б – 2005 г., в – 2011 г.
[Herbarium specimens of Stuckenia pectinata from Lake Reinfeld in different vegetation periods: a – 2002, б – 2005, в – 2011]
Цветение S. pectinata начинается в начале июня и продолжается до конца августа. Колоски длиной 1.1–5.5 см расположены на цветоносах длиной от 2.2 до 20.3 см. Количество мутовок в колосках составляет от 2 до 7. Зрелые плодики отмечены с середины июня до конца вегетации.
По нашим материалам, длина плодиков S. pectinata в разных популяциях варьирует от 2.1 до 5.8 мм, представляя непрерывный ряд (континуум). В разных условиях и в разные годы отмечены следующие размерные диапазоны длин плодиков: 2.1–2.3 мм (оз. Жасыбай), 2.5–3.0 мм (оз. Баталы), 2.3–3.5 мм (оз. Сабындыколь), 3.2–3.5 мм (оз. Кривое), 3.0–4.1 мм (оз. Большой Тарангул), 3.8–4.0 мм (оз. Райнфельд), 3.0–4.8 мм (оз. Горькое), 4.2–4.5 мм (оз. Сорбалык), 4.2–4.7 мм (оз. Стеклянное), 4.0–5.1 мм (оз. Сосновое), 4.5–5.1 мм (оз. Большой Тарангул), 4.9–5.3 мм (оз. Большой Тарангул), 4.1–5.0 мм (оз. Сарымоин), 4.1–5.6 мм (оз. Жаркуль), 4.5–5.1 мм (оз. Бараншулы), 4.7–5.0 мм (оз. Аксуат-Мокрое), 4.9–5.1 мм (оз. Половинное), 5.0–5.1 мм (Верхнетобольское водохранилище), 5.0–5.2 мм (водохранилище на р. Тлеусай), 4.5–5.8 мм (оз. Большой Аксуат).
Узколистные мелкоплодные формы с длиной плодиков 2.1–3.5 мм распространены на мелководьях до 0.1–0.7 м с прозрачностью воды до дна. Крупноплодная форма с плодиками 4.5–5.0 мм длиной, листьями до 1.5–3.0 см длиной и язычком до 2–3 мм длиной была описана К.В. Доброхотовой [1951] как новый вид S. macrocarpa (Dobrochot.) Tzvelev ( Potamogeton macrocarpus Dobrochot.). В протологе таксона Po-tamogeton macrocarpus Dobrochot. [там же] указан размер плодиков (4.5–5 мм) как главный диагностический признак, что впоследствии было принято многими авторами. Отметим, что все размерные диапазоны признаков S. macrocarpa, приведенные в обобщающей работе [Kaplan, 2008], за исключением размеров плодиков, полностью входят в диапазоны, указанные для S. pectinata. В данной работе также показано перекрывание диапазонов длин плодиков у S. pectinata (3.4–4.2 мм) и S. macrocarpa (4.1–5.8 мм) [там же]. Для европейской части СССР приведен диапазон длины плодиков P. pectinatus ( S. pectinata ) от (3.5) 4 мм до 5 мм [Мяэметс, 1979], что не согласуется с распространенным представлением о таксономической значимости более крупных плодиков для выделения отдельного вида S. macrocarpa . В этой связи обратим внимание на замечание К. Линнея [1989: с. 181], который еще в 1751 г. сделал вывод: «Величина не различает виды. Величина меняется в зависимости от места произрастания. Величина, поскольку она варьирует, не изменяя при этом вид, не может служить существенным отличием для видового названия. Ошибочны видовые названия, основанные на величине растения, корня, побега, плодоношения».
Собственный фактический материал, собранный в ходе экспедиционных исследований в северных районах Казахстана и знакомство с изотипами таксона Potamogeton macrocarpus Dobrochot. в Гербарии Института ботаники Казахстана (АА) позволили считать данный таксон синонимом P. pectinatus L. [Сви-риденко, 2000] . Позже на основе молекулярно-генетического анализа таксон S. macrocarpa был также отнесен к широко распространенному виду S. pectinata из-за слабой генетической дифференциации этих таксонов [Volkova et al., 2017]. Следующая попытка обнаружить отличие S. macrocarpa от S. pectinata на молекулярно-генетическим уровне тоже не была успешной: отдельные образцы S. pectinata показали между собой более значимые различия, чем образцы, идентифицированные по размерам плодиков как S. macrocarpa и S. pectinata [Mglinets, Kosterin, 2023].
Распространение крупноплодной формы S. pectinata связано с особыми гидрологическими, гидрохимическими, климатическими условиями, определяющими экологический оптимум вида. Крупноплодную форму S. pectinata обнаруживают в больших солоноватых периодически пересыхающих (во внутривеко-вом масштабе) озерах в районах Западно-центрального и Северного Казахстана и прилегающих районов Западной Сибири. На рассматриваемой территории такая форма встречена в озерах Большой Тарангул, Половинное, Сосновое, Бараншулы, Жаркуль, Сарымоин, Большой Аксуат, в Верхнетобольском водохранилище и в водохранилище на р. Тлеусай. В целом ареал крупноплодной формы расположен в окружении евразиатской части ареала S. pectinata. В оптимальной по условиям части ареала крупноплодная форма встречается чаще, за ее пределами распространены более мелкоплодные формы, на границе ареала (р. Таз, 08.08.2009 г.) отмечена стерильная популяция . Особый габитус, указанный для таксона S. mac-rocarpa (листья 1.5–3.0 см длиной, язычок 2–3 мм длиной, обильное акротонное ветвление), широко встречается и у мелкоплодных форм S. pectinata (см. рис. 4 в ).
Вид S. pectinata связан преимущественно с тонкодетритными серыми, темно-серыми и, реже, черными илистыми грунтами и озерными глинами, в которых сохраняются зимующие клубеньки с почками возобновления. На песчаных грунтах прибрежных мелководий отмечены преимущественно узколистные мелкоплодные формы вида. В горных озерах Казахского мелкосопочника встречаются популяции вида на гравийных и галечниковых грунтах.
Вид отмечен в водах гидрокарбонатно-кальциевого, гидрокарбонатно-натриевого, хлоридно-натриевого и сульфатно-натриевого состава. Общая минерализация воды в экотопах S. pectinata находилась в пределах от 0.03 до 19.35 г/дм3, общая жесткость – от 2.25 до 107.07 мг-экв/дм3, т. е. вид распространен от ультрапресных мягких вод до сильносолоноватых очень жестких вод. Он входит в немногочисленную экологическую группу сильносолоновато-пресноводных видов, к которой относятся, например, Bolboschoenus maritimus (L.) Palla, Phragmites australis (Cav.) Steud. Диапазон активной реакции воды в экотопах S. pectinata расположен в пределах значений рН = 6.5–9.8 [Свириденко, 2000, 2025 в; Сви-риденко и др., 2016]. Наиболее продуктивные популяции вида, занимающие акватории до десятков квадратных километров, отмечены в хлоридно-натриевых водах с общей минерализацией 0.67–4.96 г/дм3, общей жесткостью 4.91–28.53 мг-экв/дм3, при рН = 7.6–8.8 (9.2).
Виды рода Stuckenia отличаются от многих видов семейства Potamogetonaceae столонно-клубневой биоморфой . У S. pectinata подземная побеговая система также представлена однолетними столонами (не корневищами), формирующими к осени мелкие зимующие клубеньки с апикальными почками возобновления. Согласно классификации биоморф цветковых гидрофитов, это многолетний поликарпический столонно-клубневый длиннопобеговый высокий подводноцветущий гидатофит (рис. 5) [Свириденко, 1991, 2000, 2025а].
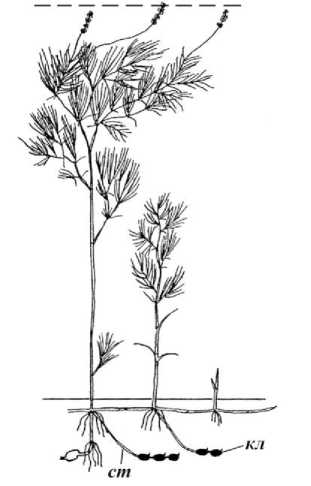
Рис. 5. Схема биоморфы Stuckenia pectinata. Горизонтальной сплошной линией показан уровень грунта, шриховой линией – уровень воды. кл – зимующий клубенек, ст – столон
[A scheme of the biomorph of Stuckenia pectinata . The horizontal solid line shows the ground level, and the dashed line shows the water level. кл – overwintering tuber, ст – stolon]
Отмечена важная биологическая особенность S. pectinata, которая проявляется в конце вегетационных периодов (в сентябре-октябре). В это время в основании подводных побегов на границе раздела грунтовой и водной сред формируется особый отделительный слой длиной до 2–3 (5) см. В результате фитомасса вида вместе с плодиками выносится осенними ветровыми течениями на берега степных озер, образуя валы высотой до 0.5–1.0 м и протяженностью от десятков и сотен метров до нескольких километров в зависимости от величины водоема и плотности популяции. В итоге деструкция органического вещества этого вида и стратификация семян в основном происходят не в водной среде, а на суше и, отча- сти, на прибрежном мелководье. Кроме того, отделение массивных подводных побегов, обладающих высокой парусностью, позволяет сохраниться клубенькам с почками возобновления в илистых грунтах.
Для степных озер юга Западно-Сибирской равнины была отмечена двулетняя цикличность вегетации S. pectinata , при которой год массового развития сменяется почти полным отсутствием ассимилирующих подводных побегов этого вида [Доброхотова, 1956; Березина, 1966; Катанская, 1970]. В период исследований данная цикличность наблюдалась в озерах Большой Тарангул, Малый Тарангул, Половинное, Питное, Большой Аксуат, Верхнее, Нижнее, Щучье. В один вегетационный период особи популяции S. pectinata образуют многочисленные ассимилирующие подводные побеги, массово цветут и плодоносят. На другой год данная популяция находится в состоянии покоя в виде зимующих клубеньков, залегающих в грунте.
В 1982–1985 гг. наблюдения за этим явлением были выполнены в оз. Большой Тарангул (Московский р-н, Северо-Казахстанская обл.), акватория которого составляла 40 км2. Эдификаторами фитоценозов в озере, наряду с Stuckenia pectinata , были Phragmites australis (Cav.) Steud. и харовые водоросли Nitella hyalina (DC.) Agardh и Chara globularis Thuill. В 1982 и 1984 г. популяция S. pectinata находилась в состоянии покоя. В открытой части акватории на площади в 30 км2 отсутствовали даже единичные ассимилирующие побеги вида. В 1983 и 1985 г. особи популяции массово вегетировали, цвели и плодоносили. Проективное покрытие вида на разных участках акватории достигало 80–100%. Выполненные ресурсо-ведческие работы на этом озере показали, что популяция S. pectinata в годы активной вегетации продуцировала до 85–90% общей фитомассы гидромакрофитов (табл. 2).
Таблица 2
Абсолютно-сухая фитомасса эдификаторов фитоценозов в оз. Большой Тарангул в 1982–1985 гг. (тысяч тонн)
[Absolutely dry phytomass of the phytocenosis edificator plants in Lake Great Tarangul in 1982–1985 (thousands of tons)]
|
Вид |
Год |
|||
|
1982 |
1983 |
1984 |
1985 |
|
|
Stuckenia pectinata |
- |
10.68 |
- |
7.95 |
|
Phragmites australis |
2.50 |
1.07 |
1.18 |
1.02 |
|
Nitella hyalina |
- |
0.23 |
- |
- |
|
Chara globularis |
- |
- |
- |
0.34 |
|
Всего |
2.50 |
11.98 |
1.18 |
9.31 |
По нашим данным, двулетняя цикличность проявляется тем отчетливее, чем большее продукционное значение имеет вид в конкретном водном объекте. В настоящее время существует необходимость более детального изучения причин цикличности продуцирования S. pectinata в целях управления этим процессом. По замечанию В.М. Катанской [1970], озера с доминированием S. pectinata (гребенчатордестовые озера) являются наиболее широко распространенным типом озер в северных районах Казахстана и сопредельных районах России. Многие из них имеют важное рыбохозяйственное значение. Планирование и проведение рыбоводных мероприятий в таких озерах возможно только с учетом ритма вегетации S. pectinata. На основе прогноза вегетации этого вида целесообразно проводить зарыбление личинками ценных видов сиговых рыб для однолетнего выращивания только в те годы, когда акватория остается не заросшей, что обеспечит высокий коэффициент облова этих озер в осенний сезон.
Заключение
Представитель семейства рдестовых Stuckenia pectinata ( Potamogeton pectinatus – рдест гребенчатый) отличается значительной морфологический изменчивостью. В литературе неоднозначно трактуются разные формы этого вида, в результате чего описаны разные таксоны внутривидового и даже видового уровня. Морфологическое разнообразие вида связывают как с его широкой экологической амплитудой в пределах обширного ареала, так и с генетической неоднородностью разных форм. Наиболее широкие диапазоны изменчивости вида отмечены нами для таких показателей, как длина генеративных побегов (25–450 см), ширина листьев (0.2–5.0 мм), длина плодиков (2.1–5.8 мм). Материалы, полученные при обработке образцов с территории Западно-Сибирской равнины и Казахского мелкосопочника, существенно дополняют диагноз вида, приведенный в литературе.
Установлено, что S. pectinata обитает в диапазоне от ультрапресных мягких до сильносолоноватых очень жестких вод с нейтральной и щелочной активными реакциями и различным составом растворенных солей. Наиболее продуктивные популяции вида, занимающие акватории до десятков квадратных километров, отмечены в хлоридно-натриевых водах с общей минерализацией 0.67–4.96 г/дм3, общей жесткостью 4.91–28.53 мг-экв/дм3 и рН = 7.6–8.8 (9.2).
Биоморфа S. pectinata относится к столонно-клубневому типу. Подземная побеговая система у S. pectinata представлена однолетними столонами, формирующими к осени мелкие зимующие клубеньки с апикальными почками возобновления. В ходе полевых наблюдений была установлена важная биологическая особенность вида – формирование в основании подводных побегов отделительного слоя длиной до 2–3 (5) см. В результате фитомасса вида вместе с плодиками выносится осенними ветровыми течениями из акватории на берег, где происходит деструкция органического вещества и стратификация семян. Такой механизм отделения массивных подводных побегов, обладающих высокой парусностью, обеспечивает сохранность клубеньков в илистых грунтах.
Важная ценозообразующая роль и широкое распространение S. pectinata в водных объектах района исследований, особенно в пустынных, степных и лесостепных частях ареала, определяет большое экологическое и хозяйственное значение этого вида. В связи с этим дальнейшее исследование биологии вида является актуальной задачей. Причины известной двулетней цикличности вегетации вида, наиболее отчетливо проявляющиеся в особом типе гребенчатордестовых озер, в настоящее время остаются еще невыясненными. В то же время именно данный тип озер обеспечивает кормовую базу для выращивания ценных видов сиговых рыб, поэтому планирование и проведение рыбоводных мероприятий в таких озерах возможно только с учетом ритма вегетации S. pectinata.
