
Разработка и валидация тест-системы анализа полиморфизма микросателлитов для контроля происхождения и оценки генетического разнообразия медоносных пчел (Apis mellifera l.)
Журнал: Сельскохозяйственная биология @agrobiology
Рубрика: Генетика, геномика
Статья в выпуске: 4 т.61, 2026 года.
Бесплатный доступ
Современное пчеловодство сталкивается с серьезными системными вызовами, среди которых особую угрозу представляют неконтролируемые кочевки пасек и бессистемная интродукция коммерческих пород в ареалы аборигенных подвидов медоносных пчел (Apis mellifera L.). Случайная интрогрессивная гибридизация может приводить к постепенному размыванию генетической структуры локальных популяций, потенциальному снижению выраженности ценных адаптивных признаков и изменению баланса исторически сложившихся сочетаний генов. Традиционные морфометрические методы оценки чистопородности не обеспечивают достаточной точности для выявления ранних стадий гибридизации, что обусловливает острую необходимость применения высокоточных молекулярно-генетических панелей на основе микросателлитных (STR) локусов. Однако большинство используемых в мире панелей микросателлитов требуют оптимизации под специфику локального генофонда для исключения мономорфных или неспецифических локусов. Цель работы заключалась в разработке, оптимизации и валидации мультиплексной тест-системы на основе панели из 15 информативных микросателлитных маркеров для идентификации, контроля происхождения и комплексной оценки параметров генетического разнообразия пород медоносных пчел. Исследование проведено на рабочих пчелах (n =185) Apis mellifera трех пород: серая горная кавказская, карника и карпатская. Анализ полиморфизма 15 локусов осуществляли с помощью мультиплексной ПЦР с последующей детекцией фрагментов методом капиллярного электрофореза на генетическом анализаторе Нанофор-05 (ООО «НПФ Синтол», Россия). Статистическую обработку выполняли в программах GenAlEx v. 6.5.1 (https://biology.anu.edu.au/research/software/gen-alex) и Cervus 3.0.7 (http://www.fieldgenetics.com/pages/aboutCervus_Overview.jsp). Разработанная тест-система продемонстрировала высокую аналитическую чувствительность и 100 % воспроизводимость результатов. Усредненное по всем локусам число фактически наблюдаемых аллелей составило NA = 5,8±0,562, число эффективных локусов NE = 2,647±0,298. Тест-система эффективно идентифицирует низкочастотную фракцию аллелей (доля редких вариантов составила 37,9 %), что критически важно для детекции следов межпородной интрогрессии. Более половины локусов (8 из 15) проявили высокий уровень информативности (PIC > 0,5). Валидация потребительских свойств показала, что вероятность случайного совпадения генотипов ничтожно мала (PI = 1,94×10⁻¹⁰). Точность подтверждения происхождения по обоим родителям достигает 99,88 %, точность исключения ошибочно записанных родителей — 99,99 %. Созданная тест-система является эффективным биотехнологическим инструментом и рекомендуется для широкомасштабного генетического скрининга, индивидуальной паспортизации пчелиных семей, жесткого контроля достоверности происхождения племенного материала, а также для разработки долгосрочных программ по сохранению и защите генофондов аборигенных пчел.
Короткий адрес: https://sciup.org/142248603
IDS: 142248603 | УДК: 638.12:575.113:57.08 | DOI: 10.15389/agrobiology.2026.4.632rus
Development and validation of a microsatellite polymorphism analysis test system for parentage control and genetic diversity assessment in honey bees (Apis mellifera l.)
Modern beekeeping faces serious systemic challenges, particularly the uncontrolled migration of apiaries and the unsystematic introduction of commercial breeds into the habitats of native subspecies of the honey bee (Apis mellifera L.) pose a particular threat. Accidental introgressive hybridization can lead to gradual erosion of the genetic structure of local populations, potential reduction in the expression of valuable adaptive traits and disruption of the balance of historically established gene combinations. Traditional morphometric methods for assessing purebred status do not provide sufficient accuracy for detecting early stages of hybridization, which necessitates the urgent implementation of high‑precision molecular‑genetic panels based on microsatellite (STR) loci. However, most microsatellite panels currently used worldwide require optimization for the specific characteristics of local gene pools to exclude monomorphic or non‑specific loci. The test system developed in this study accurately identifies purebred colonies and their hybrids, thereby providing a robust foundation for genetic monitoring, selective breeding and conservation of the native Apis mellifera gene pool. The aim of this work was to develop, optimize, and validate a multiplex test system based on a panel of 15 informative microsatellite markers for identification, parentage control, and comprehensive assessment of genetic diversity parameters in honey bee breeds. The study was conducted on worker bees (n = 185) of Apis mellifera representing three breeds: Grey Mountain Caucasian bee (A. m. caucasica), Carniolan bee (A. m. carnica), and Carpathian bee (A. m. carpatica). Polymorphism analysis of the 15 loci was performed using multiplex PCR followed by fragment detection by capillary electrophoresis on a Nanofor‑05 genetic analyzer (Syntol, Russia). Statistical processing was carried out using GenAlEx v. 6.5.1 (https://biology.anu.edu.au/research/software/genalex) and Cervus 3.0.7 (http://www.fieldgenetics.com/pages/aboutCervus). Overview.jsp) software. The developed test system demonstrated high analytical sensitivity and 100 % reproducibility of results. The average number of observed alleles per locus was NA = 5.8±0.562, and the effective number of alleles was NE = 2.647±0.298. The system effectively identifies low‑frequency allele fractions (the proportion of rare variants was 37.9 %), which is critical for detecting traces of inter‑breed introgression. More than half of the loci (8 out of 15) showed high level of informativeness (PIC > 0.5). Validation of the system's performance characteristics revealed a negligibly low probability of identical genotype match (PI = 1.94×10⁻¹⁰). The accuracy of parentage assignment for both parents reached 99.88 %, while the exclusion power for incorrectly recorded parents was 99.99 %. The developed test system represents an effective biotechnological tool and is recommended for large‑scale genetic screening, individual certification of honey bee colonies, stringent verification of pedigree authenticity in breeding stock, and the development of long‑term programs for the conservation and protection of native honey bee gene pools.
Текст научной статьи Разработка и валидация тест-системы анализа полиморфизма микросателлитов для контроля происхождения и оценки генетического разнообразия медоносных пчел (Apis mellifera l.)
∗ При проведении исследований было использовано оборудование ЦКП «Биоресурсы и биоинженерия сельскохозяйственных животных» ВИЖ им. академика Л.К. Эрнста. Работа выполнена при поддержке Российского научного фонда, проект ¹25-16-00176.
Вместе с тем на современном этапе развития отрасль сталкивается с серьезными системными вызовами (6). Интенсификация сельского хозяйства, неконтролируемое применение пестицидов (7, 8), появление и распространение патогенов и паразитов, включая клеща Varroa destructor и ассоциированные с ним вирусные инфекции (9-11), а также глобальные климатические изменения ведут к массовой гибели пчелиных семей во всем мире (12). Особую угрозу для генофонда медоносных пчел представляет антропогенный фактор — массовые неконтролируемые кочевки и бессистемная интродукция коммерческих пород в ареалы аборигенных подвидов (13, 14). В результате этой стихийной интрогрессивной гибридизации происходит размывание автохтонных генотипов и разрушение коадаптированных генных комплексов, формировавшихся на протяжении тысячелетий в ходе естественного отбора (15, 16). Это приводит к глубокой гибридизации, разрушению исторически сложившихся адаптивных генных комплексов, потере ценных селекционных качеств (таких как зимостойкость, устойчивость к заболеваниям, плодовитость маток и умеренная злобливость) и, как следствие, к сокращению численности и исчезновению уникальных локальных популяций (17). Известно, что из существующих в мире десятков подвидов и экотипов Apis mellifera значительная часть находится под угрозой генетической эрозии (13, 18, 19).
Традиционные методы оценки чистопородности и селекционноплеменной работы в пчеловодстве, основанные на классическом морфометрическом анализе (кубитальный индекс, дискоидальное смещение, ширина третьего тергита) и экстерьерных признаках рабочих пчел, на современном этапе не обеспечивают достаточной точности (20, 21). Фенотипические показатели обладают высокой пластичностью и подвержены значительному влиянию факторов внешней среды, что затрудняет выявление ранних стадий гибридизации и объективную дифференциацию близкородственных популяций (22). Регуляторный потенциал существующих административных и традиционных морфометрических мер нивелируется спецификой репродуктивной биологии Apis mellifera — выраженной полиандрией и трансграничным радиусом спаривания маток в воздухе, а также масштабным неконтролируемым коммерческим оборотом пчелопакетов. В этой связи критически актуальным становится внедрение современных молекулярно-генетических подходов в практику пчеловодства (23-25).
Одним из наиболее надежных, воспроизводимых и экономически эффективных инструментов популяционной генетики, паспортизации генофондов и контроля происхождения служит анализ полиморфизма микроса-теллитных локусов (short tandem repeats, STR) (26-28). Высокий уровень информационного полиморфизма, кодоминантный характер наследования и широкое распределение по геному делают STR маркеры незаменимыми для мультиплексного анализа, позволяющего в рамках одной полимеразной цепной реакции (ПЦР) исследовать панели из множества локусов (29, 30). Метод мультиплексного генотипирования активно рекомендуется международными организациями (такими как FAO и COLOSS) для мониторинга генетической структуры популяций и детекции межпородной гибридизации. Большинство используемых в мире панелей микросателлитов требуют оптимизации под специфику локального генофонда для исключения мономорфных или неспецифических локусов (31, 32).
Ранее разработанная нами тест-система, включающая 7 микросател-литных локусов (33), успешно применялась для первичного скрининга и дифференциации пород и популяций медоносных пчел. Накопленный в ходе ее применения опыт показал, что в условиях глубокой межпородной интрогрессии генов и сложной полигибридной структуры современных пасек разрешающая способность ограниченной панели маркеров становится недостаточной и возникает необходимость формирования новой, более информативной системы.
В настоящем сообщении представлены результаты расширения мультиплексной тест-системы до 15 локусов, что позволило кардинально повысить ее разрешающую способность при дифференциации генотипов.
Наша цель заключалась в разработке, оптимизации и валидации мультиплексной тест-системы на основе панели информативных микроса-теллитных маркеров для идентификации, контроля происхождения по материнским и отцовским линиям, а также комплексной оценки параметров генетического разнообразия локальных популяций и пород медоносных пчел.
Ìåòîäèêà. Материалом служили особи медоносных рабочих пчел ( n = 185) ( Apis mellifera L.), сохраняемые в биоресурсной коллекции «Банк генетического материала домашних и диких видов животных и птицы» ФГБНУ ФИЦ ВИЖ им. академика Л.К. Эрнста. Образцы рабочих пчел были представлены тремя породами: серая горная кавказская ( A. mellifera caucasica, n = 136), карника ( A. mellifera carnica, n = 15) и карпатская ( A. mellifera carpatica, n = 34). С целью нивелирования влияния выраженной полиандрии (множественного отцовства) и обеспечения полноты охвата отцовских линий при формировании выборки серой горной кавказской породы ( n = 136) отбор материала проводился индивидуально из каждой пчелиной семьи, в среднем по 30 особей (25-35 рабочих пчел на семью). Анализ 25-35 диплоидных особей от одной семьи методологически достаточен для реконструкции спектра отцовских гаплотипов и предотвращает систематическое смещение популяционных частот аллелей при расчете дискриминационных параметров в программе GenAIEx v. 6.5.1 (34). Выборки пород карника и карпатская использовались в качестве внешней валидационной группы для верификации универсальности отжига праймеров и оценки спектра аллелей на альтернативном генетическом фоне.
Выделение геномной ДНК из мышечной ткани грудного отдела рабочих пчел осуществлялось для каждой особи с помощью коммерческих наборов ДНК-Экстран-2 (ООО «НПФ Синтол», Россия) согласно протоколу фирмы-изготовителя. Качественную оценку ДНК во всех образцах проводили методом электрофореза в 1 % агарозном геле (I ≈ 100 mA, U ≈ 120 V), ее концентрацию измеряли с помощью флуориметра Qubit 4 («Thermo Fisher Scientific», США). Для работы отбирались пробы с концентрацией не менее 10 нг/мкл. Чистоту ДНК определяли по соотношению поглощения A 260 /A 280 на спектрофотометре NanoDrop2000 («Thermo Fisher Scientific», США).
Для исключения ложноположительных результатов и детекции возможной перекрестной контаминации в каждый ПЦР-планшет включали отрицательный контроль (NTC, no template control), где вместо матрицы ДНК вносили деионизированную воду высокой степени очистки (ЗАО «Евроген», Россия). По результатам капиллярного электрофореза на генетическом анализаторе Нанофор-05 во всех отрицательных контролях флуоресцентный сигнал не превышал порогового уровня фонового шума.
При подборе локусов и спектров специфичных микросателлитных маркеров для обеспечения наиболее полного охвата актуальных и авторитетных данных использовали несколько подходов и инструментов: библиотечные ресурсы и базы данных PubMed ; 634
Web of Science ; Scopus ; электронные библиотеки WILEY ONLINE LIBRARY , ResearchGate и CyberLeninka ; онлайн-каталог Google Scholar ; поисковые системы Google и Yandex (https://. Поиск источников на английском языке был выполнен по следующим ключевым словам: microsatellite, STR, SSR, honey bee, Apis mellifera, genetic diversity. В итоге отобрали 15 релевантных источников. При определении спектра локусов учитывали их полиморфный характер, а также возможность проведения мультиплексной реакции (близкие температуры плавления праймеров). В качестве флуоресцентной метки для первичной отработки панели и установления диапазонов потенциальных локусов выбрали краситель FAM.
Первоначально на основе данных публикаций отобрано 28 локусов, включая высокодифференцирующие маркеры (A079, A113, B124), рекомендованные для идентификации, а также локусы с высоким полиморфизмом (Ap043, Ap068, Ap249), перспективные для контроля происхождения. Дизайн итоговой 15-локусной мультиплексной панели осуществлялся с учетом фундаментальных работ по идентификации микросателлитов (26, 35, 36) и в строгом соответствии с международными стандартизированными протоколами консорциума COLOSS (Bee Research Network) по молекулярно-генетическим исследованиям Apis mellifera L. (37). На этапе оптимизации 13 локусов из первичного пула отбраковали, основываясь на имеющихся в проанализированной литературе данных о нестабильной амплификации, неподходящей температуре отжига праймеров, склонности к образованию неспецифических димеров в исследуемых выборках. На этом основании сформировали мультилокусную панель: определили оптимальные размерные диапазоны аллелей, число аллелей на локус и распределение флуоресцентных меток (FAM, R6G, TAMRA, ROX) с учетом отсутствия спектрального и размерного перекрытия фрагментов в каналах детекции.
Результаты амплификации оценивали на 8-капиллярном генетическом анализаторе Нанофор-05 (ООО «НПФ Синтол», Россия). Выбранные праймеры имели метки флуоресцентных красителей, детектируемых в каналах Blue (FAM), Green (R6G), Yellow (TAMRA), Red (ROX). Стандарт размеров по 24 фрагментам ДНК разной длины (60, 70, 80, 90, 100, 120, 140, 160, 180, 200, 220, 230, 240, 260, 280, 300, 320, 340, 360, 380, 400, 420, 440 и 450 п.н.) детектировали в отдельном канале Orange (LIZ), он служил основным внутренним стандартом для построения кривой подвижности ампли-фицированных фрагментов исследуемого образца. Определение длин аллелей по исходным данным выполняли с использованием программного обеспечения GeneMarker V3.0.1.
Матрицу полученных микросателлитных генотипов формировали в программе Microsoft Excel. Статистическую обработку данных и визуализацию результатов проводили с использованием пакета MS Excel 2007 с плагином GenAIEx v. 6.5.1 (34). Величину информативной ценности использованных микросателлитных локусов (PIC) определяли с использованием программы Cervus 3.0.7 (38).
Для оценки функциональных характеристик разработанной тест-системы определяли: информативность (среднее Nа и эффективное Ne число аллелей на локус), наблюдаемую (Ho) и ожидаемую (He) гетерозиготность, коэффициент инбридинга (Fis) для суммарного массива (n = 185) по каждому из 15 микросателлитных локусов. Для всех трех исследуемых пород аналогичные параметры определяли в виде средних значений по всему комплексу локусов с их стандартными ошибками (M±SEM).
Независимое наследование локусов в 15-локусной STR-панели подтверждали анализом неравновесия по сцеплению (Linkage Disequilibrium, LD). Тестирование выполняли на репрезентативной выборке серой горной кавказской породы ( n = 136) с помощью точного теста Фишера (Exact LD test) в программном пакете GENEPOP 4.7 (39). Порог статистической значимости корректировали с помощью поправки Бонфер-рони на множественные сравнения (p criticai = 0,05/105 = 0,00048).
Для оценки потребительских свойств разработанной тест-системы использовали следующие критерии: возможность применения для генетической паспортизации медоносной пчелы (расчет вероятности совпадения генотипов индивидуумов (PI) (40); возможность определения происхождения по трем частным случаям: точность подтверждения происхождения по обоим родителям (P1X); точность подтверждения происхождения по одному родителю, когда недоступен генотип другого (P2X); точность исключения обоих ошибочно записанных родителей (P3X) (41, 42).
Результаты . На основе анализа доступных данных литературы осуществлен подбор 15 микросателлитных (STR) локусов, рекомендованных международными протоколами для популяционного мониторинга. Характеристика вошедших в панель микросателлитных маркеров представлена в таблице 1. Интеграция международно валидированных локусов в формат единой мультиплексной системы обеспечивает полную преемственность и 100 % сопоставимость полученных популяционно-генетических профилей с мировыми массивами данных (37).
1. Спектр локусов, включенных в разработанную тест-систему для мультиплексного анализа микросателлитов медоносной пчелы ( Apis mellifera L . )
|
Локус |
Диапазон длин, п.н. |
Последовательность праймеров, 5' → 3' |
|
HB-C16-05 |
66-100 |
F: FAM-ATTTTATGCGCGGTTTCGTA R: CATGGCTCCTCCATTAAATC |
|
Ap273 |
106-110 |
F: FAM-GATCTTGTGTTAAACAGCCG R: GATCTCTGGCAGACGAAGAG |
|
Ap218 |
118-124 |
F: FAM-AGGGATGGAATTCTTCGATT R: TTGTCACAATTCCGCTTGA |
|
Ap019 |
137-145 |
F: FAM- F: CTCGTTTCTTCCATTGCG R: CGGTACGCGGTAGAAAGA |
|
Ap068 |
151-167 |
F: FAM-TGTCTGYCCTCCTCTCTGTT R: CACATCGAGCGAGAAGGC |
|
Ap223 |
175-191 |
F: FAM-TCGTACAACGTCGCGCAA R: GCCGCTCGCCTGTATCTG |
|
Ap 249 |
208-220 |
F: FAM-CGCGCGACGACGAAATGT R: CAGTCCTTTGATTCGCGCTACC |
|
Ap226 |
235-245 |
F: FAM-AACGGTGTTCGCGAAACG R: AGCCAACTCGTGCGGTCA |
|
A079 |
89-107 |
F: R6G-CGAAGGTTGCGGAGTCCTC R: GTCGTCGGACCGATGCG |
|
Ap288 |
125-133 |
F: R6G-GTTAGTTCGTCGTCGACCG R: TCTTAGCTTTATAACGAGCACG |
|
A113 |
212-230 |
F: R6G-CTCGAATCGTGGCGTCC R: CCTGTATTTTGCAACCTCGC |
|
A014 |
217-225 |
F: ROX-GTGTCGCAATCGACGTAACC R: GTCGATTACCGATCGTGACG |
|
Ap043 |
130-180 |
F: TAMRA-GGCGTGCACAGCTTATTCC R: R: CGAAGGTGGTTTCAGGCC |
|
B124 |
216-230 |
F: TAMRA-GCAACAGGTCGGGTTAGAG R: CAGGATAGGGTAGGTAAGCAG |
|
A007 |
106-150 |
F: ROX-CCCTTCCTCTTTCATCTTCC R: GTTAGTGCCCTCCTCTTGC |
Примечание. Флуоресцентная метка пришита к 5'-концу прямого (F) праймера.
Анализ полученных нами данных подтвердил, что выбранные мик-росателлитные маркеры обладают стабильной амплификацией и информа-636
тивными аллельными диапазонами, что позволяет использовать их для создания мультиплексной STR-панели медоносной пчелы. Применение мультиплексной ПЦР существенно оптимизирует процесс анализа, сокращая время и ресурсы на его проведение. Данный метод широко востребован для мониторинга генетической структуры популяций, анализа полиморфизма и идентификации подвидов пчел.
В разработанной тест-системе общий объем реакционный смеси (15 мкл) включал 2,0 мкл реакционного буфера (10½ Taq Turbo буфер) (ЗАО «Евроген» Россия), 2,0 мкл 2 мМ раствора dNTPs, 0,5 мкл 100 мМ MgCl 2 , 0,1 мкл ДНК-полимеразы HS Taq (ЗАО «Евроген» Россия) и 1 мкл ДНК-матрицы. Рабочая концентрация праймеров 10 pmol/ a l. Количество праймеров в реакционной смеси для мультиплексной ПЦР подбирали в зависимости от уровня флюоресценции ампликонов (высоты пиков на графике фрагментного анализа). Начиная с 0,5 мкл, увеличивали или уменьшали концентрацию каждого праймера с шагом 0,01, пока не достигли оптимального свечения во всех локусах.
Режим ПЦР-амплификации: первичная денатурация 7 мин при 95 ° С; далее 35 циклов, включающих денатурацию (95 ° С, 30 с), отжиг праймеров (63 ° С, 35 с), элонгацию цепей ДНК (72 ° С, 40 с); финальная элонгация — 20 мин при 72 ° С.
На первом этапе была проведена оценка информативности 15 STR-локусов для всей объединенной выборки медоносных пчел ( n = 185, табл. 2). Данный подход позволил оценить общий полиморфный потенциал тест-системы на всем спектре исследованного материала.
2. Оценка информативности микросателлитных локусов для всей исследуемой выборки медоносных пчел ( Apis mellifera L . ) ( n = 185)
|
Локус |
N А |
N e |
H O |
H E |
F is |
PIC |
|
HB-C16-05 |
4 |
2,109 |
0,454 |
0,526 |
0,136 |
0,472 |
|
Ap273 |
4 |
1,217 |
0,162 |
0,178 |
0,091 |
0,167 |
|
Ap218 |
4 |
1,098 |
0,092 |
0,089 |
-0,032 |
0,088 |
|
Ap019 |
4 |
1,929 |
0,492 |
0,482 |
-0,021 |
0,440 |
|
Ap068 |
5 |
2,781 |
0,681 |
0,640 |
-0,064 |
0,574 |
|
Ap223 |
5 |
2,456 |
0,508 |
0,593 |
0,143 |
0,519 |
|
Ap249 |
7 |
2,692 |
0,486 |
0,628 |
0,226 |
0,574 |
|
Ap226 |
5 |
2,263 |
0,368 |
0,558 |
0,341 |
0,502 |
|
A079 |
8 |
3,298 |
0,492 |
0,697 |
0,294 |
0,661 |
|
Ap288 |
3 |
1,981 |
0,286 |
0,495 |
0,422 |
0,415 |
|
A113 |
10 |
4,402 |
0,416 |
0,773 |
0,461 |
0,742 |
|
A014 |
4 |
2,023 |
0,222 |
0,506 |
0,562 |
0,423 |
|
Ap043 |
7 |
4,298 |
0,276 |
0,767 |
0,641 |
0,731 |
|
B124 |
9 |
5,070 |
0,459 |
0,803 |
0,428 |
0,784 |
|
A007 |
8 |
2,088 |
0,335 |
0,521 |
0,357 |
0,479 |
Примечание. N а — среднее число аллелей на локус; N e — эффективное число аллелей на локус; H o — наблюдаемая гетерозиготность; H e — ожидаемая гетерозиготность; F is — индекс фиксации; PIC — индекс информативности локуса (Polymorphic Information Content).
Результаты свидетельствуют о значительном аллельном разнообразии и дифференциации генетической структуры выборки. Число фактически наблюдаемых аллелей (N а ) на локус варьировало от 3 (в локусе Ap288) до максимального значения 10 (в локусе A113). В то же время эффективное число аллелей (N e ), отражающее равномерность распределения их частот, предсказуемо оказалось ниже фактического и находилось в диапазоне от 1,098 (для Ap218) до 5,070 (для B124). Заметный разрыв между значениями и N e (например, в локусе A113 при N а = 10 показатель N e составил лишь 4,402) указывает на неравномерное распределение аллелей по частоте встречаемости и потенциальное преобладание отдельных мажорных вариантов в популяции.
A. Knoll с соавт. (29) при оценке чешских популяций Apis mellifera зафиксировали более широкий диапазон изменчивости от 4 до 20 аллелей на локус. Однако авторы использовали панель из 22 STR локусов, разделенную на 4 независимых мультиплексных комплекса. Сходный многокомпонентный подход применил R. Balazs с соавт. (32) при генотипировании венгерских пчел по 20 микросателлитным маркерам. Для получения сопоставимого профиля авторам потребовалось оптимизировать сложную схему амплификации, включающую 6 мультиплексных и 3 симплексных ПЦР-ре-акции, с последующим объединением продуктов и их разделением в ходе фрагментного анализа на 3 системы (по 6-7 локусов одновременно). Меньшее максимальное число аллелей в нашем исследовании (от 3 до 10) может быть обусловлено фиксированным объемом исследованной группы (n = 185). Это позволило нам успешно объединить все 15 полиморфных локусов в единую мультиплексную систему. Такой подход кратно снижает трудоемкость и коммерческую стоимость анализа по сравнению с системами многокомпонентного генотипирования, сохраняя при этом аналитическую точность, соответствующую международному уровню.
Показатели теоретически ожидаемой гетерозиготности (H e ), характеризующие генетическую изменчивость системы при допущении равновесия Харди-Вайнберга, варьировали от минимальных (0,089, Ap218) до максимальных (0,803, B124). Полученные нами данные по локусу B124 демонстрируют высокую комплементарность с результатами фундаментальных международных исследований молекулярно-генетической структуры Apis mellifera . Указанный микросателлитный маркер традиционно классифицируется как высокополиморфный и референсный для европейских пород медоносной пчелы. В частности, в классической работе Estoup с соавт. (35) при генотипировании пчел эволюционных линий C и M для локуса B124 были зафиксированы практически идентичные значения ожидаемой гетерозиготности (H e ≈ 0,81). А. Кожахмет с соавт. (43) в недавнем исследовании генетической структуры казахстанских популяций пчел показал, что именно локус B124 был назван «наиболее полиморфным» среди девяти проанализированных STR маркеров. Сравнение с фактически наблюдаемой гетерозиготностью (H o ) выявило разнонаправленные тенденции в структуре выборки. Для подавляющего большинства локусов зафиксирован дефицит гетерозигот (H o < H e ), что нашло отражение в положительных значениях индекса фиксации (F is ) и частоты нуль-аллелей F(Null) (до 0,4653 для Ap043 и 0,3934 для A014). Наиболее выраженный дефицит гетерозигот отмечен для локусов Ap043 (F IS = 0,641), A014 (F IS = 0,562), A113 (F IS = 0,461) и B124 (F is = 0,428). Подобное смещение генетического баланса в сторону гомозиготности находит свое объективное обоснование в структуре самого исследованного материала. Поскольку анализируемая выборка являлась сборной и включала в себя представителей трех различных пород медоносных пчел, обнаруженный дефицит гетерозигот представляет собой классическое проявление эффекта Валунда. Это явление возникает вследствие генетической неоднородности выборки и смешения генетически дифференцированных пород, обладающих различающимися частотами аллелей, что при совместном анализе закономерно приводит к кажущемуся избытку гомозигот. При этом сопутствующий вклад в наблюдаемый дефицит гетерозигот по отдельным локусам, например, (Ap043) также могут вносить локальные инбред-ные процессы внутри конкретных пчелосемей. Напротив, локусы Ap218 (F is = - 0,032), Ap019 (F is = - 0,021) и Ap068 (F is = - 0,064) продемонстрировали слабый избыток гетерозигот, что указывает на стабильное сохранение 638
высокого уровня межпородной интрогрессии и генетического разнообразия в данных участках генома даже в условиях межпородной неоднородности.
Однако стратификация объединенного массива по породам выявила принципиальное перераспределение значений популяционно-генетических параметров (табл. 3).
-
3. Сравнительная оценка параметров генетического разнообразия исследованных пород медоносных пчел Apis mellifera L. (усредненные значения по 15 локусам, M ±SEM)
Порода
Серая горная кавказская ( A. mellifera caucasica )
Карника ( A. mellifera carnica )
Карпатская ( A. mellifera carpatica )
N a N e H o H e F is
5,267±0,589 2,219±0,284 0,374±0,046 0,458±0,055 0,120±0,069
3,333±0,374 2,085±0,234 0,387±0,070 0,423±0,065 0,065±0,072
4,133±0,350 2,405±0,284 0,412±0,053 0,485±0,064 0,077±0,063
Примечание. N а — среднее число аллелей на локус; N e — эффективное число аллелей на локус; H o —
наблюдаемая гетерозиготность; H e — ожидаемая гетерозиготность; F is — индекс фиксации.
Внутрипородный анализ продемонстрировал снижение значения индекса фиксации F is до популяционно допустимого уровня (0,065-0,120). Повторная оценка частоты нуль-аллелей F(Null) в программном пакете Cervus v. 3.0.7, выполненная обособленно для группы серой горной кавказской породы ( n = 136), привела к стабилизации показателей по абсолютному большинству локусов. В частности, для маркерного локуса A014 показатель F(Null) снизился с 0,393 (39,3 %) до 0,016 (1,6 %), а для локусов Ap218, Ap019 и Ap068 итоговые оценки сместились в область отрицательных величин либо не превышали порогового значения F(Null) < 0,05.
Полученные результаты с достоверностью подтверждают, что дефицит гетерозигот, зафиксированный на объединенной выборке ( n = 185) был следствием эффекта Валунда (Wahlund effect), вызванного смешиванием генетически дифференцированных пород, а не результатом инбридинга или артефактов ПЦР-амплификации. Сохранение локального дефицита гетерозиготных генотипов по отдельным локусам (в частности, Ap043) на внутри-породном уровне имеет под собой четкую биологическую основу и обусловлено спецификой отбора материала. Поскольку выборка формировалась из блоков по 25-35 рабочих особей от одной семьи, в массиве данных закономерно присутствует выраженная родственная (семейная) структурированность. Высокая частота идентичных аллелей, унаследованных суперсестрами от одной матки, воспринимается математическим алгоритмом Cervus как локальный избыток гомозигот, что приводит к завышению расчетного индекса F(Null). Таким образом, данные отклонения носят не технический (выпадение аллелей при ПЦР), а естественный биологический характер, обусловленный полиандрией и родственной структурой пчелиной семьи, что не препятствует использованию панели для генетической паспортизации.
Ключевым критерием пригодности разработанной панели для популяционно-генетического мониторинга служит индекс полиморфного информационного контента (PIC). Согласно общепринятой классификации, маркеры с PIC > 0,5 относятся к категории высокоинформативных, с 0,25 < PIC < 0,5 — к умеренно информативным, а с PIC < 0,25 — к малоинформативным. На основе данных установлено, что более половины исследованных локусов (8 из 15) обладают высоким уровнем информативности: B124 (PIC = 0,784), A113 (PIC = 0,742), Ap043 (PIC = 0,731), A079 (PIC = 0,661), Ap249 (PIC = 0,574), Ap068 (PIC = 0,574), Ap223 (PIC = 0,519) и Ap226 (PIC = 0,502). Высокие значения PIC для этих локусов строго коррелируют с повышенными значениями числа эффективных аллелей (N e > 2,2)
и ожидаемой гетерозиготности (H e > 0,5). Умеренную информативность продемонстрировали локусы A007, HB-C16-05, Ap019, A014, а также Ap288 (0,415 < PIC < 0,479). Низкий уровень информативности выявлен лишь для двух локусов — Ap273 (PIC = 0,167) и Ap218 (PIC = 0,088). Минимальный полиморфизм локуса Ap218 закономерно подтверждается его низкой эффективной аллельной емкостью (N e = 1,098). Особый интерес представляют локусы Ap249 и B124. Локус Ap249 ассоциирован с геном Aos1 , участвующим в реакциях на стресс и в иммунном ответе, а локус B124 связан с геном dpr7 , кодирующим иммуноглобулиновые белки. Их селективно-адаптивный характер подтверждается мировыми исследованиями (44). S.R. Nikolova с соавт. (45) успешно использовали локус Ap249 для характеристики генетического полиморфизма у контролируемых популяций A. m. carnica и A. m. caucasica. Таким образом, за исключением нескольких малоинформативных маркеров, исследованный комплекс из 15 микросателлитных локусов представляет собой эффективную и высокочувствительную тест-систему, пригодную для паспортизации, оценки биоразнообразия и анализа генетической структуры популяций медоносных пчел.
Важным этапом оценки пригодности разработанной 15-локусной панели для идентификационных исследований и контроля происхождения являлся анализ независимости наследования входящих в нее маркеров. Попарный анализ неравновесия по сцеплению (Linkage Disequilibrium, LD) проводили в наиболее репрезентативной группе серых горных кавказских пчел ( n = 136). Из 105 возможных парных сочетаний микросателлитных локусов для абсолютного большинства сравнений уровни значимости (p-value) находились в пределах статистической погрешности (p > 0,05). После применения консервативной поправки Бонферрони на множественные сравнения (p critical = 0,05/105 = 0,00048) ни для одной пары локусов не было выявлено статистически значимого неравновесия по сцеплению (все попарные сравнения охарактеризованы как NS, Not Significant). Полученные данные свидетельствуют об отсутствии физического сцепления между исследуемыми маркерами и подтверждают корректность использования мультипликативной модели при совокупной оценке идентификационных параметров и вероятностей исключения родства в разработанной тест-системе.
Оценка воспроизводимости разработанной тест-системы, проведенная посредством постановки всех образцов в двух повторах, показала 100 % совпадение STR-генотипов каждого индивидуума.
В таблице 4 представлены показатели эффективности разработанной мультиплексной тест-системы при проведении генетической экспертизы.
-
4. Результаты оценки возможности применения разработанной тест-системы мультиплексного генотипирования STR-маркеров для генетической экспертизы (паспортизации) медоносной пчелы Apis mellifera L.
Параметр Величина показателя
Вероятность совпадения генотипов индивидуума (PI) 1,94х10 - 10
Точность подтверждения происхождения по обоим родителям (P1X, %)99,88
Точность подтверждения происхождения по одному родителю (P2X, %)97,09
Точность исключения обоих родителей (P3X, %)99,99
Анализ расчетных параметров (см. табл. 4) свидетельствует о крайне низкой вероятности случайного совпадения индивидуальных STR-профилей (PI = 1,94х10 - 10), что фактически исключает возможность ошибочной идентификации особей и подтверждает высокую разрешающую способность созданной панели локусов. Полученные значения точности подтверждения происхождения как по одному (P2X), так и по обоим родителям 640
(P1X) в сочетании с высоким показателем исключения (P3X) доказывают высокую информативность тест-системы.
Сопоставление полученных характеристик с используемой ранее 7-локусной панелью авторов демонстрирует существенное превосходство разработанной 15-локусной системы по ключевым параметрам дискриминационной силы (см. табл. 4). Несмотря на то, что прежняя панель обладала высокой теоретической уникальностью генотипирования PI = 9,7½10 - 11 и точностью исключения обоих родителей P3X = 99,906 %, ее показатель подтверждения происхождения по одному родителю при отсутствии данных о втором (P2X) составлял всего 92,95 %. Согласно методическим рекомендациям по генетической экспертизе (46, 47), минимально допустимый нормативный порог для племенного ядра составляет P2X ≥ 95,0 %.
Расширение панели до 15 локусов позволило успешно преодолеть нормативный барьер: показатель P2X вырос с 92,95 % до 97,09 %, что гарантирует высокую точность идентификации даже в сложных экспертных ситуациях (например, при гибели матки и отсутствии сведений о ее генотипе). Совокупный показатель исключения обоих родителей (P3X) при этом достиг 99,99 %.
На рисунке 1 представлена электрофореграмма локусов микросателлитов разработанной тест-системы мультиплексного генотипирования STR-маркеров медоносной пчелы.
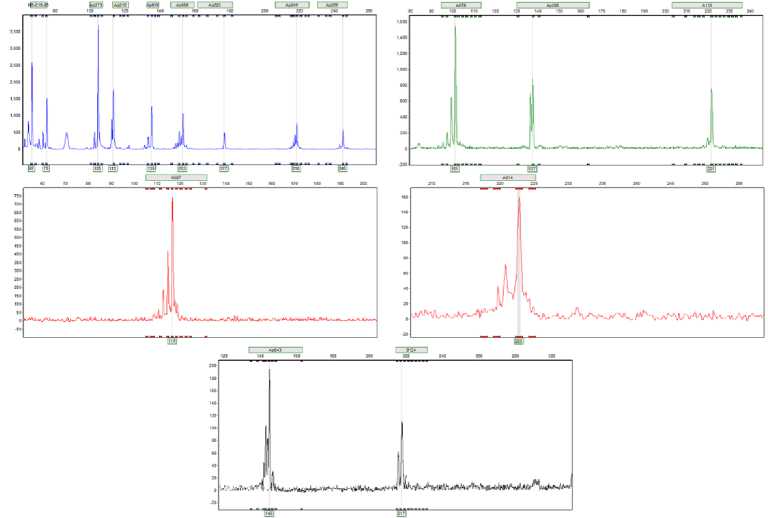
Рис. 1. Электрофореграмма продуктов амплификации по 15 микросателлитным локусам разработанной тест-системы для идентификации и паспортизации медоносной пчелы Apis mellifera L. Фрагменты помечены специфическими флуоресцентными красителями FAM, R6G, ROX и TAMRA: FAM — HB-C16-05, Ap273, Ap218, Ap019, Ap068, Ap223, Ap249, Ap226; R6G — A079, Ap288, A113; ROX — A014, A007; TAMRA — Ap043, B124.
На электрофореграмме (см. рис. 1) продемонстрирована эффективная детекция и высокая разрешающая способность разработанной тест-системы на основе 15 аллелей микросателлитных локусов, объединенных в единую мультиплексную панель. Продукты ПЦР-амплификации разделены по флуоресцентным каналам (красителям) и диапазонам размеров фрагментов
(п.н.), что полностью исключает взаимное перекрывание аллелей с близкими длинами.
Таким образом, разработанная мультиплексная тест-система для медоносной пчелы обеспечивает высокую точность анализа. Разрешающей способности панели достаточно для автоматического определения аллелей (аллель-коллинга), надежной паспортизации пчелиных семей и последующей оценки популяционной структуры.
С использованием разработанной системы мультиплексного генотипирования STR-маркеров проведено исследование аллелофонда исследуемой выборки медоносных пчел. Аллельное и генетическое разнообразие в исследуемой популяции представлены на рисунке 2.
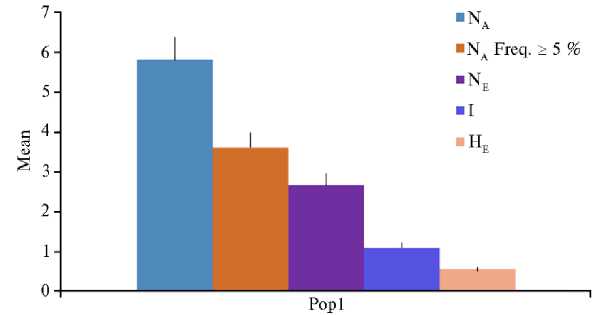
Рис. 2. Средние значения ( M ± SEM) параметров генетического разнообразия в исследуемой выборке ( n = 185) медоносных пчел Apis mellifera L.: N A — среднее число аллелей на локус; N a Freq. ≥ 5 % — среднее число аллелей с частотой встречаемости ≥ 5 %; N e — среднее эффективное число аллелей на локус; I — информационный индекс Шеннона; H e — ожидаемая гетерозиготность.
Для верификации аналитической эффективности разработанной тест-системы, состоящей из 15 микросателлитных локусов, был проведен расчет усредненных генетических параметров для всего исследованного массива особей ( n = 185). На данном этапе анализа вся выборка рассматривалась как единая популяция (Pop1) без предварительного дифференцирования по породной принадлежности. Полученные усредненные показатели аллельного разнообразия и гетерозиготности (см. рис. 2) наглядно характеризуют аналитическую чувствительность разработанной панели маркеров при работе с генетически неоднородным материалом.
Усредненное по всем 15 локусам число фактически наблюдаемых аллелей (N a ) составило 5,80 ± 0,562. При этом среднее число наиболее распространенных аллелей, чья частота в общем пуле составляет 5 % и более (N a Freq. ≥ 5 %), зафиксировано на отметке 3,60 ± 0,363. Значительный разрыв между этими показателями указывает на то, что разработанная тест-система обладает высокой чувствительностью и способна эффективно идентифицировать редкие и низкочастотные аллельные варианты, доля которых в суммарном генофонде составила 37,9 %. Такое свойство тест-системы принципиально важно для решения задач индивидуальной паспортизации пчелиных семей и выявления следов интрогрессии (межпородной примеси). Среднее эффективное число аллелей (N e ), отражающее сбалансированность распределения их частот, составило 2,647 ± 0,298, что более чем вдвое уступает фактическому показателю N a и математически подтверждает выраженную неравномерность концентрации отдельных аллельных вариантов 642
в локусах.
Высокий информационный объем и емкость используемой панели маркеров подтверждаются значениями информационного индекса Шеннона (I), усредненная величина которого составила 1,088 ± 0,118. Удержание этого индекса на отметке единицы в условиях объединенного анализа свидетельствует о том, что тест-система сохраняет высокую информативность и не теряет дискриминационную способность в условиях неизбежного генетического шума, возникающего при слиянии различных породных пулов. Поскольку всю выборку анализировали как единый массив, среднее число приватных аллелей закономерно дублирует показатель фактического разнообразия (5,80 ± 0,562).
Средний показатель ожидаемой гетерозиготности (H e ) составил 0,550 ± 0,052, практически полностью совпадая со значением несмещенной ожидаемой гетерозиготности ( u H e = 0,552 ± 0,052). Нахождение средней ожидаемой гетерозиготности на уровне «золотой середины» (около 0,55) свидетельствует об оптимальном балансе полиморфной емкости панели локусов: маркеры достаточно консервативны, чтобы удерживать общие видовые рамки, и в то же время достаточно изменчивы для фиксации межпородной дифференциации. Таким образом, анализ данных доказывает, что даже без сведений о породной принадлежности разработанная тест-система способна успешно функционировать в сложных полевых условиях, обеспечивая надежный первичный генетический скрининг и выявление внутренней неоднородности сборных выборок медоносных пчел.
Итак, разработанная 15-локусная панель микросателлитных маркеров представляет собой завершенный инструмент, обеспечивающий принципиально новый уровень контроля качества племенного материала. Учитывая биологические особенности репродукции Apis mellifera (полиандрию и трансграничный радиус спаривания), применение этой тест-системы в практике промышленного пчеловодства позволит преодолеть ограничения традиционной морфометрии. Панель обеспечивает надежную индивидуальную паспортизацию семей, точную верификацию происхождения по отцовским и материнским линиям, а также своевременную детекцию неконтролируемой гибридизации. В долгосрочной перспективе масштабирование данного метода послужит основой для создания общенациональной системы генетического мониторинга, направленной на сохранение и защиту биологического разнообразия.
