
Регуляция гепсидином продукции цитокинов, фактора роста эндотелия сосудов, гранзима А CD8+Т-лимфоцитами
Статья: Регуляция гепсидином продукции цитокинов, фактора роста эндотелия сосудов, гранзима А CD8+Т-лимфоцитами
Журнал: Вестник Пермского университета. Серия: Биология @vestnik-psu-bio
Рубрика: Иммунология
Статья в выпуске: 3, 2026 года.
Бесплатный доступ
Изучено влияние пептидного гормона гепсидина, регулирующего обмен ионов железа, на продукцию интерлейкина 10 (interleukin-10, IL-10), трансформирующего фактора роста бета (transforming growth factor beta, TGF-beta), фактора роста эндотелия сосудов (vascular endothelial growth factor, VEGF), гранзима А цитотоксическими CD8+Т-лимфоцитами условно здоровых небеременных женщин в системе in vitro. Влияние гепсидина исследовали в концентрациях, характерных для I (20 нг/мл) и III (2 нг/мл) триместров беременности, а также для анемии воспаления (200 нг/мл). Установлено, что гепсидин в исследуемых концентрациях не влияет на продукцию противовоспалительных цитокинов IL-10 и TGF-beta, гранзима А, но модулирует синтез VEGF. Полученные результаты расширяют наше понимание механизмов реализации иммуномодулирующей активности гепсидина в отношении цитотоксических CD8+Т-лимфоцитов в аспекте физиологической беременности и воспалении.
Короткий адрес: https://sciup.org/147255441
IDS: 147255441 | УДК: 571.27:618.2:612.112.91 | DOI: 10.17072/1994-9952-2026-3-333-340
Hepcidin regulation of the production of cytokines, vascular endothelial growth factor, and granzyme A by CD8+T-lymphocytes
The effect of the peptide hormone hepcidin, which regulates iron metabolism, on the production of interleukin 10 (IL-10), transforming growth factor beta (TGF-beta), vascular endothelial growth factor (VEGF), and granzyme A by cytotoxic CD8+ T-lymphocytes from healthy non-pregnant women was studied in vitro. The effect of hepcidin was studied at concentrations characteristic of the first (20 ng/ml) and third (2 ng/ml) trimesters of pregnancy, as well as for anemia of inflammation (200 ng/ml). It was found that hepcidin at the studied concentrations does not affect the production of anti-inflammatory cytokines IL-10 and TGF-beta, granzyme A, but modulates VEGF synthesis. The obtained results expand our understanding of the mechanisms of hepcidin's immunomodulatory activity towards cytotoxic CD8+ T-lymphocytes in the context of physiological pregnancy and inflammation.
Текст научной статьи Регуляция гепсидином продукции цитокинов, фактора роста эндотелия сосудов, гранзима А CD8+Т-лимфоцитами
EDN: TWYDES
Пептидный гормон гепсидин является одним из ведущих регуляторов метаболизма ионов железа [Park et al., 2001; Orlova, Gorbunova, 2026]. Гормон синтезируется, главным образом, клетками печени и снижает уровень ионов железа в сыворотке крови. Механизм реализации эффектов гормона связан с угнетением абсорбции железа энтероцитами и реабсорбции нефроцитами [Park et al., 2001]. На клеточном уровне гормон взаимодействует с ферропортином – белком-экспортером ионов железа, вызывая его деградацию, что приводит к накоплению ионов железа в клетках [Park et al., 2001]. Избыток ионов железа и высокий уровень холо-трансферрина – переносчика ионов железа в плазме, стимулируют синтез гепсидина гепатоцитами, макрофагами ретикулоэндотелиальной системы и энтероцитами [Ramos et al., 2011]. Наоборот, снижение концентрации железа в плазме угнетает синтез гепсидина в этих клетках [Fleming, Sly, 2001]. Генетические дефекты выработки и секреции гепсидина ассоциированы с избыточным усвоением железа и развитием наследственного гемохроматоза [Pietrangelo, 2004].
При физиологической беременности потребность в ионах железа существенно нарастает, а уровень гепсидина снижается пропорционально сроку беременности, что необходимо для роста плаценты и обеспечения плода достаточным количеством железа [Koenig et al., 2014]. Выявлено, что при беременности гепсидин препятствует транспортировке ионов железа через плаценту [Nemeth , Ganz, 2009; Fisher, Nemeth, 2017]. Повышение же его концентрации в организме матери за счет введения экзогенного гормона приводит к анемии плода и его гибели [Sangkhae et al., 2020]. Тогда как нарушение выработки геп-сидина у матери приводит к рождению потомства с избытком железа в организме [Sangkhae et al., 2020]. Все вышесказанное свидетельствует о важной роли гепсидина в механизмах, обеспечивающих успешное развитие беременности.
Воспаление является мощным индуктором экспрессии гепсидина. При воспалительных процессах уровень гормона существенно увеличивается под влиянием провоспалительных цитокинов и стимуляции толл-рецепторов, что приводит к развитию анемии воспаления, ограничивающей доступность ионов железа для патогенных бактерий [Nemeth et al., 2003; Kautz et al., 2014]. Увеличение уровня гепсидина при воспалительных процессах при беременности приводит к ее неблагоприятному исходу [Bothwell, 2000]. Показано, что у женщин с беременностью, осложненной воспалительными процессами и дефицитом питательных веществ, повышенный уровень гепсидина являлся основным фактором, определяющим задержку внутриутробного развития плода [Gonzalez-Fernandez et al., 2021]. Такое тяжелое осложнение беременности, как преэклампсия, сопровождается одновременным увеличением концентрации ионов железа в плазме и уровня гепсидина, что свидетельствует о нарушении механизмов реализации эффектов гормона [Toldi et al., 2010] и потенциально влияет на доступность железа для плацентарного переноса. При этом преэклампсия сопровождается существенным усилением цитотоксической активности CD8+Т-лимфоцитов, подавление функций которых играет критическую роль для предотвращения иммунной атаки на клетки полуаллогенного плода. Можно полагать, что гепсидин и уровень ионов железа влияют на реализацию функций CD8+Т-лимфоцитов, однако эти вопросы остаются неизученными. Данное предположение подтверждается исследованиями, проведенными на мышах, где убедительно показано, что дефицит ионов железа подавляет развитие и функции вирус-специфичных CD8+Т-клеток, а гепсидин регулирует экспрессию активационных молекул и пролиферацию CD8+ Т-клеток [Frost et al., 2021].
Известно, что развитие периферической иммунной толерантности при физиологической беременности опосредовано, в том числе, миграцией цитотоксических CD8+Т-лимфоцитов в зону фето-плацентарного контакта, трансформацией их функций с усилением регуляторной, фетотрофической, ангиогенной активности [Li et al., 2025]. Тогда как повышение цитотоксической активности CD8+Т-лимфоцитов, реализуемой путем секреции гранзимов, гранулизинов, провоспалительных цитокинов, ассоциировано с абортами. При физиологической беременности в зоне фето-плацентарного контакта повышается концентрация противовоспалительных цитокинов: интерлейкина 10 (interleukin-10, IL-10) и трансформирующего фактора роста бета (transforming growth factor beta, TGF-beta), препятствующих реализации цитотоксической функции клеток иммунной системы и отторжению плода, а также факторов васкуляризации, среди которых наиболее изученным является фактор роста эндотелия сосудов (vascular endothelial growth factor, VEGF), необходимый для ангиогенеза и роста плаценты [Ширшев, 2009]. Показано, что цитотоксические CD8+Т-лимфоциты с регуляторной активностью в зоне фето-плацентарного контакта также участвуют в продукции вышеупомянутых молекул [Li et al., 2025], однако роль гепсиди-на в регуляции этой функции в аспекте беременности не изучена.
Цель работы – изучить влияние гепсидина в концентрациях, характерных для I (20 нг/мл) и III (2 нг/мл) триместров физиологической беременности, а также для анемии воспаления (200 нг/мл), на про- дукцию гранзима А, VEGF, противовоспалительных цитокинов IL-10, TGF-beta цитотоксическими CD8+Т-лимфоцитами in vitro.
Материалы и методы исследования
В работе использовали периферическую венозную кровь условно-здоровых небеременных женщин репродуктивного возраста (от 23 до 38 лет) в I фазе (фолликулярной) менструального цикла (n = 7). Критериями включения в эксперимент являлись: отсутствие острых и хронических соматических, эндокринных, аутоиммунных, генетических заболеваний, отрицание диет, прием контрацептивных, гормональных, противовоспалительных или антибактериальных препаратов. Все процедуры, выполненные в исследованиях с участием людей, одобрены локальным этическим комитетом ИЭГМ УрО РАН и соответствуют этическим стандартам национального комитета по исследовательской этике и Хельсинкской декларации 1964 г. и ее последующим изменениям или сопоставимым нормам этики. От каждого участника исследования получено информированное добровольное согласие.
Периферическую венозную кровь получали из локтевой вены утром натощак в вакуумные пробирки с этилендиаминтетрауксусной кислотой в качестве антикоагулянта после не менее чем 8 ч голодания. Затем на градиенте плотности фиколл-верографина (1.077 г/см3) выделяли мононуклеарные клетки. После этого методом негативной иммуномагнитной сепарации выделяли CD8+Т-лимфоциты с использованием набора Human CD8 T Cell Isolation Kit MojoSort (BioLegend, США) согласно инструкции производителя. Количество выделенных CD3+CD8+лимфоцитов после иммуномагнитной сепарации, чистоту выделения и жизнеспособность оценивали методом проточной цитометрии. Для этого клетки окрашивали LIVE/DEAD-Zombie UV™ красителем, а также моноклональными антителами к молекулам CD3 и к CD8 (Biolegend, США). Стратегия гейтирования включала последовательное выделение гейта мононуклеаров по параметрам площади прямого (FSC-A) и высоты бокового (SSC-H) светорассеивания; дискриминацию слипшихся клеток (дуплетов) по параметрам площади и высоты прямого светорассеивания (FSC-A/FSC-H); определение живых клеток LIVE/DEAD-Zombie UV™ окрашиванием в гейте синглетов, выделение популяций CD3- и CD3+ клеток в гейте живых, определение общего количества CD8+-клеток как процента CD8+-позитивных в гейте CD3+-клеток (рис. 1). Анализ фенотипа клеток осуществляли на проточном цитометре CytoFlex S (BeckmanCoulter, США) с помощью программного обеспечения CytExpert 2.0 (BeckmanCoulter, США). Чистота выделения CD3+CD8+-лимфоцитов методом негативной иммуномаг-нитной сепарации в среднем составляла 96±3%.
Выделенные CD3+CD8+-лимфоциты культивировали в полной питательной среде (ППС) в концентрации 106/мл в присутствии CD3/СD28-активирующих частиц Dynabeads™ Human T-Activator CD3/CD28 for T Cell Expansion and Activation (Gibco, США), имитирующих контакт с антиген-презентирующими клетками, и IL-2 (250 МЕ/мл) (ClaudClone, Китай), поддерживающего жизнеспособность клеток in vitro , в иммунологических 96-луночных планшетах в СО 2 -инкубаторе при 37ºС и 5% СО 2 48 ч. ППС готовили в необходимом объеме непосредственно перед культивированием на основе среды RPMI-1640 (GIBCO, Великобритания), содержащей 10% эмбриональную телячью сыворотку (Sigma, США), 10 мМ Hepes (ICN Рharmaceuticals, США), 2 мМ L-глутамин (ICN Рharmaceuticals, США) и 100 мкг/мл гентамицин (KRKA, Словения) пенициллина G (100 U/мл) – стрептомицин (0.1 мг/мл). Гепсидин (ClaudeClone, Китай) вносили в пробы в концентрациях, характерных для I (20 нг/мл) и III триместров (2 нг/мл) беременности [Toldi et al., 2010; Koenig et al., 2014], а также для анемии воспаления (200 нг/мл) [Toldi et al., 2010; Gonzalez-Fernandez et al., 2021]. Контролем служили пробы без внесения гормона. По окончанию культивирования супернатанты собирались и замораживались для оценки концентрации аналитов (IL-10, TGF-beta, гранзим А, VEGF) методом мультиплексного анализа с использованием набора LEGENDplexTM (Biolegend, Великобритания). Жизнеспособность клеток после процедуры иммуномагнитной сепарации и 48 ч инкубации была более 98% (рис. 1).
Статистический анализ выполнен с помощью программного обеспечения Prism 8.0.1. (Graphpad, США). Соответствие данных закону нормального распределения контролировалось критериями Шапиро-Уилка и Колмогорова-Смирнова. Для анализа связанных данных двух и более экспериментальных групп, соответствующих нормальному распределению, использовали дисперсионный анализ для повторных измерений ( RM ANOVA ) с апостериорным критерием Тьюки (Tukey's multiple comparisons test).
Результаты и обсуждение
Установлено, что инкубация выделенных методом негативной иммуномагнитной сепарации CD3+CD8+-лимфоцитов в течение 48 ч как в ППС, так и в присутствии исследуемых концентраций геп-сидина не влияла на жизнеспособность клеток (процент живых клеток ex vivo – 99.63 ± 0.42; после 48 ч инкубации в ППС – 98.95 ± 1.06; после 48 ч инкубации в присутствии гепсидина, 200 нг/мл –
99.28 ± 0.67; после 48 ч инкубации в присутствии гепсидина, 20 нг/мл – 98.99 ± 1.14; после 48 ч инкубации в присутствии гепсидина, 2 нг/мл – 99.02 ± 1.15).
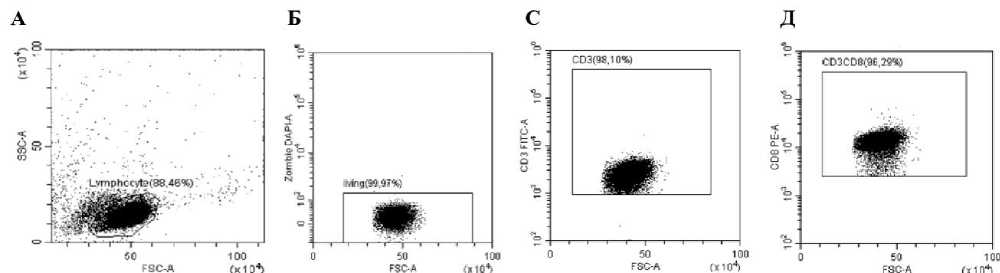
Рис. 1. Стратегия гейтирования CD3+CD8+ лимфоцитов.
Стратегия гейтирования включала последовательное выделение гейта мононуклеаров (А) по параметрам площади прямого (FSC-A) и высоты бокового (SSC-H) светорассеивания; определение живых клеток LIVE/DEAD-Zombie UV™ окрашиванием в гейте синглетов (Б), выделение популяций CD3+ клеток в гейте живых (С), определение общего количества CD8+-клеток как процента CD8+-позитивных в гейте CD3+-клеток (Д)
[Strategy for gating CD3+CD8+ lymphocytes.
The gating strategy included sequential isolation of the mononuclear gate (A) according to the parameters of the area of direct (FSC-A) and the height of lateral (SSC-H) light scattering; determination of LIVE/DEAD-Zombie UV™ cells by staining singlets in the gate (B), isolation of CD3+ cell populations in the live gate (C), determination of the total number of CD8+ cells as the percentage of CD8+-positive in the gate CD3+ cells (D)]
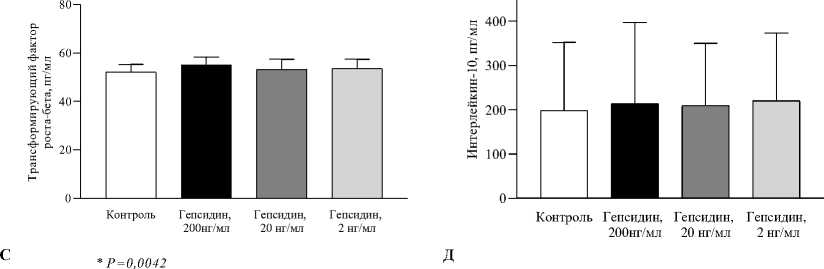
Цитотоксические лимфоциты (CD3+CD8+-клетки) уничтожают клетки-мишени путем секреции продуктов литических гранул – перфоринов и гранзимов, которые запускают апоптоз. Гранзим А индуцирует образование активных форм кислорода, следствием чего является активация нуклеаз, которые осуществляют одноцепочечные разрывы ДНК [Киселевский, 2020]. Также гранзим А проникает в митохондрии и разрезает субъединицы комплекса дыхательной цепи [Киселевский, 2020]. Поскольку показано, что продукция и секреция гранзимов цитотоксическими лимфоцитами зависит от внутриклеточного уровня ионов железа [Chen et al., 2016], изучено влияние гепсидина на секрецию гранзима А CD3+CD8+-лимфоцитами. Установлено, что гормон в концентрациях, характерных для воспаления и для беременности, не влиял синтез и секрецию гранзима А CD8+Т-лимфоцитами (рис. 2). Лишь в концентрации, характерной для первой половины беременности, выявлялась тенденция к усилению продукции гранзима А, но она не была достоверной. Можно полагать, что при физиологической беременности и воспалении геп-сидин на влияет на продукцию гранзима А CD8+Т-лимфоцитами. Тогда как при физиологической беременности в зоне фетоплацентарного контакта под влиянием, главным образом, гормонов плаценты, цитотоксические CD8+Т-лимфоциты приобретают регуляторную активность и начинают продуцировать факторы, препятствующие реализации цитотоксической функции, как противовоспалительные цитокины, а, напротив, способствующие фетопротекции, как VEGF [Li et al., 2025]. Гепсидин присутствует в периферической крови матери при беременности и продуцируется плодом, начиная c 5 недели [Heath et al., 2013]. В проведенном исследовании установлено, что гепсидин в исследованных концентрациях не влияет на продукцию противовоспалительных цитокинов IL-10, TGF-beta CD8+Т-лимфоцитами, но модулирует синтез VEGF (рис. 2). Так. в концентрации, характерной для анемии воспаления, гормон усиливает синтез VEGF CD8+Т-лимфоцитами как в сравнении с контролем, так и в сравнении с действием гепсидина в концентрациях, характерных для беременности. При этом в концентрациях, характерных для беременности, гепсидин не оказывает влияния на продукцию VEGF CD8+Т-лимфоцитами. Следует отметить, что в единичных исследованиях была выявлена положительная корреляция между уровнем гепси-дина и VEGF в сыворотке крови больных при анемии воспаления, что подтверждает возможную вовлеченность гормона в регуляцию синтеза VEGF [Song et al., 2013]. Также показано, что преэклампсия, характеризующаяся повышенным уровнем гепсидина, сопровождается увеличением концентрации VEGF в сыворотке крови [Molvarec et al., 2010]. Можно полагать, что повышенный уровень гепсидина при преэклампсии является одной из причин усиления продукции VEGF CD8+Т-лимфоцитами. Учитывая, что гормон инициирует накопление ионов железа в клетках, возможно, что данные механизмы участвуют в регуляции выработки VEGF, в том числе и CD8+Т-лимфоцитами. Подобные закономерности описаны и для других типов клеток [Harned et al., 2010].
А
Б
* P=0,0002
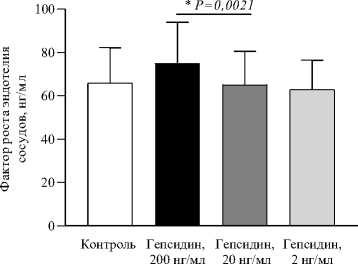
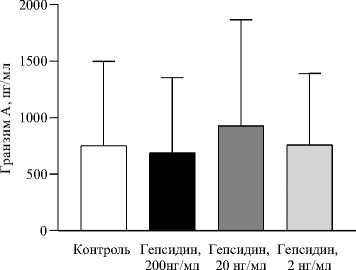
Рис. 2. Продукция цитокинов, фактора роста эндотелия сосудов, гранзима А CD8+Т-лимфоцитами под влиянием гепсидина: трансформирующий фактор роста бета (А); интерлейкин-10 (Б); фактор роста эндотелия сосудов (С); гранзим А (Д).
Данные представлены в виде среднего арифметического и стандартного отклонения, значения « p » представлены в соответствии с данными дисперсионного анализа для повторных измерений ( RM ANOVA ) с апостериорным критерием Тьюки
[Production of cytokines, vascular endothelial growth factor, and granzyme A by CD8+T-lymphocytes under the influence of hepcidin: transforming growth factor beta (A); interleukin-10 (B); vascular endothelial growth factor (C); granzyme A (D).
Data are presented as mean and standard deviation, values of " p " are presented according to the RM ANOVA with the posteriori Tukey's multiple comparisons test]
Заключение
Установлено, что гепсидин в исследуемых концентрациях не влияет на продукцию протеолитического фермента гранзима А, противовоспалительных цитокинов IL-10 и TGF-beta CD8+Т-лимфоцитами, но модулирует синтез VEGF. Полученные результаты расширяют наше понимание механизмов реализации иммуномодулирующей активности гепсидина в отношении цитотоксических CD8+Т-лимфоцитов в аспекте физиологической беременности и анемии воспаления.
