
Роль белка FGD1 в прогрессировании злокачественных опухолей
Журнал: Сибирский онкологический журнал @siboncoj
Рубрика: Обзоры
Статья в выпуске: 4 т.25, 2026 года.
Бесплатный доступ
Цель исследования – провести систематический анализ и обобщить современные данные о роли белка FGD1 (фациогенитальная дисплазия 1) в механизмах опухолевого прогрессирования и метастазирования злокачественных опухолей, таких как карцинома молочной железы, остеогенная саркома, меланома, гепатоцеллюлярная карцинома и ацинарная карцинома предстательной железы. Материал и методы. В обзор включены доступные сведения, полученные из отечественных и зарубежных литературных источников, опубликованных в базах данных MedLine, Pubmed и др. за последние 15 лет Результаты. Находящийся в Х-хромосоме ген FGD1 кодирует одноименный белок, который функционирует как фактор обмена гуаниновых нуклеотидов (GEF) и является специфическим активатором ГТФазы CDC42. Через свои эффекторы FGD1 регулирует множество внутриклеточных процессов, включая экспрессию генов, мембранный транспорт, поляризацию клеток и организацию цитоскелета. В представленном обзоре рассмотрены возможные механизмы прогрессирования и метастазирования злокачественных опухолей, регулируемые белком FGD1. Заключение. Механизмы прогрессирования и метастазирования злокачественных опухолей являются интенсивно исследуемой проблемой в современной онкологии. Анализ литературных данных показал, что белок FGD1 может быть перспективной «таргетной» молекулой. Дальнейшее изучение взаимодействия FGD1/CDC42 и PI3K/AKT сигнальных путей позволит расширить возможности в лечении некоторых злокачественных опухолей.
Короткий адрес: https://sciup.org/140316534
IDS: 140316534 | УДК: 616-006.6-091:577.112 | DOI: 10.21294/1814-4861-2026-25-4-156-164
The role of FGD1 protein in tumor progression
The aim of the study was to systematize and summarize current data on the role of the faciogenital dysplasia 1 protein (FGD1) in the mechanisms of progression and metastasis of multiple malignancies including breast carcinoma, osteosarcoma, melanoma, hepatocellular carcinoma and acinar prostate carcinoma. Material and Methods. We reviewed local and international publications registered in the MedLine/ PubMed databases over the past 15 years. Results. The review examines the molecular mechanisms by which FGD1 regulates cancer progression and metastasis. The FGD1 gene, located at the X chromosome, encodes a guanine nucleotide exchange factor (GEF) that specifically activates the gtpase CDC42. Through its effectors, FGD1 is involved in numerous signaling pathways, including gene expression, membrane transport, cell polarization, and cytoskeleton organization. Conclusion. A literature review revealed that the FGD1 protein might be a promising target molecule. Further studies of the interactions between the FGD1/CDC42 and PI3K/AKT signaling pathways will expand treatment options for multiple malignancies.
Текст научной статьи Роль белка FGD1 в прогрессировании злокачественных опухолей
Белок FGD1: структура и функция
Ген FGD1 кодирует одноименный белок (молекулярный вес, 107 kDa), который выявляется на плазматической мембране, пластинчатом комплексе Гольджи и цитозоле [1–3]. FGD1 протеин состоит из нескольких структурных участков (доменов): на N-конце белка находится домен, обогащенный пролином (PRD), за ним располагается участок, гомологичный Dbl (DH), домен, гомологичный плекстрину (PH), FYVE (Fab1, YOTB, Vac1, EEA1 – цинк-содержащий домен), и второй PH домен [1]. FGD1 относится к регуляторным белкам семейства GEF (фактор обмена гуаниновых нуклеотидов), который является специфическим активатором ГТФазы CDC42. Через свой основной эффектор CDC42 белок FGD1 регулирует множество клеточных процессов, включая экспрессию генов, поляризацию клеток, организацию цитоскелета и мембранный транспорт [4–6]. Домен на N-конце белка обеспечивает взаимодействие с Cortactin и mAbp, что определяет его ассоциацию с субкортикальными структурами актинового цитоскелета. Имея высокую аффинность с фосфатидилинозитолами, FYVE и РН домены на С-конце белка обеспечивают его накопление на структурах эн-досомальной системы, пластинчатом комплексе и плазматической мембране. Механизм активации и внутриклеточной регуляции белка FGD1 остается до конца неизвестным. Существует несколько возможных сигнальных путей, регулирующих активность белка FGD1, которые опосредуются через GPCR, EGF и TGF-β/Src-зависимый. Известно, что активация тирозинкиназ семейства Src (SFks), расположенных на мембранах комплекса Гольджи, обеспечивает передачу сигнала из внеклеточного пространства, что приводит к активации множества внутриклеточных сигнальных путей, в том числе и FGD1/CDC42 [1–3]. Молекулярно-генетические исследования показали, что ген FGD1 находится в Х-хромосоме и мутирован при синдроме Аарскога–Скотта (АСС). Синдром входит в группу орфанных болезней и клинически проявляется преимущественным поражением костей лицевого черепа, нарушением роста трубчатых и плоских костей, аномалиями гениталий и задержкой умственного развития [3, 7]. Выявление нескольких классических клинических проявлений АСС, к которым относятся: непропорционально короткий рост, короткие и широкие руки, широко поставленные глаза (гипертелоризм), укороченный нос и подтянутая мошонка, является достаточным основанием для подтверждения синдрома. Нарушение роста у носителей АСС начинает проявляться уже с третьего года жизни ребенка и выражается в виде отставания в росте, отсутствия «скачка» роста и появления костно-лицевых дефектов [3, 7].
Масштабные исследования, проведенные в последние годы по секвенированию генома (NGS), позволили выявить спектр генов и специфических мутаций, ассоциированных с развитием и прогрессированием часто встречающихся злокачественных опухолей. Известно, что мутации гена FGD1 не являются драйверами канцерогенеза, а, скорее, появляются в процессе опухолевого прогрессирования и опухолевой анаплазии. Исследования последних лет (TCGA, the cancer genome atlas program) показали значимое увеличение экспрессии белка FGD1 в более чем 150 различных опухолях [2]. Эти мутации не являлись специфичными и определялись во всех доменах белка FGD1. Значение каждой выявленной соматической мутации в прогрессировании опухоли пока неизвестно, что требует дальнейшего и всестороннего исследования для определения прогноза и риска метастазирования опухолей.
Высокий уровень экспрессии белка FGD1 был выявлен в карциноме предстательной железы, аденокарциноме легкого, остеогенной саркоме, карциноме молочной железы и меланоме кожи, что коррелирует с их «агрессивностью» и способностью к раннему метастазированию, даже при небольших размерах первичного опухолевого узла, и указывает на его возможную роль в метастазировании [1]. Наряду с FGD1 известны и другие белки, функционирующие как факторы обмена гуаниновых нуклеотидов (prex1, asef, gef-h1), оверэкспрессия которых была выявлена на поздних стадиях опухолевого прогрессирования. Это может приводить к активации ГТФазы CDC42/RAC1, значительно увеличивая мобильность опухолевых клеток через регуляцию актинового цитоскелета с формированием «инвазивного» фенотипа [1, 2, 8, 9].
Меланома кожи
Меланома кожи является одной из наиболее злокачественных опухолей с плохим прогнозом и низким показателем 5-летней выживаемости. Частота встречаемости варьирует в зависимости от региона и в среднем составляет 4:100 000 человек. Использование иммунотерапии, ингибиторов BRAF/MAPK киназы и блокирующей анти-PD1 терапии позволило увеличить выживаемость пациентов. Однако терапия имеет свои ограничения из-за резистентности опухоли к химиопрепаратам [10]. Z. Niu et al. показали, что белок FGD1 может рассматриваться в качестве нового прогностического фактора прогрессирования меланомы кожи [11]. Клинический анализ 346 пациентов установил низкие показатели 5-летней выживаемости при высоком уровне экспрессии белка FGD1. Более того, мультивариантный Cox-анализ выживаемости показал значение FGD1 как независимого прогностического фактора, не связанного с такими уже известными параметрами, как толщина опухоли, глубина инвазии по Кларку, изъязвление опухоли и т.д. Экспериментальные данные, полученные in vitro на клетках меланомы человека (А375ММ), продемонстрировали снижение показателей клеточной пролиферации, инвазивныx свойств опухолевых клеток, клеточной миграции, а также показателей активации PI3K/AKT сигнального пути в условиях нокаута гена FGD1 специфическими shRNA. С другой стороны, в клетках меланомы отмечалось увеличение экспрессии антиапоптоти-ческого фактора – BAX. В серии экспериментов, проведенных на мышах, которым инъецировали подкожно клетки меланомы (линии А-375), отмечалось достоверное уменьшение размеров первичной опухоли и метастатических очагов в легких при подавлении экспрессии гена FGD1 специфическими shRNA [11]. Более того, оверэкспрессия CDC42 в клеточной линии меланомы с мутацией BRAF приводит к увеличению показателей пролиферации и миграции опухолевых клеток [12].
Перестройка экстрацеллюлярного матрикса при воспалительной реакции, эмбриогенезе, тканевой регенерации и опухолевой инвазии лежит в основе формирования специализированных микровыростов на поверхности клетки. В контексте роли белка FGD1 в физиологических (формирование костного матрикса) и патологических (метаста-
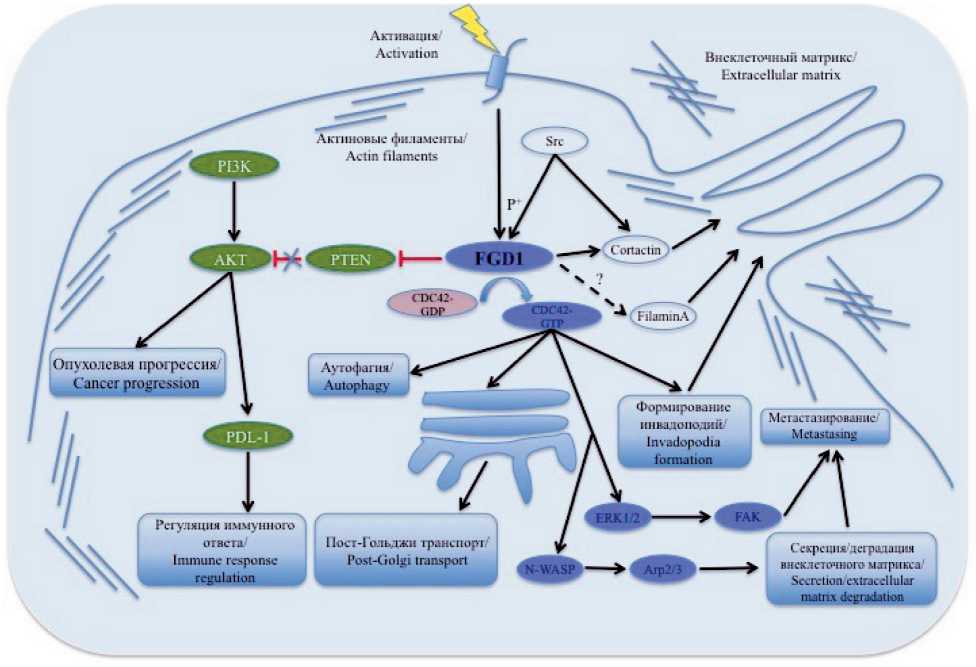
Рис. 1 Внутриклеточные сигнальные пути, регулируемые белком FGD1, в опухолевом прогрессировании и метастазировании. Примечания: FGD1 – белок фациогенитальной дисплазии 1; CDC42 – гомолог белка цикла клеточного деления 42;
Src – не связанная с клеточным рецептором тирозинкиназа; PI3K – фосфатидилинозитол киназа 3; АКТ – серин-треониновая протеинкиназа; PDL1 – (Programmed cell death 1; CD279) мембранный белок; PTEN – фосфатаза с двойной субстратной специфичностью; Cortactin – кортактин; Filamin A – актин-связывающий протеин; ERK1/2 – белки семейства митоген-активируемых протеинкиназ (MAPK); Arp 2/3 – белковый комплекс (родственные актину белки); FAK – нерецепторная тирозинкиназа; N-WASP – белок синдрома Вискотта–Олдрича; рисунок выполнен авторами
Fig. 1. Intracellular signaling pathways regulated by FGD1 protein in tumor progression and metastasis. Notes: FGD1 – faciogenital dysplasia protein 1; CDC42 – cell division cycle protein 42 homolog; Src – non-receptor tyrosine kinase; PI3K – phosphatidylinositol kinase 3; AKT – serine-threonine protein kinase; PDL1 – (Programmed cell death 1; CD279) membrane protein; PTEN – dual substrate specificity phosphatase; Cortactin – cortactin; Filamin A – actin binding protein; ERK1/2 – mitogen-activated protein kinase (MAPK) family proteins; Arp 2/3 – actin-related protein complex; FAK – non-receptor tyrosine kinase; N-WASP – Wiskott–Aldrich syndrome protein; created by the authors
зирование) условиях влияние на внеклеточный матрикс может иметь определенное практическое значение. Одним из механизмов блокирующего эффекта белка FGD1 на прогрессирование меланомы может быть уменьшение количества псевдоподий в опухолевых клетках, что значительно ограничивает «инвазивность» опухоли. Псевдоподии представляют собой протеолитически активные специализированные выросты плазматической мембраны и являются ведущим клеточным инструментом в опухолевой инвазии. Этот процесс включает в себя субкортикальную концентрацию многих белков, включая: кортактин (Cortactin), филамин А (Filamin A), фосфотирозиназы, динамин 2, интегральные протеины, а также протеолитические ферменты, способствующих процессу клеточной миграции через деградацию экстрацеллюлярного матрикса. Формирование псевдоподий также находится под контролем ГТФазы CDC42 и может контролироваться/регулироваться белком FGD1 через N-WASP/Arp2/3 комплекс. Активация CDC42, в свою очередь, запускает каскадный механизм, направленный на изменение локальной динамики актиновых филаментов в субкортикальной зоне опухолевых клеток с формированием таких выростов на плазматической мембране (рис. 1). Псевдоподии определяют направленное движение опухолевых клеток, разрушение матрикса, что способствует инвазии клеток в сосудистое русло и, как следствие, метастазированию опухоли [9, 11, 13]. С другой стороны, белок FGD1 способствует ангиогенезу через активацию TGF-β сигнального пути [1].
Экспериментальные данные in vitro, полученные с использованием линии опухолевых клеток меланомы (А375ММ), показали, что формирующиеся на поверхности клеток инвадоподии являются инструментом высокой инвазивности опухоли и локального накопления белка FGD1 в этих структурах. Получены новые данные о степени деградации внеклеточного матрикса при транзиторной экспрессии рекомбинантных белков FGD1 с различными биохимическими свойствами. Использованные в исследовании мутанты со свойствами конститутивно «активного» и «неактивного» рекомбинантного белка показали разную степень разрушения внеклеточного матрикса в экспериментальных условиях. При этом экспрессия доминантного позитивного мутанта способствовала выраженной деградации внеклеточного матрикса. Интересно, что субкортикальное накопление белка FGD1 предшествует формированию псевдоподий и концентрации F-актина в этих участках. По-видимому, этот процесс локально регулируется по оси FGD1/CDC42 без участия другого прямого эффектора FGD1 – Cortactin. При экспрессии в клетках биохимически неактивного мутанта (в котором отсутствует участок DH, ответственный за активацию ГТФазы СDC42) или экспериментах с нокаутом FGD1 гена отмечалось достоверное снижение показателей деградации экстрацеллюлярного матрикса до 60 и 80 % в сопоставлении с контрольными образцами соответственно. Полученные данные показывают, что локальная концентрация белка FGD1 в участках деградации внеклеточного матрикса с формированием таких инструментов инвазии, как псевдоподии, носит транзиторный характер и коррелирует с его функциональной активностью [2, 13]. Белок FGD1 может стимулировать реорганизацию актинового цитоскелета и в эндотелиальных клетках. Было установлено, что оверэкспрессия белка FGD1 в покоящихся клетках линии Swiss 3T3 приводила к формированию микровыростов на цитоплазматической мембране, и этот эффект ингибировался экспрессией неактивного белка CDC42 [1, 2]. Полученные данные показали, что описанный специфический эффект белка FGD1 на актиновый цитоскелет с формированием цитоплазматических выростов опосредуется через свой основной эффектор CDC42 и является кортактин (Cortactin)-независимым путем передачи сигнала [13]. С другой стороны, белок FGD1 непосредственно взаимодействует с Cortactin, что обеспечивает его субкортикальную концентрацию. Нельзя исключить, что локальная регуляция динамики актина с формированием микровыростов и псевдоподий может регулироваться белком FGD1 с использованием 2 независимых механизмов – FGD1/CDC42 и FGD1/Cortactin [1, 2]. Таким образом, активация PI3K/AKT сигнального пути в сочетании с мутациями гена PTEN, оверэкспрессией белка FGD1 может способствовать клональной эволюции опухолевых клеток меланомы с развитием отдаленных метастазов [14, 15].
Гепатоцеллюлярная карцинома
Гепатоцеллюлярная карцинома (ГЦР) является одной из наиболее частых (до 80 % первичных опухолей печени) и агрессивных опухолей с неблагоприятным прогнозом [16]. Показатели 5-летней выживаемости при ГЦР поздних стадий не превышают 2 %. Болезнь часто протекает бессимптомно и нередко поздно диагностируется. Показано увеличение экспрессии белка FGD1 в опухолевых клетках ГЦР в 3,64 раза по сравнению с контролем. Более того, пациенты с высоким уровнем экспрессии белка FGD1 имели худший прогноз и низкие показатели выживаемости. Исследование культуры опухолевых клеток гепатоцеллюлярной карциномы (Нер3В) выявило увеличение показателей клеточной пролиферации, скорости клеточной миграции, подвижности клеток и ингибирование апоптоза в условиях оверэкспрессии белка FGD1. На опухолевых клетках линии Bel-7404 определено достоверное снижение количества и объема опухолевой ткани в исследованиях, проведенных на мышах, а также показателей аутофагии и митохондриальной дисфункции в условиях ингибирования активности белка FGD1 [16, 17]. Онкогенные свойства белка
FGD1 в ГЦР могут отчасти реализовываться через свой основной эффектор CDC42. Известно, что CDC42 может увеличивать активность PI3К, связываясь с субъединицей р85, инициируя опухолевый рост и метастазирование [16].
Рак щитовидной железы
Папиллярная карцинома щитовидной железы является наиболее частым гистологическим типом карцином с высоким риском метастазирования и низкими показателями 5-летней выживаемости. Известно, что риск развития папиллярной карциномы щитовидной железы ассоциирован с мутацией гена BRAF . В клетках папиллярного рака щитовидной железы, вызванной BRAF мутацией (V600E), отмечалось гипометилирование гена FGD1 и, как следствие, его оверэкспрессия. В другом исследовании мутационный анализ гена FGD1 в опухолях папиллярного рака щитовидной железы выявил две редко встречающиеся SPN (single nucleotide polymorphism) мутации – T2091C и P712P. Таким образом, в условиях нарушения метилирования гена FGD1 или его промотора мутация BRAF может способствовать метастазированию опухоли через активацию FGD1/CDC42-зависимого сигнального пути [2, 18].
Остеогенная саркома
Остеогенная саркома является редкой опухолью костей и чаще встречается в раннем детском и подростковом возрасте. Агрессивность, раннее метастазирование, тяжелое и рецидивирующее течение, низкая 5-летняя выживаемость характерны для остеогенной саркомы высокой степени злокачественности. При высокодифференцированных опухолях 5-летняя выживаемость при комбинированном лечении может достигать 70 %. Показано значимое увеличение экспрессии FGD1 белка в клетках остеогенной саркомы по сравнению с контрольными и неопухолевыми образцами, где экспрессия FGD1 протеина выражена слабо и практически не выявляется [19]. Высокий уровень нестабильности генома и активация онкогенных путей, таких как PI3К/AKT, были выявлены в клетках остеогенной саркомы. Активация этого сигнального пути стимулирует клеточную пролиферацию, апоптоз, клеточную миграцию, инвазию и резистентность к химиотерапии. Скрининг по поиску новых кандидатов (таргетных белков) для лечения остеогенной саркомы, наряду с уже известными ингибиторами АКТ и mTOR сигнального пути, позволил идентифицировать PTEN (phosphatase and tensin homology gene), который является супрессором опухолевого роста путем модулирования метаболизма опухолевых клеток, пролиферации и метастазирования [20]. Дисфункция PTEN играет ведущую роль в развитии остеогенной саркомы. PTEN оказывает ингибирующий (блокирующий) эффект на PI3К/AKT и TNF/NF-kB сигнальные пути, что, в свою очередь, снижает экспрессию PDL-1 (programmed death-ligend 1, cluster differenciation 274, CD274), важнейшего фактора противоопухолевого иммунного ответа [19]. В экспериментах на опухолевых клетках линии U-2OS и MG63 (остеогенной саркомы) выявлено ингибирующее влияние белка PTEN на интенсивность опухолевого роста и инвазию клеток остеогенной саркомы. При этом низкий уровень экспрессии и/или мутации гена PTEN в остеогенной саркоме коррелирует с ее агрессивностью. В экспериментах in vitro получены новые данные о прямом взаимодействии белков FGD1 и PTEN. Это взаимодействие опосредовано через PRD домен белка FGD1 и оказывает ингибирующий эффект на PTEN. Снижение активности PTEN приводит к активации PI3К/AKT сигнального пути и амплификации PDL-1. Более того, нокаут гена FGD1 с использованием специфического shRNA в комбинации с PD-1 блокирующей терапией в клетках остеогенной саркомы, инъецированных мышам под кожу, показал значимое уменьшение размеров опухоли и увеличение выживаемости экспериментальных животных. Таким образом, использование «таргетной» анти-FGD1 терапии в сочетании с PD-1 блокирующей иммунотерапией может быть клинически перспективным направлением в лечении больных остеогенной саркомой. Более того, такая терапия может существенно улучшить показатели выживаемости и безреци-дивного периода.
Таким образом, использование программного обеспечения GEPIA web tool выявило высокий уровень ко-экспрессии mRNA FGD1 и mRNA PTEN в таких различных типах злокачественных опухолей, как остеогенная саркома, рак предстательной железы, рак поджелудочной железы, плоскоклеточная карцинома пищевода, рак мочевого пузыря и меланомы кожи [19]. Полученные результаты показывают, что белок FGD1 может регулировать иммунный ответ по оси передачи сигнала PTEN/PDL-1, что, возможно, происходит во всех указанных типах злокачественных опухолей и дает исследователям широкие возможности по детальному изучению этого сигнального пути и использованию анти PD-1 терапии в сочетании с химиотерапией по базовым протоколам.
Другие опухоли
Оверэкспрессия белка FGD1 в опухоли может быть следствием соматических мутаций и/или гипометилирования гена FGD1. Секвенирование экзома образцов метастазов рака предстательной железы (РПЖ) показало увеличение количества копий гена FGD1 в более чем 28 % изученных образцов [2, 21]. Нельзя исключить, что взаимодействие между FGD1 и PTEN, наряду с часто выявляющимися мутациями гена PTEN, может определять плохой исход и высокую метастатическую активность РПЖ [19, 21, 22]. Аналогичное исследование, проведенное на материале первичных опухолей молочной железы, выявило нарушение метилирования промотора гена FGD1 в 97 % опухолевых клеток на поздней стадии заболевания. При этом гипометилирование может приводить к оверэкспресии белка FGD1 и активации CDC42-сигнального пути, что обеспечивает формирование инвазивного фенотипа и усиливает клеточную миграцию [23, 24].
Иммуногистохимическое исследование образцов опухолей при РПЖ и протоковой карциноме молочной железы также показало высокий уровень экспрессии белка FGD1, при этом интенсивность окрашивания увеличивалась с нарастанием индекса Глисона ацинарной карциномы простаты и степени анаплазии рака молочной железы (РМЖ) [13]. Исследование генома 46 опухолей молочной железы не выявило каких-либо соматических мутаций гена FGD1 на ранних стадиях. Это согласуется с гипотезой о том, что оверэкспрессия белка FGD1 на поздних стадиях и более инвазивных формах РМЖ может быть ассоциирована с высоким риском метастазирования и плохим прогнозом [13, 23]. Один из механизмов опухолевой инвазии РМЖ может быть связан с появлением клеточных ин-вадоподий, которые формируются при активации субкортикального Cortactin. В экспериментах с ингибированием Cortactin специфическими siRNA отмечается блокирование периваскулярной опухолевой инвазии. Интересно, что ингибирование Src (нерецепторные тирозинкиназы) также подавляет формирование инвадоподий и снижает риск метастазирования [25–27]. Filamin A является одним из важных факторов, связывающим актиновые филаменты в трехмерные динамические структуры, что необходимо для направленного движения клеток. Исследования показали, что, как и FGD1, белок Filamin A может накапливаться на лидирующем крае мигрирующих клеток и необходим для формирования ламелоподий. Высокая экспрессия Filamin A выявлена при тройном негативном РМЖ, что показывает его возможную роль в метастазировании [28, 29].
Альтернативный miRNA сплайсинг может быть нарушен в злокачественных опухолях, что приводит к появлению аберрантных сплайс вариантов FGD1 (SVs). Известно, что в светлоклеточных карциномах почки геномные мутации встречаются только в гене VHL (болезнь Гиппеля–Линдау), поэтому выявление аберрантных сплайс вариантов (SVs) поможет раскрыть новые механизмы прогрессирования. Учитывая предполагаемую связь между метилированием ДНК и аберрантным сплайсингом в злокачественных опухолях, проведенное исследование выявило гиперэкспрессию аберрантного FGD1 (SVs) в светлоклеточной карциноме почки, что ассоциируется с плохим исходом [30].
Рак толстой кишки занимает одно из лидирующих мест по заболеваемости и смертности. Неблагоприятные исходы заболевания могут быть связаны с опухолевой фенотипической и молекулярной гетерогенностью, генетическими изменениями, микроокружением опухоли. Внутриопухолевая гетерогенность имеет важное значение для прогноза и оценки терапевтической резистентности. Среди факторов прогноза наиболее значимым является выявление метастазов в регионарных лимфатических узлах. Другие молекулярно-генетические факторы, такие как экспрессия раково-эмбрионального антигена, мутации KRAS/BRAF/MSI, не имеют прогностического значения и в большей степени определяют чувствительность к терапии и выбору тактики лечения. Y. Peng et al. разработана панель из 6 предиктивных маркеров, выявление которых определяет выживаемость пациентов с аденокарциномой ободочной кишки. Прогностическая панель включала в себя 6 генов (TMEM88, HOXB2, FGD1, TOGARAM1, ARHGDIB, CD40), регулируемых метилированием. Отмечены высокий риск прогрессирования и низкие показатели выживаемости при наличии метилирования ДНК промоторов указанных 6 генов, что определялось значительным риском метастазирования, ангиогенезом и иммунным ответом. Прогностическое значение выявленных 6 генов является фактором, не зависимым от выраженности лимфогенного метастазирования, и может быть использовано для оценки прогноза выживаемости пациентов с карциномой ободочной кишки [31].
Заключение
Изучение механизмов прогрессирования и метастазирования злокачественных опухолей является важной современной проблемой онкоморфологии. Анализ данных литературы показал, что экспрессия белка FGD1 возрастает при прогрессировании меланомы кожи, гепатоцеллюлярной карциномы, рака молочной железы и остеогенной саркомы, что может быть использовано в качестве перспективной мишени при терапии в сочетании с таргетной анти-PD-1 по базовым протоколам. Дальнейшее изучение внутриклеточного механизма регуляторной роли белка FGD1 в динамике актинового цитоскелета и формировании псевдоподий в опухолевых клетках открывает возможности в разработке новых терапевтических подходов и снижения риска метастазирования путем генетического или фармакологического ингибирования формирования псевдоподий как инструмента опухолевой инвазии. Кроме того, изучение генетических болезней на примере синдрома Аарскога–Скотта позволяет расширить представления о функционировании генов и белков при разных патологических состояниях, что закладывает основы для изучения сложных сигнальных путей, помогая в поиске таргетных молекул для лечения не только орфанных болезней, но и злокачественных опухолей с высоким метастатическим потенциалом.
