
Тест-система SNP-РПЖ: аллель-специфическая ПЦР в реальном времени для генотипирования маркеров риска рака предстательной железы
Журнал: Саратовский научно-медицинский журнал @ssmj
Рубрика: Урология и андрология
Статья в выпуске: 3 т.22, 2026 года.
Бесплатный доступ
Цель: разработать прототип аллель-специфической полимеразной цепной реакции (ПЦР) в реальном времени для генотипирования 4 однонуклеотидных полиморфизмов, ассоциированных с риском рака предстательной железы, и оценить его лабораторные характеристики. Материал и методы. Синтезированы 12 олигонуклеотидов: 4 универсальных прямых и 8 аллель-специфических обратных праймеров. Контрольную серию из 12 препаратов геномной дезоксирибонуклеиновой кислоты верифицировали секвенированием по Сэнгеру. Пилотные реакции оценивали по пороговому циклу, форме кривой, температуре плавления и электрофорезу. Расширенную апробацию 3 локусов выполнили на 154 образцах. Результаты. Секвенирование подтвердило 10 из 12 архивных генотипов ПЦР с последующим анализом полиморфизма длин рестрикционных фрагментов. Пилотные характеристики были локусзависимыми; работа по компоненту HNF1B продолжается. В расширенной серии заключение получено для CASC17 в 154/154, CASC8 в 154/154 и CCAT2 в 153/154 исследований; полный трехлокусный профиль сформирован у 153/154 образцов (99,35%; 95% доверительный интервал 96,44–99,98; p=0,0034 относительно рабочего уровня 95%). Генотипы CASC17 и CCAT2 согласуются с равновесием Харди–Вайнберга; для CASC8 выявлено значимое отклонение (p=0,0008). Заключение. В расширенной серии 3 из 4 компонентов прототипа обеспечили получение интерпретируемого результата генотипирования в 99,78% исследований. Для завершения аналитической оценки тест-системы необходимы секвенционная верификация, оценка повторяемости и воспроизводимости.
Короткий адрес: https://sciup.org/149152396
IDS: 149152396 | УДК: 616.65-006.6-07:577.21 | DOI: 10.15275/ssmj2203327
SNPPCa test system: Allele-specific real-time PCR for genotyping prostate cancer risk markers
Objective: to develop a prototype allele-specific real-time polymerase chain reaction (PCR) assay for genotyping four single nucleotide polymorphisms (SNPs) associated with prostate cancer risk and to evaluate its performance. Material and methods. Twelve oligonucleotides were synthesized: four universal forward and eight allele-specific reverse primers. A control series of 12 genomic deoxyribonucleic acid samples was verified by Sanger sequencing. Pilot reactions were assessed by quantification cycle, curve morphology, melting temperature and electrophoresis. Three loci were evaluated in an expanded series of 154 samples. Results. Sanger sequencing confirmed 10 of 12 archived genotypes obtained by PCR followed by restriction fragment length polymorphism analysis. Pilot performance was locus-dependent; work on the HNF1B component is ongoing. In the expanded series, a genotype call was obtained in 154/154 tests for CASC17, 154/154 for CASC8 and 153/154 for CCAT2; a complete three-locus profile was obtained for 153/154 samples (99.35%; 95% confidence interval 96.44–99.98; p=0.0034 against the working level of 95%). CASC17 and CCAT2 genotype distributions were consistent with Hardy–Weinberg equilibrium; CASC8 showed a significant deviation (p=0.0008). Conclusion. In the expanded series, three of the four prototype components yielded interpretable genotyping results in 99.78% of assays. Completion of the analytical evaluation of the test system requires sequencing-based verification and assessment of repeatability and reproducibility.
Текст научной статьи Тест-система SNP-РПЖ: аллель-специфическая ПЦР в реальном времени для генотипирования маркеров риска рака предстательной железы
EDN: GSCRFR Original article
Введение. Рак предстательной железы (РПЖ) занимает существенное место в структуре онкологической заболеваемости мужского населения России [1]. Наследственная предрасположенность к заболеванию имеет полигенную природу: в крупнейшем в настоящее время трансэтническом полногеномном исследовании ассоциаций число независимо связанных с риском вариантов достигло 269 [2]. Отсюда следует практический вывод для интерпретации любого отдельного маркера: каждый из них отражает только часть наследуемого риска и не может рассматриваться как самостоятельный диагностический признак опухоли.
В данную разработку включено 4 однонуклеотидных полиморфизма ( single nucleotide polymorphism — SNP). HNF1B (HNF1 homeobox B, гомеобокс-содер-жащий транскрипционный фактор HNF1B) rs4430796 расположен в области 17q12; его связь с риском РПЖ подтверждена объединенными генетическими исследованиями [3]. Полиморфизм rs1859962 области 17q24 в используемой рабочей номенклатуре обозначен как CASC17 (cancer susceptibility 17, локус восприимчивости к раку 17); ассоциация этого варианта с заболеванием оценивалась в систематическом обзоре и метаанализе [4]. CASC8 (cancer susceptibility 8) rs1447295 и CCAT2 (colon cancer associated transcript 2, транскрипт колоректального рака 2) rs6983267 расположены в области 8q24, содержащей несколько независимых локусов наследственной восприимчивости к РПЖ [5]. Для вариантов 8q24 описана популяционная неоднородность частот и величины эффекта, что необходимо учитывать при построении генетических панелей риска [2, 6].
Эти 4 локуса ранее исследовались нашим коллективом методом полимеразной цепной реакции (ПЦР) с последующим анализом полиморфизма длин рестрикционных фрагментов (ПЦР-ПДРФ) [7]; соответствующая комбинация маркеров включена в патентованный способ прогнозирования риска [8]. В настоящей работе результаты ПЦР-ПДРФ использованы только для межметодного сопоставления, тогда как новые данные относятся к секвенционной проверке контрольных образцов, разработке аллель-специфической ПЦР в реальном времени (ПЦР-РВ) и ее лабораторной апробации.
Аллель-специфическая ПЦР переводит генотипирование в инструментально регистрируемый формат, однако качество аллельной дискриминации зависит от последовательности праймеров, стабильности их 3′-конца, температуры отжига, состава реакционной смеси и особенностей конкретного локуса [9]. Действующие рекомендации MIQE 2.0 (Minimum Information for Publication of Quantitative Real-Time PCR Experiments — минимальные требования к публикации данных количественной ПЦР-РВ) требуют прозрачного описания пробоподготовки, контрольных реакций, правил определения порогового цикла, технических повторов и воспроизводимости [10]. Именно поэтому на этапе разработки операционную работоспособность целесообразно оценивать отдельно от аналитической правильности и клинической валидности.
Рабочая гипотеза состояла в том, что перевод 4 выбранных маркеров в формат аллель-специфиче-ской ПЦР-РВ позволит получать инструментально
интерпретируемое генотипическое заключение, но аналитические характеристики реакции будут различаться между локусами и потребуют локус-спец-ифических критериев оценки.
Цель — разработать прототип аллель-специфи-ческой ПЦР-РВ для генотипирования 4 однонуклеотидных полиморфизмов, ассоциированных с риском РПЖ, и оценить его лабораторные характеристики.
Материал и методы. Дизайн и исследуемый материал. Исследование имело последовательный лабораторно-технологический дизайн и включало материалы 2025–2026 гг., полученные в рамках государственного задания по разработке медицинского изделия для диагностики in vitro «Тест-система SNP-РПЖ». Единицей наблюдения в контрольной серии был препарат геномной ДНК; в пилотной серии — отдельная аллель-специфическая реакция либо парная постановка WT/MT (реакций с праймер-ными смесями для референсного и альтернативного аллеля соответственно; подробнее см. подраздел «Аллель-специфическая полимеразная цепная реакция в реальном времени») одного образца; в расширенной апробации — генотипирование 1 локуса в 1 препарате ДНК. Для интегрального анализа 3 масштабированных компонентов независимой единицей считали образец.
Контрольная серия включала 12 ранее геноти-пированных препаратов ДНК — по 3 для каждого локуса; по архивной ПЦР-ПДРФ они считались гетерозиготными. Расширенная серия включала все 154 доступных препарата ДНК, для которых выполнялась постановка 3 масштабированных локусов: 86 от пациентов с РПЖ и 68 – от участников сравнительной группы. Технически невалидный результат из знаменателя не исключали. Отбор по клиническим характеристикам для настоящего технического анализа не проводили; стадия заболевания, концентрация про-стат-специфического антигена и морфологические характеристики опухоли в данном исследовании не сравнивали. Компонент HNF1B в расширенную апробацию не переносился; его оптимизация и анализ продолжается вне рамок настоящей публикации и станет предметом отдельного сообщения.
Исследование проведено в соответствии с принципами Хельсинкской декларации, стандарта Надлежащей клинической и практики (Good Clinical Practice), требованиями законодательства Российской Федерации в сфере охраны здоровья граждан, защиты персональных данных, врачебной тайны и обращения с генетическими данными человека; одобрено локальным этическим комитетом ФГБОУ ВО «Саратовский государственный медицинский университет им. В.И. Разумовского» Минздрава России (протокол №7 от 14.01.2025).
Все участники до включения подписали информированное добровольное согласие на участие, забор и использование биологического материала, молекулярно-генетическое исследование, обработку персональных данных и сведений о состоянии здоровья, а также публикацию обезличенных и агрегированных результатов. Соблюдены требования ст. 5, 10 Федерального закона от 27.07.2006 №152-ФЗ «О персональных данных». Сведения, составляющие врачебную тайну, в индивидуализированной форме не раскрывались и использовались в соответствии с ч. 3 ст. 13 Федерального закона от 21.11.2011 № 323-ФЗ «Об основах охраны здоровья граждан в Российской Федерации». Согласно ст. 13.1 и 13.2 Федерального закона от 05.07.1996 № 86-ФЗ «О государственном регулировании в области генно-инженерной деятельности» в редакции Федерального закона от 20.02.2026 № 43-ФЗ, индивидуальные генетические данные участников — результаты анализа, генотипы и иные идентифицирующие сведения — не публиковались, не размещались в открытом доступе и не передавались иностранным лицам и государствам. В публикации представлены только агрегированные обезличенные результаты статистического анализа.
Выбор мишеней и разработка праймеров. Исследовали HNF1B rs4430796, CASC17 rs1859962, CASC8 rs1447295 и CCAT2 rs6983267. Аллельные пары приведены в рабочей ориентации праймер-ных систем и не означают присвоения статуса REF (reference allele, референсный аллель) или ALT (alternative allele, альтернативный аллель) в открытой базе данных однонуклеотидных полиморфизмов dbSNP (Database of Single Nucleotide Polymorphisms). Референсные последовательности получали из открытой базы GenBank Национального центра биотехнологической информации США (National Center for Biotechnology Information, NCBI). Праймеры проектировали в программах для дизайна олигонуклеотидов Primer3Plus и OligoCalc; специфичность проверяли алгоритмом поиска локального сходства последовательностей BLAST (Basic Local Alignment Search Tool), температуру плавления и вторичные структуры рассчитывали в программе OligoAnalyzer 3.1 (Integrated DNA Technologies, США).
Для каждого локуса разработали 1 универсальный прямой и 2 аллель-специфических обратных праймера; всего синтезировано 12 олигонуклеотидов (табл. 1). Последовательности и рабочие концентрации праймеров входят в конфиденциальную охраняемую техническую документацию изделия и не раскрываются: комбинация маркеров защищена патентом РФ RU 2827104 C1 [8].
Синтез олигонуклеотидов и подготовка ДНК. Немодифицированные олигонуклеотиды синтезировали фосфорамидитным методом на твердофазном носителе из пористого стекла с контролируемым размером пор (controlled-pore glass, CPG-500) 500 Å на автоматическом ДНК-синтезаторе Polygen 12 (PolyGen GmbH, Германия). От носителя продукт отделяли в 37%-м водном растворе аммиака при температуре 55⁰C в течение 24 ч; после обессоливания и переосаждения очищали денатурирующим электрофорезом в 20%-м полиакриламидном геле. Паспортная чистота превышала 98%.
Венозную кровь до оперативного вмешательства забирали в пробирки объемом 4 мл с трикалиевой солью этилендиаминтетрауксусной кислоты (K3-EDTA). Не позднее 24 ч материал распределяли по 500 мкл и хранили при температуре -20⁰C. Геномную ДНК выделяли набором D-blood (ООО «Биолаб-микс», Россия); концентрацию и оптическую чистоту определяли на спектрофотометре NanoDrop OneC (Thermo Fisher Scientific, США) при 230, 260 и 280 нм. ДНК хранили при температуре -20⁰C. В пилотных постановках использовали 10 нг/мкл; предел обнаружения не определяли.
Секвенционная проверка контрольной серии. Для секвенирования амплифицировали фрагменты длиной 453 пар нуклеотидов (п.н.) для HNF1B , 317 п.н. для CASC17 , 350 п.н. для CASC8 и 438 п.н. для CCAT2 . Определение последовательности методом Сэнгера выполнено в ООО «Гентерра» (Россия); полученные последовательности сопоставляли с референсными последовательностями GenBank. Секвенирование использовали как независимый метод проверки генотипов контрольных образцов.
Аллель-специфическая полимеразная цепная реакция в реальном времени. Для каждого локуса выполняли 2 параллельные аллель-специфические ПЦР с интеркалирующим флуоресцентным красителем SYBR Green I (Thermo Fisher Scientific, США). WT (wild type, «дикий тип») обозначал праймерную смесь для преимущественной амплификации референсного аллеля, MT (mutant type, «мутантный тип») — альтернативного; как обозначения «нормального»и «мутантного» генотипа эти термины не использовали. Реакция объемом 20 мкл содержала 5 мкл ДНК (10 нг/мкл), 10 мкл 2× HS-qSYBR-blue (ООО «Биолаб-микс», Россия) и соответствующие праймеры. Каждую реакцию ставили в 3 технических повторах.
Амплификацию выполняли на амплификаторе для количественной ПЦР-РВ LightCycler 96 (Roche, Швейцария): 95⁰C — 2 мин; затем 45 циклов 95⁰C — 10с, 60⁰C — 10с, 72⁰C — 15с с регистрацией флуоресценции по каналу FAM (6-карбоксифлуоресцеин). Плавление продуктов проводили от 65 до 95⁰C с шагом 1⁰C каждые 10 с. Пороговый цикл количественной амплификации (quantification cycle, Cq) определяли по пересечению кривой с пороговым уровнем, температуру плавления (melting temperature, Tm ) — по максимуму соответствующего пика. ΔCq обозначал разность пороговых циклов; в пилотной серии анализировали |ΔCq| между WT и MT одного образца.
На пилотном этапе оценивали наличие сигмоидальной амплификационной кривой с различимой экспоненциальной фазой и выходом на плато; этот признак использовали как исследовательскую характеристику, а не формализованный критерий валидации. В расширенной базе сохранились итоговые генотипические заключения, но не полный массив Cq 3 технических повторов, поэтому внутри-и межсерийную вариабельность не рассчитывали.
Электрофоретическая оценка продуктов. ПЦР-продукты разделяли горизонтальным электрофорезом в 2,5% агарозном геле в однократном трис-ацетат-ЭДТА-буфере (TAE, Tris-acetate-EDTA) при 130 В в течение 90 мин. Использовали
Основные характеристики праймерных систем
Таблица 1
|
Локус |
SNP |
Аллельная пара* |
Число праймеров |
Длина праймеров, нт |
Чистота, % |
Расчетная длина продукта, п.н. |
|
HNF1B |
rs4430796 |
C/T |
3 |
20–22 |
>98 |
123 |
|
CASC17 |
rs1859962 |
A/C |
3 |
20–23 |
>98 |
115 |
|
CASC8 |
rs1447295 |
G/T |
3 |
24 |
>98 |
92 |
|
CCAT2 |
rs6983267 |
G/T |
3 |
20–25 |
>98 |
55 |
Примечание. * Аллельные пары указаны в рабочей ориентации праймерных систем. нт — нуклеотидов; п.н. — пар нуклеотидов.
маркер молекулярных масс Step50 bp Plus (50–1500 п.н.), визуализацию выполняли на системе гель-документации BlueCube-300 (SERVA, Германия). Оценивали наличие продукта ожидаемой длины и дополнительных полос как признака возможной неспецифической амплификации.
Конечные точки и статистический анализ. Основной технической конечной точкой расширенной апробации была доля локус-уровневых исследований с валидным генотипическим заключением — однозначным двухаллельным заключением, зарегистрированным в первичной лабораторной базе после завершения рабочего цикла генотипирования. Показатель отражал операционную результативность — возможность получить интерпретируемое итоговое генотипическое заключение, но не аналитическую правильность. Рабочим исследовательским критерием принимали долю >95%; регуляторной характеристикой изделия этот порог не являлся.
Вторичные конечные точки: совпадение архивного генотипирования с секвенированием по Сэнгеру; выход пилотных реакций на плато и соответствие кривой принятому качественному критерию; Cq, Tm и |ΔCq|; наличие целевого ампликона и дополнительных электрофоретических полос; межметодная согласованность ПЦР-ПДРФ и ПЦР-РВ. Для CASC17, CASC8 и CCAT2 дополнительно определяли долю образцов с полным трехлокусным профилем и проверяли соответствие генотипов расширенной серии равновесию Харди–Вайнберга. ПЦР-ПДРФ референсным методом не считали.
Категориальные данные представляли абсолютными значениями и долями; для пропорций рассчитывали точные двусторонние 95% доверительные интервалы (ДИ) Клоппера–Пирсона. Межметодную согласованность оценивали долей точных совпадений и коэффициентом κ Коэна, интерпретируемым по шкале J.R. Landis и G.G. Koch [11]: ниже 0 – согласие хуже случайного, 0–0,20 — минимальное, 0,21– 0,40 — слабое, 0,41–0,60 — умеренное, 0,61–0,80 — существенное, выше 0,80 — почти полное. Cq, Tm и |ΔCq| в пилотной серии описывали медианой и диапазоном; параметрические сравнения и проверку нормальности не применяли, поскольку внутри локуса имелось лишь 2–4 независимых парных наблюдения из разных генотипических классов.
Соответствие распределения генотипов равновесию Харди–Вайнберга проверяли асимптотическим критерием χ2 с одной степенью свободы и точным критерием, основанным на переборе условного распределения числа гетерозигот при фиксированных частотах аллелей [12].
Рабочую гипотезу операционной результативности проверяли на уровне независимого образца. Для полного трехлокусного профиля, где π — истинная вероятность его получения, использовали H0: π≤0,95 против H1: π>0,95 и односторонний точный биномиальный критерий, α=0,05; приводили фактическое p и одностороннюю нижнюю 95% доверительную границу. Проверялась одна интегральная гипотеза, поэтому поправку на множественность не применяли; локус-специфические показатели оценивали описательно с двусторонними 95% ДИ.
Показатель 461/462 локус-уровневых заключений использовали только описательно: три локуса исследовали в одних и тех же 154 препаратах ДНК, и эти наблюдения статистически зависимы. Размер серии определялся доступным массивом завершенных исследований; априорный расчет выборки и ретроспективную мощность не выполняли, неопределенность оценок характеризовали ДИ.
Статистические расчеты выполняли в среде R версии 4.6.0 (R Core Team; RStudio Desktop 2025.09.2+418): точный биномиальный критерий и ДИ Клоппера–Пирсона — функциями пакета stats, тест на равновесие Харди–Вайнберга — пакетом HardyWeinberg 1.7.9, коэффициент κ Коэна — по формуле для таблицы сопряженности, визуализацию forest-plot — пакетами meta 8.3-0 и metafor 5.0-1.
Результаты. Компоненты прототипа и контрольная серия. Для 4 локусов синтезированы 12 олигонуклеотидов — 4 универсальных прямых и 8
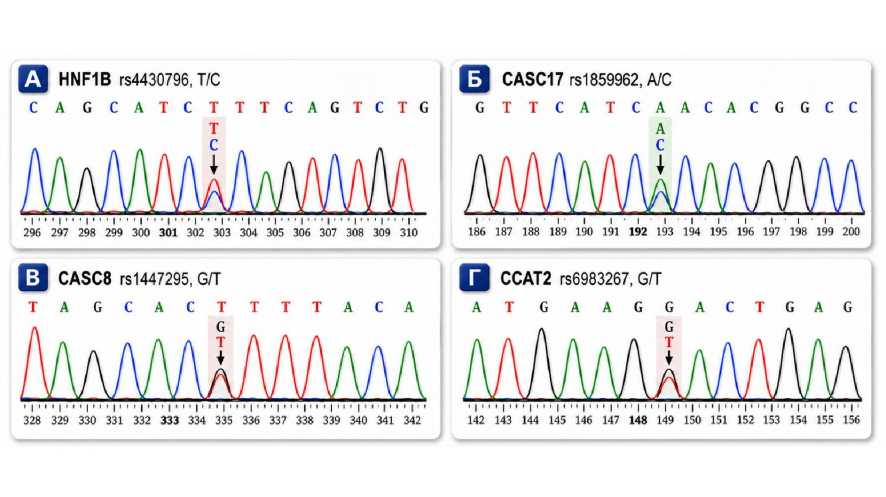
Рис. 1. Репрезентативные результаты секвенирования по Сэнгеру контрольных образцов для исследуемых однонуклеотидных полиморфизмов: А — HNF1B rs4430796, генотип T/C; Б — CASC17 rs1859962, генотип A/C; В — CASC8 rs1447295, генотип G/T; Г — CCAT2 rs6983267, генотип G/T. Стрелками обозначены исследуемые нуклеотидные позиции
аллель-специфических обратных праймеров. Расчетная длина продуктов составляла 123 п.н. для HNF1B , 115 п.н. для CASC17, 92 п.н. для CASC8 и 55 п.н. для CCAT2 (табл. 1). Из 12 препаратов, предварительно классифицированных ПЦР-ПДРФ как гетерозиготные, секвенирование подтвердило исходный генотип в 10 случаях: 83,3% (95% ДИ 51,6–97,9). Для HNF1B образец 0037 был переклассифицирован с CT на CC; для CASC17 образец 0126 – с AC на AA. По CASC8 и CCAT2 все 3 контрольных образца совпали с секвенированием (табл. 2).
Пилотная оценка 4 локусов. В реакции HNF1B ни одна из четырех записей не достигла принятого пилотного критерия полноценной кривой с выходом на плато, а дополнительные электрофоретические продукты выявлялись во всех четырех реакциях. Tm находилась в диапазоне 82-840C, медиана |ACq| составляла 4,5 цикла. По этой причине HNF1B не был перенесен в расширенную серию; работа по подбору условий амплификации и при необходимости перепроектированию праймеров для этого локуса продолжается и будет освещена отдельно. Для CASC17 выход на плато и кривая, соответствовавшая пилотному критерию, зарегистрированы в 5 из 8 реакций. Из 6 реакций с электрофоретическим контролем в 4 дополнительных полос не было. Tm составляла 79–82⁰C, медиана |ΔCq| — 10,5 цикла. Для CASC8 выход на плато получен в 7/8 реакций, качественный критерий кривой — в 6/8; при этом только 2/6 элек-трофоретически оцененных реакций не содержали дополнительных полос. Tm составляла 76-80OC, медиана |ΔCq| — 3,5 цикла. Для CCAT2 все 6 пилотных реакций достигли плато и соответствовали принятому критерию формы кривой; дополнительные полосы отсутствовали в 6/6 электрофореграммах. Tm находилась в диапазоне 77-790C. Медиана |ACq| составляла 1,0 цикл, диапазон — 1–3 цикла (табл. 3; рис. 2, 3).
Межметодное сопоставление. Точное совпадение ПЦР-ПДРФ с аллель-специфической ПЦР-РВ получено для HNF1B в 5 из 22 сопоставлений (22,7%; 95% ДИ 7,8–45,4; κ=-0,199), для CASC17 – в 1 из 20 (5,0%; 95% ДИ 0,1–24,9; κ=-0,310), для CASC8 – в 22 из 22 (100%; 95% ДИ 84,6–100; κ=1,000), для CCAT2 – в 16 из 21 (76,2%; 95% ДИ 52,8–91,8; κ=0,618). По шкале J.R. Landis и G.G. Koch [11] совпадение по HNF1B и CASC17 соответствует уровню хуже случайного, по CCAT2 – существенному, по CASC8 – почти полному. Эти показатели отражают межметодную согласованность и не являются оценкой диагностической точности новой реакции.
Расширенная лабораторная апробация. В расширенной серии по CASC17 итоговое генотипическое заключение получено в 154 из 154 исследований (100%; 95% ДИ 97,63–100), по CASC8 – также в 154 из 154 (100%; 95% ДИ 97,63–100), по CCAT2 – в 153 из 154 (99,35%; 95% ДИ 96,44-99,98). В лабораторной базе для 1 образца итоговое заключение CCAT2 отсутствовало; по сохранившимся данным
Таблица 2
Сопоставление архивной полимеразной цепной реакции с последующим анализом полиморфизма длин рестрикционных фрагментов и секвенирования по Сэнгеру в контрольной серии
|
№ |
Код образца |
Локус |
ПЦР-ПДРФ |
Сэнгер |
Результат |
|
1 |
0024 |
HNF1B rs4430796 |
CT |
CT |
Совпадение |
|
2 |
0037 |
HNF1B rs4430796 |
CT |
CC |
Расхождение |
|
3 |
0044 |
HNF1B rs4430796 |
CT |
CT |
Совпадение |
|
4 |
0101 |
CASC17 rs1859962 |
AC |
AC |
|
|
5 |
0108 |
CASC17 rs1859962 |
AC |
AC |
|
|
6 |
0126 |
CASC17 rs1859962 |
AC |
AA |
Расхождение |
|
7 |
0045 |
CASC8 rs1447295 |
GT |
GT |
Совпадение |
|
8 |
0049 |
CASC8 rs1447295 |
GT |
GT |
|
|
9 |
0060 |
CASC8 rs1447295 |
GT |
GT |
|
|
10 |
0024 |
CCAT2 rs6983267 |
GT |
GT |
|
|
11 |
0037 |
CCAT2 rs6983267 |
GT |
GT |
|
|
12 |
0044 |
CCAT2 rs6983267 |
GT |
GT |
Сводные характеристики пилотных реакций
Таблица 3
|
Локус |
Реакционные записи, n |
Выход на плато, n / N (%) |
Кривая по пилотному критерию, n/N (%) |
Tm , ⁰C |
Без дополнительных полос, n / N (%) |
|ΔCq|, медиана (диапазон) |
|
HNF1B |
4 |
0/4 (0,0) |
0/4 (0,0) |
82–84 |
0/4 (0,0) |
4,5 (1–8) |
|
CASC17 |
8 |
5/8 (62,5) |
5/8 (62,5) |
79–82 |
4/6 (66,7) |
10,5 (1–11) |
|
CASC8 |
8 |
7/8 (87,5) |
6/8 (75,0) |
76–80 |
2/6 (33,3) |
3,5 (2–7) |
|
CCAT2 |
6 |
6/6 (100) |
6/6 (100) |
77–79 |
6/6 (100) |
1,0 (1–3) |
Примечание. Здесь и далее в табл. 5: n — число реакций с наблюдаемым признаком; N — число реакций, для которых соответствующая оценка была доступна.
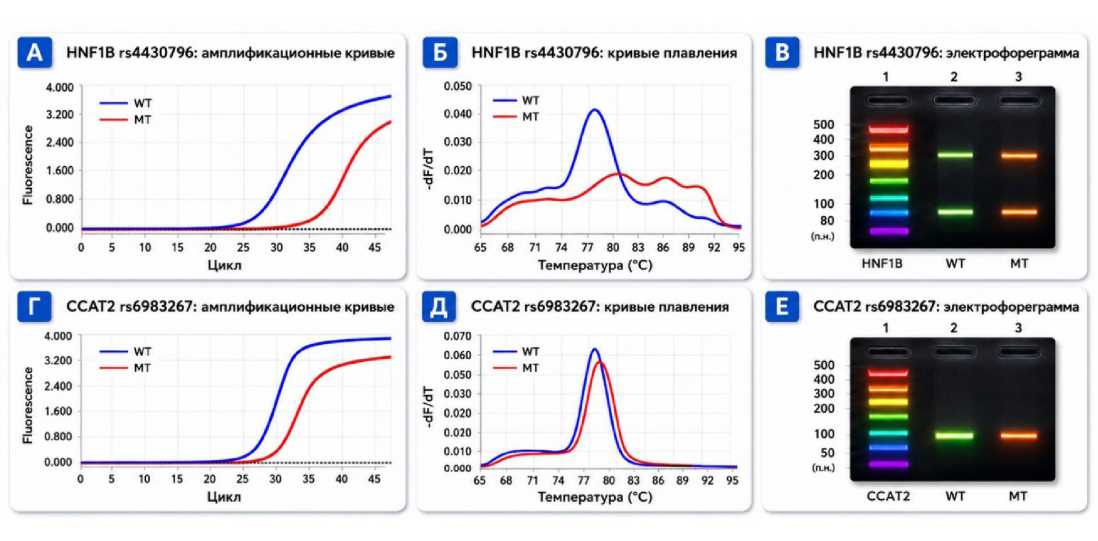
Рис. 2. Репрезентативные результаты пилотной постановки аллель-специфической полимеразной цепной реакции в реальном времени для HNF1B rs4430796 и CCAT2 rs6983267: А , Г — амплификационные кривые; Б , Д — кривые плавления; В , Е — электрофореграммы. Здесь и далее на рис. 3: WT и MT — технические обозначения праймерных смесей для преимущественной амплификации референсного и альтернативного аллелей соответственно.
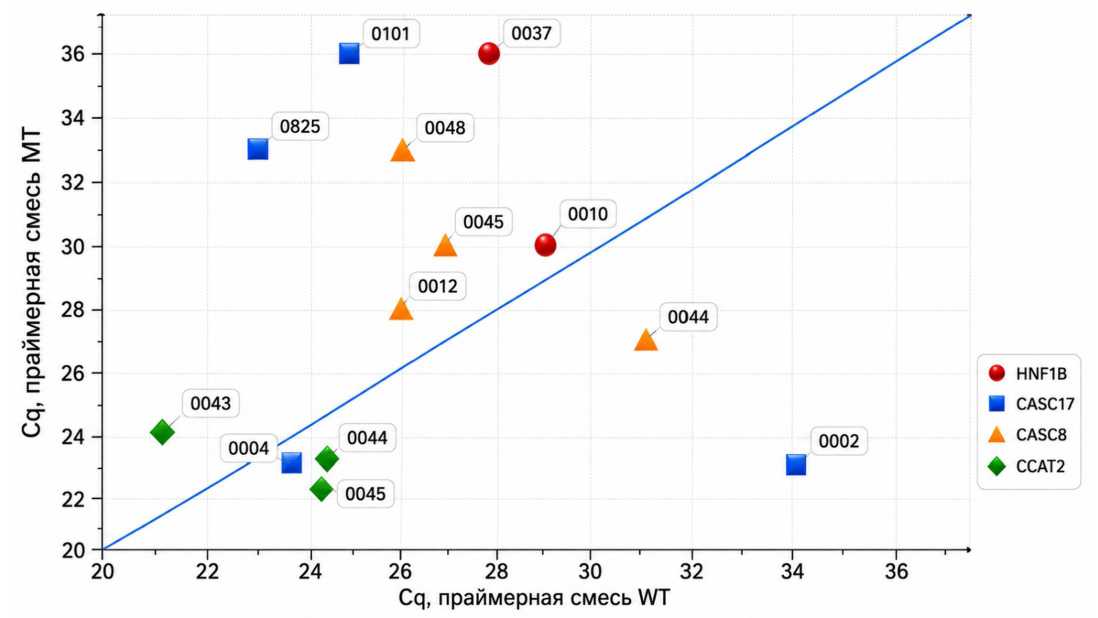
Рис. 3. Парные значения Cq в реакциях с праймерными смесями WT и MT при пилотной апробации. Диагональная линия соответствует равенству Cq в 2 параллельных аллель-специфических реакциях
Таблица 4
Точное совпадение результатов полимеразной цепной реакции с последующим анализом полиморфизма длин рестрикционных фрагментов и аллель-специфической полимеразной цепной реакции в реальном времени
|
Локус |
Сопоставления, n |
Совпадения, n |
Сходимость, % |
95% ДИ; κ Коэна |
|
HNF1B |
22 |
5 |
22,7 |
7,8–45,4; -0,199 |
|
CASC17 |
20 |
1 |
5,0 |
0,1–24,9; -0,310 |
|
CASC8 |
22 |
22 |
100,0 |
84,6–100,0; 1,000 |
|
CCAT2 |
21 |
16 |
76,2 |
52,8–91,8; 0,618 |
Примечание. ПЦР-ПДРФ характеризовали как сопоставляемый, а не референсный метод; показатели чувствительности и специфичности относительно ПЦР-ПДРФ, поэтому не рассчитывали.
техническую причину этого случая однозначно реконструировать не удалось.
Полный трехлокусный профиль CASC17+CASC8+CCAT2 сформирован у 153 из 154 образцов — 99,35% (двусторонний 95% ДИ 96,44– 99,98). При проверке H0: π≤0,95 против H1: π>0,95 односторонний точный биномиальный критерий ( x =153, n =154) дал p =0,0034; односторонняя нижняя 95% доверительная граница составила 96,96%. Таким образом, на уровне независимого образца операционная результативность 3 масштабированных компонентов статистически превышала принятый рабочий уровень 95%. На уровне отдельных локусов получено 461 итоговое заключение из 462 потенциальных (99,78%; двусторонний 95% ДИ 98,80–99,99); эта объединенная оценка использовалась только как описательная характеристика и не служила основанием для формального статистического вывода. Результаты представлены в табл. 5 и на рис. 4.
Проверка равновесия Харди–Вайнберга. Распределение генотипов CASC17 (AA 20, AC 70, CC 64; n=154) и CCAT2 (GG 34, GT 77, TT 42; n=153) не отличалось от ожидаемого при равновесии Харди– Вайнберга: асимптотический критерий хи-квадрат с одной степенью свободы дал χ²=0,016 (p=0,900) и χ²=0,013 (p=0,908) соответственно, точный критерий — p=0,863 и p=1,000. Для CASC8 (GG 92, GT 43, TT 19; n=154) выявлено значимое отклонение с дефицитом гетерозигот: наблюдалось 43 гетерозиготы при 59,7 ожидаемых, χ²=12,05 (p<0,001), точный критерий — p=0,001.
Обсуждение. Разработка 4 компонентов в едином формате аллель-специфической ПЦР-РВ выявила выраженные различия их аналитического поведения. При одинаковом принципе постановки реакции HNF1B , CASC17 , CASC8 и CCAT2 различались по форме амплификационных кривых, величине |ΔCq| и электрофоретическому профилю продуктов. Для аллель-специфической амплификации такая локусзависимость закономерна: эффективность различения аллелей определяется особенностями нуклеотидного окружения исследуемой позиции, взаимодействием 3′-конца праймера с матрицей, температурой отжига и вероятностью образования побочных продуктов [9]. Полученные результаты подтверждают исходную рабочую гипотезу о том, что единая архитектура реакции не исключает необходимости локус-специфической настройки критериев интерпретации.
Наиболее выраженные технические ограничения на пилотном этапе выявлены для HNF1B . Ни одна из четырех реакций не соответствовала принятому
Результаты расширенной лабораторной апробации
Таблица 5
|
Показатель |
Итоговые заключения, n / N |
Доля, % |
95% ДИ |
Распределение генотипов |
|
CASC17 |
154/154 |
100,00 |
97,63–100,00 |
AA 20; AC 70; CC 64 |
|
CASC8 |
154/154 |
100,00 |
97,63–100,00 |
GG 92; GT 43; TT 19 |
|
CCAT2 |
153/154 |
99,35 |
96,44–99,98 |
GG 34; GT 77; TT 42 |
|
Всего, локус-уровень |
461/462 |
99,78 |
98,80–99,99 |
– |
|
Полный профиль |
153/154 |
99,35 |
96,44–99,98 |
– |
Примечание. ДИ — точный 95% доверительный интервал Клоппера — Пирсона. Строка «Всего, локус-уровень» представляет описательную объединенную оценку и не использовалась для формального статистического тестирования из-за повторных измерений 3 локусов в одних и тех же образцах. Строка «Полный профиль» означает наличие итоговых заключений одновременно по CASC17 , CASC8 и CCAT2 .
Проверка равновесия Харди — Вайнберга в расширенной серии
Таблица 6
|
Локус |
Генотипы, n |
χ² (1 ст. св.*) |
p (асимптотический) |
p (точный) |
|
CASC17 |
AA 20; AC 70; CC 64 |
0,016 |
0,900 |
0,863 |
|
CASC8 |
GG 92; GT 43; TT 19 |
12,05 |
<0,001 |
0,001 |
|
CCAT2 |
GG 34; GT 77; TT 42 |
0,013 |
0,908 |
1,000 |
Примечание. χ² — критерий хи-квадрат с поправкой Йейтса не применяли (использован классический асимптотический критерий с одной степенью свободы*); точный критерий рассчитан методом Wigginton, Cutler, Abecasis.
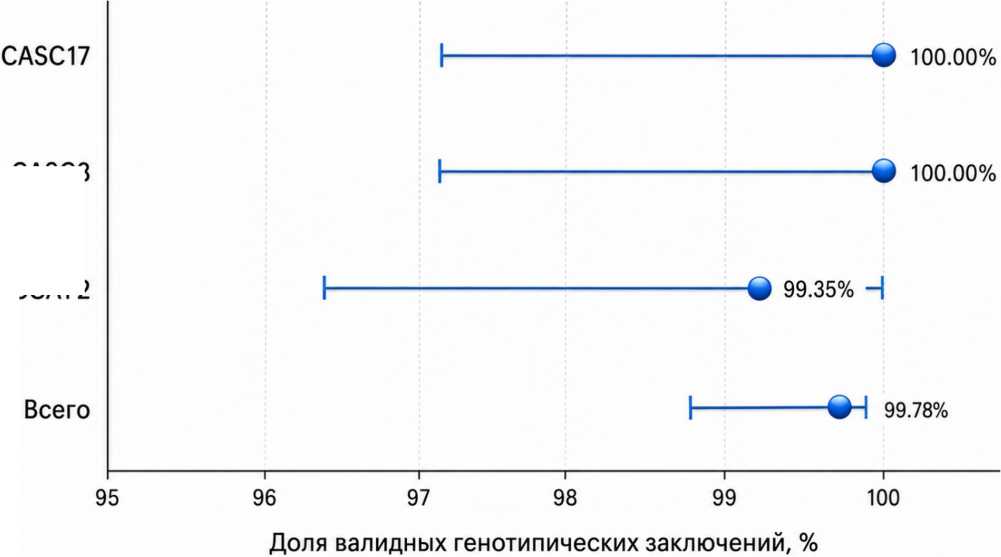
Рис. 4. Доля валидных генотипических заключений при расширенной лабораторной апробации тест-системы. Точки соответствуют фактической доле валидных результатов; горизонтальные интервалы — точным двусторонним 95% доверительным интервалам Клоппера — Пирсона. Для CASC17 получено 154 валидных результата из 154, для CASC8 – 154 из 154, для CCAT2 – 153 из 154; суммарно — 461 из 462 локус-уровневых исследований
CASC8
CCAT2
критерию полноценной амплификационной кривой с выходом на плато, а дополнительные электрофоретические продукты регистрировались во всех оцененных постановках. По этой причине компонент HNF1B не включен в расширенную серию. Этот результат характеризует конкретную конфигурацию праймеров и условия реакции, использованные в настоящем исследовании, но не ставит под сомнение выбор самого rs4430796 как генетического маркера. Основным нерешенным аналитическим вопросом для данного компонента остается неспецифическая амплификация.
Важное наблюдение получено еще на этапе формирования контрольной серии. Из 12 образцов, ранее классифицированных ПЦР-ПДРФ как гетерозиготные, секвенирование по Сэнгеру подтвердило первоначальный результат в 10 случаях. Так, 1 образец HNF1B переклассифицирован с CT на CC, 1 образец CASC17 - с AC на AA. Вследствие этого результаты ПЦР-ПДРФ в настоящей работе обоснованно использовались как сопоставляемые, но не как безусловно референсные. Это обстоятельство существенно при интерпретации низкой межметодной согласованности HNF1B и CASC17 : наблюдаемое расхождение не позволяет определить, какая доля несовпадений связана с архивным методом, а какая — с новой реакцией. Отрицательные значения κ Коэна у этих локусов свидетельствуют об отсутствии согласованности сверх ожидаемой при соответствующем распределении категорий [11], но сами по себе не раскрывают механизм расхождений.
Для CASC17 пилотный амплификационный профиль был лучше, чем для HNF1B : 5 из 8 реакций соответствовали принятому критерию формы кривой, а дополнительные полосы отсутствовали в 4 из 6 электрофоретически исследованных постановок. Кроме того, CASC17 характеризовался наибольшей медианой |ACq| — 10,5 цикла. Вместе с тем совпадение с архивной ПЦР-ПДРФ получено только в 1 из 20 сопоставлений, κ Коэна составила -0,31. Такое сочетание выраженного различия между 2 аллель-специфическими реакциями и крайне низкой межме-тодной согласованности показывает, что величина |ACq| сама по себе не может служить критерием правильности генотипирования. Для CASC17 наиболее существенной неопределенностью остается именно аналитическая правильность получаемого заключения.
Иная картина наблюдалась для CASC8. Все 22 доступных результата совпали с архивной ПЦР-ПДРФ, к Коэна составила 1,000, то есть наблюдалось полное межметодное согласие. В то же время только 2 из 6 электрофоретически оцененных реакций не содержали дополнительных полос. При использовании SYBR Green неспецифические продукты двуцепочечной ДНК также способны участвовать в формировании флуоресцентного сигнала [9]. Следовательно, совпадение результатов 2 способов генотипирования и специфичность самой амплификации характеризуют различные свойства аналитической системы; благоприятный результат по одному из этих показателей не устраняет необходимости оценки другого.
Дополнительной особенностью CASC8 стало отклонение распределения генотипов от равновесия Харди-Вайнберга. В расширенной серии наблюдались 92 генотипа GG, 43 GT и 19 TT; при ожидаемых 59,7 гетерозиготах фактически определены 43, а точный критерий дал значение p , равное 0,0008. Отклонение от равновесия Харди–Вайнберга может сопровождать ошибки генотипирования, однако не является специфическим признаком технической ошибки [12]. В настоящем исследовании интерпретация дополнительно осложняется структурой выборки: в общий анализ вошли пациенты с РПЖ и участники сравнительной группы. Варианты области 8q24 ассоциированы с риском РПЖ [5], причем для них описана популяционная неоднородность частот аллелей и величины эффектов [5, 6]. Вследствие этого выявленный дефицит гетерозигот может иметь несколько объяснений и сам по себе не позволяет установить причину отклонения. Его значение в настоящей работе состоит прежде всего в том, что оно формирует дополнительное основание для более тщательной проверки CASC8 независимым методом.
Для CASC17 , напротив, распределение генотипов AA 20, AC 70 и CC 64 соответствовало равновесию Харди–Вайнберга: точное значение p составило 0,863. Однако отсутствие статистически значимого отклонения также не является доказательством аналитической правильности. Это особенно наглядно именно для CASC17 , где благоприятный результат проверки равновесия Харди — Вайнберга сочетается с крайне низкой межметодной согласованностью. Таким образом, проверка равновесия Харди — Вайнберга в данной работе не может заменять прямую секвенционную верификацию [12].
Наиболее однородные пилотные характеристики получены для CCAT2 . Все 6 реакций соответствовали принятому критерию амплификационной кривой, во всех 6 электрофореграммах отсутствовали дополнительные полосы, а Tm находилась в диапазоне 77–79⁰C. Распределение генотипов GG 34, GT 77 и TT 42 также не отличалось от ожидаемого при равновесии Харди-Вайнберга: точный критерий приняло значение p =1,0. Вместе с тем медиана |ACq| составляла всего 1 цикл, поэтому даже при наиболее благоприятном сочетании пилотных характеристик остается необходимость установить распределение ΔCq отдельно для секвенционно подтвержденных референсных гомо-, гетерозигот и альтернативных гомозигот [12].
Расширенная лабораторная апробация показала, что 3 компонента, перешедшие к серийной постановке, характеризовались высокой операционной результативностью. Итоговое генотипическое заключение получено в 154 из 154 исследований CASC17, в 154 из 154 исследований CASC8 и в 153 из 154 исследований CCAT2. Полный трехлокусный профиль был сформирован у 153 из 154 образцов — 99,35% при двустороннем 95% ДИ 96,44–99,98. Односторонний точный биномиальный критерий подтвердил превышение принятого рабочего уровня 95% (p<0,001). Тем самым основная техническая конечная точка исследования была достигнута для 3 масштабированных компонентов.
При этом операционная результативность и аналитическая правильность принципиально различаются. Получение однозначного генотипического заключения еще не означает соответствия определенного генотипа истинному состоянию исследуемого локуса, поэтому доля 99,35% характеризует способность лабораторного алгоритма завершаться интерпретируемым результатом, но не может рассматриваться как чувствительность, специфичность или аналитическая точность тест-системы. Аналогично показатель 461 итоговое заключение из 462 потенциальных ло-кус-уровневых исследований (99,78%) имеет описательное значение. Поскольку 3 локуса определялись в одних и тех же 154 препаратах ДНК, эти 462 наблюдения статистически зависимы; формальная проверка основной гипотезы обоснованно выполнялась на уровне независимого образца.
Секвенционная проверка также имеет ограниченный объем. Контрольная серия первоначально формировалась из образцов, отнесенных по данным ПЦР-ПДРФ к гетерозиготам; секвенирование выявило две исходно ошибочно классифицированные гомозиготы. В результате для каждого локуса не получено полного набора секвенционно подтвержденных трех генотипических состояний. Особенно это касается CASC8 и CCAT2 , для которых все контрольные образцы, проверенные методом Сэнгера, оказались гетерозиготными. Именно поэтому точная оценка аналитической правильности и формирование локус-специфических интервалов ΔCq должны основываться на серии, в которой представлены подтвержденные референсные гомо-, гетерозиготы и альтернативные гомозиготы.
Заключение. Разработаны реагентные компоненты четырехлокусного прототипа аллель-спец-ифической ПЦР-РВ для HNF1B rs4430796, CASC17 rs1859962, CASC8 rs1447295 и CCAT2 rs6983267. Секвенирование контрольной серии выявило два расхождения с архивной ПЦР-ПДРФ и подтвердило необходимость независимого референсного метода при последующей оценке аналитической правильности.
Пилотные характеристики оказались локусза-висимыми. HNF1B на данном этапе не достиг критериев для переноса в расширенную апробацию, и его оптимизация продолжается; результаты этой работы будут представлены отдельно. Для CASC17 планируется расширить секвенционную проверку ввиду крайне низкого межметодного совпадения; для CASC8 – уменьшить неспецифическую амплификацию и объяснить отклонение генотипического распределения от равновесия Харди — Вайнберга; для CCAT2 – формализовать границы аллельной дискриминации 3 генотипических классов. В расширенной серии полный трехлокусный профиль получен у 153 из 154 образцов (99,35%; 95% ДИ 96,44–99,98; p=0,0034 относительно рабочего уровня 95%), что подтверждает высокую операционную результативность этих компонентов.
