
Влияние фотопериода на серотонинсодержащие клетки и инволюцию тимуса у мышей
Журнал: Морфологические ведомости @morpholetter
Рубрика: Оригинальные исследования
Статья в выпуске: 3 т.34, 2026 года.
Бесплатный доступ
ВВЕДЕНИЕ. В современном мире под влиянием среды нарушаются древние биологические механизмы синхронизации суточных биологических ритмов у млекопитающих. Результатом этого нарушения является состояние десинхроноза. Нарушение работы серотонинпродуцирующих клеток тимуса может увеличивать риск развития иммунодефицитных состояний, онкологических заболеваний. Механизмы взаимодействий серотонинпродуцирующих клеток и лимфоцитов в условиях естественной смены темновой и световой фаз в ритме свет/темнота и в условиях отсутствия этого ритма мало изучены. ЦЕЛЬ. Изучение влияния фотопериода на серотонинсодержащие клетки и инволюцию тимуса. МАТЕРИАЛЫ И МЕТОДЫ. В эксперименте использованы мыши в возрасте 3 недель с массой тела 18–20 г. Животные были разделены на три группы по 20 мышей: первую группу содержали в условиях естественного фотопериода, вторую – в условиях постоянного затемнения, третью – в условиях постоянного освещения в течение 4 недель. Иммуноцитохимическую реакцию на серотонин использовали для выявления серотонинсодержащих клеток тимуса. Ядра окрашивали DAPI (Dianova, Германия) для подсчета лимфоцитов. Для каждого среза выполняли измерения не менее чем в 10 полях зрения. Подсчет оптической плотности вещества осуществляли в программе Sigma Scan Pro 5 в 100 клетках по каждой экспериментальной группе. Статистический анализ обработки полученных данных проводили с использованием Microsoft Оffice® Excel 2010 и Statistica 10.0. Использовали критерии Манна – Уитни и Краскела – Уоллиса. Факторный анализ, применялся для изучения взаимосвязей между количеством серотонинсодержащих клеток, оптической плотностью сертонина и площадью инволюции тимуса. РЕЗУЛЬТАТЫ. Постоянное освещение приводит к увеличению количества серотонинпродуцирующих клеток в кортико-медуллярных зонах долек тимуса в 1,7 раза (p = 0,011) и серотонинпоглощающих клеток коркового вещества долек тимуса в 1,6 раза (p = 0,001). Постоянное освещение приводит к увеличению оптической плотности серотонина в лимфоцитах коркового вещества долек и уменьшению числа лимфоцитов. Многомерный факторный анализ показал наличие сильной факторной нагрузки между числом серотонин-позитивных клеток, содержанием серотонина в них и в лимфоцитах и площадью инволюции тимуса. ЗАКЛЮЧЕНИЕ. Результаты позволяют установить, что постоянное освещение приводит к увеличению числа серотонин-позитивных клеток и к накоплению серотонина в окружающих клетки диффузной эндокринной системы лимфоцитах и, как следствие, к значительному увеличению площади инволюции тимуса.
Короткий адрес: https://sciup.org/143186383
IDS: 143186383 | DOI: 10.20340/mv-mn.2026.34(3).965
The influence of photoperiod on serotonin-containing cells in the mouse thymus during involution
INTRODUCTION. In the modern world, ancient biological mechanisms that synchronize circadian rhythms are increasingly being disrupted. The disruption of these biorhythms leads to depression, decreased immunity, and consequently, to neurological, autoimmune, endocrine, and oncological diseases. However, the mechanisms of interaction between serotonin-producing cells and lymphocytes–both under a natural light/dark cycle and in its absence–remain poorly understood. OBJECTIVE. This study aimed to investigate the effect of different photoperiods on serotonin-containing cells of the diffuse endocrine system and on thymus involution. MATERIALS AND METHODS. Three-week-old mice weighing 18–20 g were divided into three groups of 20 animals each. The first group was maintained under natural photoperiod conditions (9/15 light/dark), the second under constant darkness (0/24), and the third under constant illumination (24/0) for 4 weeks. An immunocytochemical reaction for serotonin was used to detect serotonin-containing thymus cells. Nuclei were counterstained with DAPI (Dianova, Germany) to count lymphocytes. The optical density of the reaction product was measured in 500 cells per experimental group using SigmaScan Pro 5 software. RESULTS. Constant illumination led to a 1.7-fold increase in the number of serotonin-producing cells at the corticomedullary border and a 1.6-fold increase in serotonin-absorbing cells in the cortex of the thymic lobules. Furthermore, constant illumination resulted in an increased optical density of serotonin in cortical lymphocytes, accompanied by a decrease in the total lymphocyte count. Multivariate factor analysis revealed a strong factor loading between the number of serotonin-positive cells and their serotonin content. CONCLUSION. The findings demonstrate a clear relationship between the number of serotonin-containing cells, the area of thymus involution, and the duration of photoperiod exposure. In the modern world, ancient biological mechanisms of synchronization of circadian biological rhythms are being disrupted. Violation of the body's biorhythms leads to depression, decreased immunity and, as a result, to neurological, autoimmune, endocrine and oncological diseases. The mechanisms of interaction between serotonin-producing cells and lymphocytes under conditions of a natural change of dark and light phases in the light/dark rhythm and in the absence of this rhythm are poorly studied.
Текст научной статьи Влияние фотопериода на серотонинсодержащие клетки и инволюцию тимуса у мышей
ОРИГИНАЛЬНЫЕ ИССЛЕДОВАНИЯ / RESEARCH ARTICLES (3).965
(3).965
В условиях среды современного мира, когда жизненный уклад людей все меньше зависит от естественного фотопериода. Искусственное освещение, перемещения через несколько часовых поясов с большими скоростями, работа в условиях вахтовой организации труда в приполярных областях и на Крайнем Севере, работа в ночные смены, ночной «клубный» образ жизни нарушают древние биологические механизмы синхронизации суточных биологических ритмов у млекопитающих [1–5]. Результатом этого нарушения является состояние десинхроноза, которое Труфакиным В.А, Шурлыгиной А.В. трактуется как «рассогласование во времени физиологических процессов и искажение периодической программы» [6].
Существует ряд работ, свидетельствующих о влиянии сдвига фотопериода на работу иммун- ных органов [7–14]. Исследование культуры лимфоцитов показало, что увеличение длины световой фазы до 12 часов (12:12) приводит к увеличению количества Т-хелперов-1, но не меняет количество В-клеток, а также было отмечено, что удлинение фотопериода снижает тканевое содержание мелатонина в тимусе мышей и вызывает окислительный стресс и апоптоз в тимусе [8]. Кроме того, постоянное освещение приводит к снижению синтеза Il-14/13a Il-17a/f [9]. На постоянное освещение, с уменьшением интенсивности ночного света реагируют клетки моноцитарного происхождения и Т-клетки [10]. Известно, что короткий фотопериод подавляет как клеточный, так и гуморальный иммунитет у полосатых хомяков [11], вызывает снижение выработки компонентов воспалительного каскада CRP, TNF-α, IL-6, NOx, NF-κB, Cox-2 [12].
Постоянное затемнение приводит к увеличению количества лимфоцитов в фабрициевой сумке кур [13], в тимусе рыб при 8-часовом световом режиме толщина коркового вещества тимуса и количество лимфоцитов имеют более низкие показатели, чем при более длительном 16часовом световом режиме; непрерывное воздействие света приводило к практически полной дегенерации органа [14].
В научной литературе последних двух десятилетий появляются данные о циркадных изменениях в иммунной системе: циклично меняется иммунный и метаболический статус, апоптоз и пролиферация, а также субпопуляционный состав клеточных элементов в лимфоидных органах и крови [7–9]. Фотопериод синхронизирует работу всех звеньев иммунной системы в каждый данный момент времени [15] и изменение естественного ритма свет/темнота вызывает ряд та-кихз патологий, как иммунодефицитные состояния, аутоиммунные заболевания и метаболические сдвиги [6].
Тимус как центральный орган Т-лимфоцито-поэза крайне остро реагирует на любые внешние воздействия. Любой стрессовый фактор может вызвать акцидентальную инволюцию тимуса, выраженность которой будет зависеть от природы, силы и продолжительности действия фактора [15]. Инволюционные изменения в первую очередь проявляются в корковом веществе: усиление апоптоза, подавление митотической активности, деструкция Т-лимфоцитов и стромальных клеток, замена эпителиальной стромы жировой тканью [16]. Важную роль в поддержании гомеостаза в микроокружении созревающих Т-лимфоцитов играют серотонинпродуцирующие клетки диффузной эндокринной системы (ДЭС) тимуса. Клетки, расположенные на границе коркового и мозгового вещества дольки тимус, и клетки коркового вещества долек вилочковой железы, обладающие серотонинпоглотительными свойствами, создают биоаминное микроокружение лимфоцитов тимуса [17]. Связывание серотонина может происходить на поверхности кортико-медуллярных, субкапсулярных и тучных клеток с помощью мембранных фосфолипидов. Обратный захват серотонина из межклеточного вещества возможен с помощью моноаминового переносчика 5-НТТ (SERT), находящегося в плазматической мембране макрофагов, дендритных и тучных клеток [18]. В наших предыдущих исследованиях, проведенных на крысах, мы показали, что серотонинэр-гическая система тимуса чувствительна к изменению светового режима [19].
Мы предположили, что фотопериод оказывает влияние на интенсивность инволюционных процессов тимуса мышей через модуляцию работы серотонинергической системы, что требует исследования.
ЦЕЛЬ ИССЛЕДОВАНИЯ
Изучить влияние искусственного фотопериода на серотонинсодержащие клетки диффузной эндокринной системы и инволюцию тимуса.
МАТЕРИАЛЫ И МЕТОДЫ
Настоящее исследование является экспериментальным контролируемым. Исследование было проведено на базе лаборатории и вивария Чувашского государственного университета им И.Н. Ульянова. Модель исследования была одобрена ло- кальным этическим комитетом Чувашского государственного университета им. И.Н. Ульянова (протокол № 5 от 10.11.2023). Все манипуляции с лабораторными животными осуществляли в соответствии с требованиями Хельсинкской декларации (2013) и Европейской конвенции о защите позвоночных животных, используемых для экспериментов или в иных научных целях (ETS No 123, Страсбург, 18.03.1986 (с изм. от 22.06.1998)).
Для опыта отбирались самцы лабораторных мышей 3-недельного возраста, массой 11–12 г, с нормальной активностью (подвижность оценивали с помощью теста «открытое поле»), с густой шерстью, с нормальным аппетитом (мыши должны принимать пищу в 7:00 при кормлении). Критерии включения: мыши-самцы, возраст – 3 недели (на сроке 3,5–4 недели тимус мышей развит максимально, начиная с 4 недель начинается возрастная инволюция), масса 11–12 г, нормальная активность (подвижность оценивали с помощью теста «открытое поле»), густая блестящая шерсть, нормальный аппетит (мыши должны принимать пищу в 7:00 при кормлении). Критерии исключения: недостаточный или избыточный вес, редкая, тусклая шерсть, недостаточная подвижность, агрессия, плохой аппетит (мышь не ест при кормлении в 7:00). Исследование проводилось в виварии и в лаборатории кафедры общей и клинической морфологии и судебной медицины Чувашского госуниверситета.
Экспериментальная модель была создана для изучения значения фотопериода на серотонинсодержащие клетки и инволюцию тимуса мышей Продолжительность периода включения в эксперимент составлял 10 дней. По окончании эксперимента мышам было 1 месяц и 3 недели. Их масса в среднем составляла 19,4±1,3 г. Значение естественной смены темновой и световой фаз исследовалось путем исключения световой фазы при постоянном затемнении (0/24) и темновой фазы при постоянном освещении (24/24).
Животные были распределены на три группы (таблица 1): I – животные (n = 20), которые содержались в течение четырех недель эксперимента в обычных условиях вивария (естественное освещение; продолжительность светового дня – 8–9 часов (9/24); освещенность на уровне клеток в утренние часы 50–150 люкс, днем в пасмурный день – до 300 люкс, в ясный день – до 800 люкс, вечером – 100–200 люкс; свободный доступ к питьевой воде и корму); II – животные (n = 20), находившиеся в условиях постоянного затемнения (клетки находились в темной комнате, освещенность в клетках в течение дня составляла 0,5–1 люкс (0/24), при кормлении 7–9 люкс) в течение четырех недель. Животные имели свободный доступ к питьевой воде и корму; III – животные (n = 20), находившиеся в условиях постоянного освещения (24/24, 700 люкс) в течение четырех недель (свободный доступ к питьевой воде и корму).
Таблица 1. Схема экспериментального исследования влияния фотопериода на серотонинсодержащие клетки тимуса
Table 1. Scheme of an experimental study of the effect of photoperiod on serotonin-containing thymus cells
|
Условия эксперимента |
Естественные условия освещения |
Постоянное затемнение |
Постоянное освещение |
|
Группы экспериментальных мышей |
|||
|
1 |
2 |
3 |
|
|
Продолжительность светового дня, ч |
8–9 |
- |
24 |
|
Освещенность утром, лк |
50–150 |
0–0,5 |
700 |
|
Освещенность пасмурным днем, лк |
До 500 |
||
|
Освещенность ясным днем, лк |
До 1000 |
||
|
Освещенность вечером, лк |
100–200 |
||
Животные были выведены из эксперимента посредством ингаляционной эвтаназии углекислым газом. Тимус у животных извлекали после воздействия диоксида углерода на 28-е сутки эксперимента во второй половине дня (15:00–17:00) и фиксировались в 10 % формалине с последующей за- ливкой в парафин для общегистологических и иммуногистохимических методов с использованием моноклональных и поликлональных антител. Все действия, предусматривавшие контакт с лабораторными мышами, осуществлялись с учетом требований «Правил проведения работ с использованием экспериментальных животных» (Приказ МЗ РФ от 19.06.2003 № 267).
Депарафинизацию препаратов производили в ксилоле и регидратацию в спиртах снижающейся концентрации с последующей промывкой в дистиллированной воде в течение 5 мин. Затем блокировали эндогенную пероксидазу в 3% водном растворе перекиси водорода в течение 10 мин при комнатной температуре, после чего промывали в дистиллированной воде 4 мин и переносили стекла в 0,01 М фосфатно-солевой буфер (рН = 7,4) на 7 мин. Инкубацию производили в 5% растворе бычьего сывороточного альбумина, фракция V по Кону (Serva, Германия; Fluka, США) на фосфатно-солевом буфере – 10 мин при комнатной температуре. Затем удаление бычьего сывороточного альбумина без промывки, инкубация с первичными моноклональными антителами (клон 5-HT-H209, DAKO, Дания) в течение 30 мин, во влажной камере при 38 °C, с последующей промывкой в фосфатно-солевом буфере – 7 мин. Инкубацию осуществляли с вторичными биотинилированными антителами из набора LSAB2 (Dako, Дания) с добавкой 1–2% нормальной сыворотки мыши в течение 30 мин при комнатной температуре, затем осуществляли промывку в фосфатно-солевом буфере в течение 7 мин. Инкубация со стрептавидин-пероксидазой из набора LSAB2 (Dako, Дания) длилась 15 мин при комнатной температуре. Производили промывку в фосфатно-солевом буфере (5 мин) и в заключение инкубацию с раствором 3,3-диамино-бензидин-тетрагидрохлорида («DAB+», Dako, Дания) под визуальным контролем (3 мин), промывку в дистиллированной воде (5 мин) [7, 11].
Иммуноцитохимическую реакцию на серотонин (5-гидрокситриптамин, 5-HT) использовали для выявления серотонина в клетках, способных синтезировать или накапливать этот моноамин, в частности, в клетках стромы и паренхимы тимуса [12]. Образцы (крио- и парафиновые срезы) промывали 0,1 М PBS, затем на 60 минут при комнатной температуре во влажной камере наносили флуоресцентный краситель. Для обнаружения гепаринсодержащих гранул образцы инкубировали с авидином, конъюгированным с AlexaFluor-488 (Invitrogen, 1:400), тогда как ядра метили DAPI (Dianova, Гамбург, Германия). Для фиксации покровного стекла и предотвращения затухания флуоресценции добавляли маунтант ProLong Gold Antifade Mountant. В отрицательном контроле первичное антитело отсутствовало. Цифровую визуализацию выполняли с использованием эпифлуо-ресцентного микроскопа EVOS FL Cell Imaging System (Thermo Fisher Scientific, Уолтем, Массачусетс, США) с объективами ×10, ×20 и ×40. Световую микроскопию проводили на микроскопе BX51 Olympus (Токио, Япония). Конфокальные изображения были получены с использованием конфокального микроскопа Leica TCS SP5 (Leica Microsystems, Вецлар, Германия) с иммерсионными масляными объективами ×40 и ×63. Alexa-488, Alexa-594 и DAPI возбуждались с помощью аргонового лазера (488 нм), гелий-неонового лазера (543 нм) и синего диодного лазера (405 нм) соответственно. Изображения были псевдоцветными с помощью инструментов RGB и реконструированы с помощью программного обеспечения ImageJ.
Цифровые снимки микропрепаратов получены с помощью микроскопа Zeiss Primo Star и программы Zen 3.0 (blue edition). Микрофотографии для проведения морфометрических измерений получены при увеличениях ×100 и ×400 с обозначением градуировочной линейки на каждом снимке. Морфометрический анализ выполнен с помощью программы Zen 3.0 (blue edition) (Carl Zeiss, Германия), а также программы Sigma Scan Pro 5 (SYSTAT, США). Площадь мембранной и цитоплазматической иммуногистохимической реакции оценивали методом автоматического выделения и подсчета площади интересующего цветового спектра (окрашенного DAB) по отношению к площади снимка. Затем числовые значения площади позитивной иммуногистохимической реакции переводили в процентное отношение к общей площади снимка. Для каждого среза выполняли измерения не менее чем в 10 интересующих полях зрения при увеличении ×400. Подсчет оптической плотности вещества осуществляли в программе Sigma Scan Pro 5 в 100 клетках по каждому животному.
При статистическом анализе резульаттов исследования использовали невероятностную одноступенчатую выборку животных. Размер выборки определялся по методу К.А. Отдельновой [20]. Методы статистического анализа данных : Статистический анализ обработки полученных цифровых данных проводили с использованием пакета программ Microsoft Оffice® Excel 2010 и Statistica 10.0. (IBM, США). Факторный анализ применялся для изучения взаимосвязей между числом серотонинпозитивных клеток и оптической плотностью серотонина в них, а также оптической плотностью серотонина в лимфоцитах и площадью инволюции тимуса. Перед проведением факторного анализа была произведена нормализация выборки. Выводы о содержании вещества в клетках делали путем измерения его оптической плотности в 100 клетках по каждому животному. Использовали непараметрические статистические методы, так как графический метод и критерий Колмогорова–Смирнова показали ненормальное распределение данных. Данные представлены в виде Mе ± SD. Использовали U критерий Манна – Уитни. Рассчитывали критерий Краскела – Уоллиса. Данные считали достоверными при уровне значимости p < 0,01.
РЕЗУЛЬТАТЫ И ОБСУЖДЕНИЕ
Количество серотонин-позитивных клеток, содержание серотонина в них и в микроокружении Т-лимфоцитов свидетельствуют об активности серотонинэргической системы тимуса. Изменение числа лимфоцитов и площади инволюции тимуса может свидетельствовать об интенсивности пролиферации Т-лимфоцитов. В тимусе контрольных мышей (I экспериментальная группа) серотонинпозитивные клетки выявляются в корковом (рис. 1, А) и мозговом веществе долек, а также на границе коркового и мозгового вещества долек тимуса (рис. 1, Г).
На микропрепаратах, обработанных моноклональными антителами к 5-HT, позитивную реакцию дают эндотелий сосудов и тучные клетки (рис. 1, АI 2, 1, Г, 1, З). Серотонинсодержащие клетки ДЭС на границе коркового и мозгового вещества (далее - КМЗ) долек тимуса немногочисленны, расположены небольшими группами, их количество достигает 22 ± 5 в 1 мм2. Оптическая плотность серотонина в них 0,24 ± 0,01, а оптическая плотность серотонина в лимфоцитах на границе коркового и мозгового вещества дольки составляет 0,06 ± 0,004.
В группе мышей, содержавшихся при постоянном затемнении (0/24), наблюдается аименьшая площадь инволюции тимуса – 384 638 ± 458 мкм2 (рис. 1, З). Показатели данной группы незначительно понижены в 1,2 раза (p = 0,006), по сравнению с контрольной группой (469 761 ± 1009 мкм2). Площадь инволюции тимуса мышей, которые содержались при постоянном освещении (6508372 ± 1722 мкм2) (24/24) увеличилась в 13,9 раза по сравнению с контрольными значениями (рис. 1, И).
По результатам наших исследований, искусственное затемнение (II экспериментальная группа) не приводит к достоверным изменениям количества серотонинпозитивных клеток границы коркового и мозгового вещества и в корковом веществе тимусных долек. Оптическая плотность серотонина снижается в нейроэндокринных клетках коркового вещества.
Постоянное освещение (III экспериментальная группа) приводит к увеличению количества клеток ДЭС в корковом веществе долек тимуса в 1,6 раза (p = 0,001), одновременно происходит снижение оптической плотности серотонина в вышеназванных клетках в 2,8 раза (p = 0,001) (табл. 2) и повышение содержания серотонина в лимфоцитах коркового вещества в 1,8 раза (p = 0,002). В КМЗ долек тимуса животных, содержавшихся при постоянном освещении, наблюдается увеличение числа клеток ДЭС в 1,7 раза (p = 0,011) и увеличение содержания в них серотонина в 1,6 раза (p = 0,004).
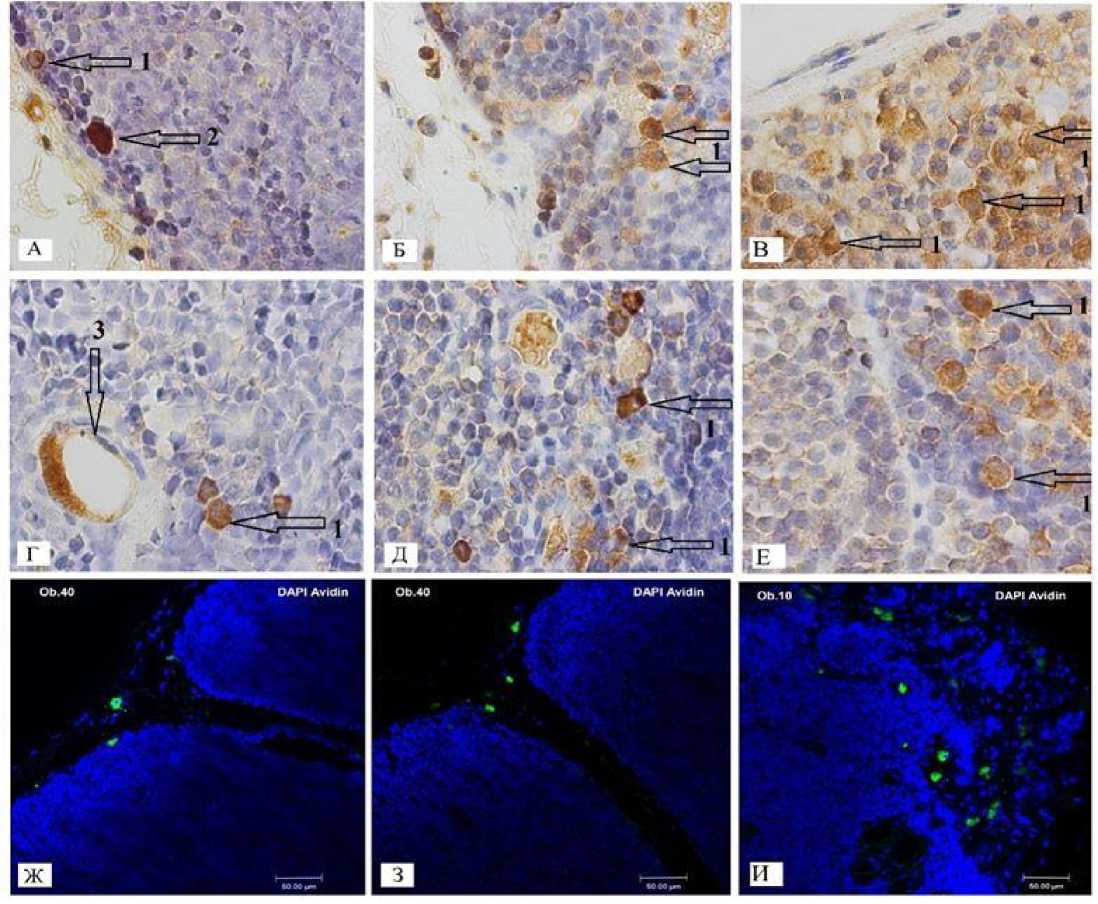
Рис. 1. Микрофотографии. Влияние фотопериода на серотонин-позитивные клетки и площадь инволюции тимуса: a – животные, содержавшиеся при естественном фотопериоде; b – животные, содержавшиеся при постоянном затемнении; c –, d –; I – увеличение 40; II – увеличение 100; III – увеличение 1000, корковое вещество; IV – увеличение 1000, премедул-лярная зона; 1 – серотонинпозитивная клетка ДЭС; 2 – тучная клетка; 3 – серотонин-позитивный эндотелий; А – корковое вещество; Б – мозговое вещество. Иммуногистохимическая реакция на серотонин с использованием моноклональных кроличьих антител к 5-НТ1ВR (USBiologicals, 1:100). V – увеличение 400. Тучные клетки люминесцируют зеленым светом (Avidin+). Ядра клеток окрашиваются в голубой цвет (DAPI+). Корковое вещество долек люминесцирует ярче, чем мозговое, но в экспериментальной группе животных с введением мелатонина в условиях затемнения (Г) одинаково ярко люминесци-руют корковое и мозговое вещество. Постоянное освещение приводит к усилению инволюционных процессов
Fig. 1. Photomicrographs. Effect of photoperiod on mast cells, serotonin-positive cells and the area of thymus involution: А , Г , Ж – natural light period (9/15); Б , Д , З – constant darkeness (0/24); В , Е , И – constant lighting (24/24). А , Б , В – ×1000, cortex; Г , Д , Е – ×1000, premedullary zone; 1 – serotonin-positive cell of the DES; 2 – mast cell; 3 – serotonin-positive endothelium. Immunohistochemical reaction to serotonin using monoclonal rabbit antibodies to 5-HT1BR (USBiologicals, 1:100). Ж , З , И – ×400. Mast cells fluoresce with green light (Avidin+). The cell nuclei are stained blue (DAPI+). The cortex of the lobules luminesces brighter than the medulla, but in the experimental group of animals with the introduction of melatonin under darkening conditions (G), the cortex and medulla luminesce equally brightly. Constant illumination leads to an increase of involutional processes
Таблица 2. Количество и оптическая плотность серотонин-позитивных клеток тимуса в условиях естественного и искусственного фотопериодов
Table 2. Number and optical density of serotonin-positive thymus cells under natural and artificial photoperiods
|
Показатели сравнения |
Экспериментальные группы |
||
|
I |
II |
III |
|
|
Количество кле ток ДЭС в КВ (в 1 мм2) |
8 ± 2 |
9 ± 1 |
13 ± 2 p = 0,001 |
|
Оптич. плотность серотонина в клетках ДЭС КВ |
0,11 ± 0,01 |
0,07 ± 0,05 p <0,001 |
0,04 ± 0,01 p <0,001 |
|
Оптич. плотность серотонина в микроокружении клеток ДЭС КВ |
0,05 ± 0,01 |
0,06 ± 0,02 |
0,09 ± 0,01 p <0,0001 |
|
Количество кле ток ДЭС в КМЗ (в 1 мм2) |
22 ± 5 |
25 ± 3 |
37 ± 3 |
|
Оптич. плотность серотонина в клетках ДЭС КМЗ |
0,24 ± 0,01 |
0,25 ± 0,002 |
0,38 ± 0,005 p <0,001 |
|
Оптич. плотность серотонина в микроокружении клеток ДЭС КМЗ |
0,06 ± 0,004 |
0,08 ± 0,01 |
0,11 ± 0,002 p <0,001 |
Примечание. КВ – корковое вещество; КМЗ – кортикомедуллярная зона; I – животные, содержавшиеся при естественном освещении; II – животные, содержавшиеся в условиях затемнения; III – животные, содержавшиеся при постоянном освещении
Note: CS – cortex; СMZ – corticomedullary zone; I – animals kept in natural light; II – animals kept in darkened conditions; III – animals kept in constant light and given melatonin for 4 weeks
Многомерный факторный анализ показал наличие сильной факторной нагрузки между числом серотонин-позитивных клеток, содержанием серотонина в них и в окружающих лимфоцитах и площадью инволюции в тимусе. Развитие интратимических Т-клеток контролируется тимическим микроокружением, образованным тимическими эпителиальными клетками (TEC), дендритными клетками и макрофагами, способными секретировать серотонин [21]. Небольшое снижение площади инволюции в условиях постоянного затемнения, вероятно, объясняется усилением пролиферации лимфоцитов, выявленное нами в исследованиях на крысах [7]. В условиях отсутствия света достоверных изменений в серо-тонинпродуцирующих клетках ДЭС тимуса и их микроокружении не выявляется, за исключением снижения содержания серотонина в ДЭС коркового вещества тимусных долек. Еще в работе 1980 г. [22] показано, что многократное введение серотонина вызывает инволюцию тимуса и подавление Т-клеточного иммунного ответа. Вероятно, что снижение содержания серотонина в стромальных клетках и лимфоцитах коркового вещества связано с ингибированием инволюционных процессов и, возможно, со стимулированием пролиферации лимфоцитов.
Постоянное освещение увеличивает содержание серотонина в клетках ДЭС кортико-медуллярной зоны и в лимфоцитах этой зоны. Исходя из того, что клетки ДЭС кортико-медуллярной зоны являются продуцентами серотонина, а Т-лимфоциты являются аминопоглотителями [17], то в условиях постоянного освещения происходит увеличение серотонинпродукции клетками ДЭС и усиление поглощения серотонина тимоцитарной паренхимой в кортико-медуллярной зоне дольки тимуса.
Происходит снижение содержания серотонина в ДЭС коркового вещества и одновременно повышение в лимфоцитах коркового вещества долек. При постоянном освещении уровень серотонина в лимфоцитах повышается, так как, возможно, нарушается превращение серотонина в мелатонин. Например, в исследованиях, где животные были помещены в условия со смещением фотопериода в сторону длинного светового дня, наблюдается уменьшение секреции экстрапени-ального мелатонина стромальными клетками тимуса [7]. Постоянное освещение приводит к увеличению оптической плотности серотонина в лимфоцитах коркового вещества долек и уменьшению числа лимфоцитов. Повышенный уровень серотонина и сниженный уровень мелатонина в лимфоидных тканях сопровождаются снижением пролиферации и активацией апоптоза в лимфоцитах [23], что продемонстри-рованно нами так же в работах, проведенных на крысах [19] и подтверждено многомерным факторным анализом. С помощью флюоресцентного красителя DAPI были подсчитаны ядра клеток в корковом веществе долек тимуса (рис. 2).
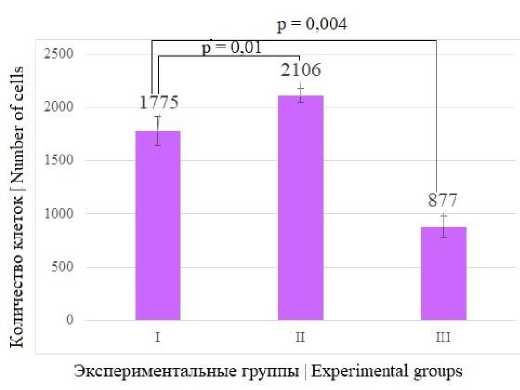
Рис. 2. Диаграмма изменения числа клеток в корковом веществе тимуса в разных условиях освещения: I – животные, содержавшиеся при естественном освещении;
II – животные, содержавшиеся в условиях затемнения; III – животные, содержавшиеся при постоянном освещении Fig. 2. Chart of cells number of the thymus cortex under different lighting conditions: I – animals kept in natural light;
II – animals kept in darkened conditions; III – animals kept in constant light
При постоянном затемнении (0/24) число лимфоцитов в паренхиме коркового вещества увеличивается в 1,2 раза (p = 0,01), а при постоянном освещении наблюдается снижение их числа в 2 раза (p = 0,004). Фотопериод влияет на пролиферативные процессы в тимусе мышей через модуляцию работы серотонинпродуцирующих клеток ДЭС тимуса мышей. Между числом серотонин-позитивных клеток, содержанием серотонина в них и в окружающих лимфоцитах, количеством клеток в корковом веществе долек тимуса площадью инволюции в тимусе имеется сильная связь.
Результаты данного исследования позволяют установить, что постоянное освещение приводит к увеличению числа серотонин-позитивных клеток и к накоплению серотонина в окружающих клетки ДЭС лимфоцитах и, как следствие, к значительному увеличению площади инволюции тимуса. Серотонинергическая и мелатонинэрги-ческая системы тимуса модулируются фотопериодом [7]. В лимфоцитах экспрессируются два высокоаффинных рецептора для мелатонина – мембранные МТ1 и МТ2 [25], а для Th17 и для части регуляторных Т-лимфоцитов (regulatory T cells, Treg) к мембранным рецепторам добавляется ядерный, RORα [26–28].
Все специфические мелатониновые рецепторы лимфоцитов имеют разную аффинность к мелатонину, что объясняется физиологическими колебаниями уровня гормона в течение суток и разных сезонов у млекопитающих. Сродство ядерного рецептора к мелатонину на два порядка ниже, чем мембранных [26]. Мелатонин в микро-молярных концентрациях способен связываться с другими внутриклеточными мишенями, такими как хинон-редуктаза 2(МТ3) [29] и кальмодулин [30]. Возможно, что при высокой концентрации мелатонина в микроокружении Т-лимфоцитов, как при постоянном затемнении, его эффекты осуществляются через специфические мембранные рецепторы МТ1 и МТ2. На свету подавляется выработка пинеального мелатонина, возможно нарушается превращение экстрапине-ального серотонина в мелатонин, и мы наблюдаем повышенное содержание серотонина в ре-тикулоэпителиальных клетках в клетках ДЭС тимуса, в лимфоцитах. Возможно, что при низкой концентрации мелатонина, как при постоянном освещении, его эффекты осуществляются через ядерный RORα, МТ3 и кальмодуллин. Связывание мелатонина с рецепторами с разной аффинностью запускает, очевидно, различный каскад биохимических процессов, что объясняет разные иммуномодулирующие эффекты и противоречия. Повышенный уровень серотонина и сниженный уровень мелатонина в лимфоидных тканях при постоянном освещении сопровождаются снижением пролиферации лимфоцитов и активацией инволюции тимуса.
Стоит отметить, что измерение оптической плотности – очень чувствительный метод, который зависит от качества иммуногистохимической реакции, от качества микрофотографий.
Чтобы исключить ошибку, все препараты окрашивались одномоментно и при изготовлении микрофотографий фиксировалась освещенность и всегда осуществлялся баланс белого цвета.
ЗАКЛЮЧЕНИЕ
Реакция серотонин-продуцирующих клеток ДЭС тимуса на искусственный фотопериод, прямая сильная связь между числом серотонин-позитив- ных клеток, содержанием серотонина в микроокружении лимфоцитов и площадью инволюции тимуса может существенное значение в разработке иммуностимулирующей фототерапии.
