
Биотермодинамика и экология. Обзор термодинамических начал. 1. Нулевое, первое и второе начала
Бесплатный доступ
Биотермодинамика – это наука, уточняющая общие законы термодинамических процессов, происходящих в живых организмах как неравновесных термодинамических системах. Анализируются приложения начал (законов) термодинамики к решению проблем теоретической экологии. Открытые неравновесные (необратимые) процессы, к которым относят реальные превращения в природе, сопровождаются остаточными изменениями в окружающей среде; для неравновесных процессов показатели меняются со временем. Основные части обзора посвящены приложению начал термодинамики к экологии (понимание термодинамических принципов функционирования экосистем, разработка концепций достижения устойчивости экосистем и биосферы в целом, развитие представлений об «энтропии» и пр.).
Короткий адрес: https://sciup.org/147255157
IDS: 147255157 | УДК: 536-1+574 | DOI: 10.15393/j1.art.2026.17762
Biothermodynamics and ecology. Overview of thermodynamic principles. 1. Zero, first and second principles
Biothermodynamics is the science that clarifies the general laws of thermodynamic processes occurring in living organisms as non-equilibrium thermodynamic systems. The study analyzes the application of the principles (laws) of thermodynamics to solving problems in theoretical ecology. Open non-equilibrium (irreversible) processes, which include real transformations in nature, are accompanied by residual changes in the environment; for non-equilibrium processes, the key parameters change over time. The main sections of the review are devoted to the application of the principles of thermodynamics to ecology (understanding the thermodynamic principles of ecosystem functioning, developing concepts for achieving the sustainability of ecosystems and the biosphere in general, developing ideas of "entropy," etc.).
Текст научной статьи Биотермодинамика и экология. Обзор термодинамических начал. 1. Нулевое, первое и второе начала
Памяти чл.-корр. РАН
Эрнеста Викторовича Ивантера посвящается
Термодинамика – палка о трех началах.
Первый закон термодинамики – чем сильнее вы мерзнете, тем быстрее прогревается нетопленый вагон.
Все сложные системы характеризуются простыми и сложными свойствами (Ро-
Подписана к печати: 29 сентября 2026 года зенберг, 2013). Так как все вокруг нас (и мы сами) состоит из «вещества и энергии», важную роль приобретают законы сохранения и ряд основных термодинамических функций. Термодинамика как раздел физики (Базаров, 1991, 2003), изучающая наиболее общие свойства макроскопических систем и способы передачи и превращения энергии в таких системах, является базой (основанием) для описания вещественно-энергетического баланса (простая характеристика) простых и сложных систем. Законы термодина- мики носят общий (аддитивный) характер и не зависят от конкретных деталей строения вещества на атомарном уровне, поэтому термодинамика успешно применяется в широком круге вопросов науки и техники, в том числе и в экологии для анализа простых свойств сложных экосистем. «Живые организмы обладают уникальной способностью извлекать, преобразовывать и запасать энергию в различных формах. Вся жизнь на Земле, включая ее возникновение, развитие и способность приспосабливаться к физическим условиям планеты, в конечном счете зависит от того, насколько эффективно первичная энергия излучения Солнца улавливается и используется в различных жизненных процессах. <…> Термодинамические методы важны для анализа энергетических превращений, понимания процессов самоорганизации и нарушения порядка как в биологических системах в целом, так и в экологических системах» (Большаков и др., 2000, с. 65, 66; Jørgensen, Fath, 2004; Nielsen et al., 2020).
Начала термодинамики – совокупность постулатов, лежащих в ее основе. Эти положения были установлены в результате научных исследований и доказаны экспериментально. Одной из наиболее привлекательных черт всегда была возможность получения огромного множества следствий, относящихся к различным явлениям, на основе небольшого числа первичных принципов (начал), носящих характер непреложных истин. В качестве постулатов они принимаются для того, чтобы термодинамику можно было построить аксиоматически. Необходимость начал термодинамики связана с тем, что термодинамика описывает макроскопические параметры систем без конкретных предположений относительно их микроскопического устройства (реализация принципа рекуррентного объяснения из системологии (Флейшман, 1982; Розенберг, 1988, 2013)). Начала термодинамики независимы, то есть ни одно из них не может быть выведено из других начал.
Аналитический обзор
Закон (принцип) энергетической проводимости: поток энергии (вещества и информации) в системе как целом должен быть сквозным, охватывающим всю систему или косвенно отзывающимся в ней (иначе система не будет обладать свойством целостности). Очевидно, для любой, в том числе и экологической, системы определенного уровня иерархии длительность прохождения потока энергии, вещества и информации будет специфичной. Больше всего расчетов сделано для гидроэкосистем. Водообмен в биологической особи занимает часы, влаги в атмосфере (следовательно, и в аэробиосфере) – 8 дней, свободных континентальных поверхностных вод – от 16 дней в реках до 17 лет в озерах; подземные воды обновляются за 1400 лет, а воды океана за 2.5 тыс. лет. Очевидно, существует характерное время транзита энергии и обмена веществ во всех природных системах мира (Реймерс, 1994). Ю. Н. Куражсковский назвал этот закон энергетической проводимости законом сохранения жизни: «Второй экологический закон – закон сохранения жизни: жизнь может существовать только в процессе движения через живое тело потока веществ, энергии и информации. Прекращение движения в этом потоке прекращает жизнь» (Кураж-сковский, 1990, с. 25). Реймерс считает, что такая формулировка закона подходит не только для функционирования жизни, но и всех динамических систем. Само же движение энергии, вещества и информации в термодинамических терминах подчинено трем основным началам.
Нулевое начало термодинамики. Названо так потому, что оно было сформулировано уже после того, как первое и второе начала вошли в число устоявшихся научных понятий. Оно утверждает, что изолированная термодинамическая система с течением времени самопроизвольно переходит в состояние термодинамического равновесия и остается в нем сколь угодно долго, если внешние условия сохраняются неизменными (Прохоров, 1998, с. 601). Термодинамическое равновесие предполагает наличие в системе механического, теплового и химического равновесий, а также равновесия фаз. Классическая термодинамика постулирует лишь существование состояния термодинамического равновесия, но ничего не говорит о времени его достижения. Важность этого постулата состоит в том, что он позволяет ввести некоторую функцию состояния системы, обладающую свойствами эмпирической температуры, то есть создавать приборы для измерения температуры. Более широко нулевое начало термодинамики можно понимать как утверждение о существовании в окружающем нас мире объектов, к которым применима наука термодинамика . Из этого начала также следует, что термодинамическая система не может быть очень большой или слишком маленькой, что связано с порядком числа Авогадро .
Последнее позволяет по-иному взглянуть на утверждение, что мировые константы в их традиционном (физическом) смысле в экологии отсутствуют (Налимов, 1983; Розенберг, 2011), – это следует приписать сложным свойствам сложных систем. В качестве примера назовем « показатель Престона z = 0.27» (показатель сходства из уравнения Престона , при котором флоры статистически однородны (Preston, 1962; Малышев, 1975; Иванова и др., 2006, 2018; Костина, 2013)): «...для определения флористического различия, оцениваемого экспонентой z , можно использовать каноническое уравнение Престона, которое основано на прямом учете количества общих и специфических таксонов. <…> Большое значение имеет установленная Престоном теоретическим путем критическая, или пороговая, величина z около 0.27 (или 0.265 для флор с количеством видов более 10 тыс.). При различии выше 0.27 сравниваемые флоры являются изолятами» (Малышев, 1975, с. 1541). Можно вспомнить еще и постоянную Вернадского (давление живого вещества на окружающую среду в биосфере (Vernadsky, 1925; Вернадский, 1998, с. 39–57)), и коэффициент Редфилда (постоянство соотношения между углеродом, азотом и фосфором в морском фитопланктоне и в глубоководных районах океанов (Redfield, 1934)), и мн. др.
Все эти экологические константы «на самом деле отражают единообразие физиологической и биохимической организации жизни. Более того, сам экосистемный подход возможен только благодаря тому, что число основных функций, осуществляемых организмами (иначе говоря, число «биогеохимических ролей»), очень невелико по сравнению с колоссальным разнообразием форм, свойственных органическому миру. Например, результаты процесса фотосинтеза – в принципе одни и те же у самых разных растений. Соответственно, результаты эти можно суммировать и получить интегральную оценку активности всего сообщества сразу – неважно, будь то массив леса или фитопланктон пруда» ((Гиляров, 1998, с. 98); выделено нами. – Авторы). Последнее предложение этой цитаты – очень сильное утверждение, которое справедливо, как мы уже подчеркивали, лишь для простых (аддитивных) свойств сложных систем. Отсюда очевидно, что и для простых свойств сложных экологических систем действуют общие термодинамические принципы и законы сохранения энергии, вещества, инфор- мации. Наиболее существенны из них, видимо, следующие, формулировки которых максимально приближены к экологическим нуждам (Реймерс, 1994).
Первое начало термодинамики (любые изменения в изолированной системе оставляют ее общую энергию постоянной; или: при всех макроскопических процессах энергия не создается и не исчезает, а лишь переходит из одной формы в другую) выражает универсальный закон сохранения вещества и энергии применительно к задачам термодинамики и исключает возможность создания «вечного двигателя» (устройства, способного совершать работу без соответствующих затрат энергии).
Этот закон математически выражается следующим уравнением:
^W=^H+^A, где W – энергия, ΔW – прирост энергии за некоторое время Δt, ΔH – количество полученного тепла от окружающей среды, ΔA – объем работы, совершенной системой. Иными словами, первый закон термодинамики гласит: энергия не создается заново и никуда не исчезает. Фактически первый закон термодинамики эквивалентен закону сохранения энергии в применении к процессам преобразования теплоты.
Свет как одна из форм энергии может быть превращен в работу, теплоту или потенциальную энергию химических веществ пищи. Из этого следует, что если какая-либо система (как абиотическая, так и биотическая) получает или затрачивает энергию, то такое же количество энергии должно быть изъято из окружающей ее среды. Этот закон позволяет понять и описать такие экологические процессы, как биоаккумуляцию (накопление организмом химических веществ, поступающих из окружающей среды в концентрации б о льшей, чем находится в окружающей среде), биомагнификацию (увеличение концентрации химических веществ на каждой ступени экологической пирамиды, связанное с тем, что количество поглощаемой организмом пищи намного превышает его собственную массу, а химические вещества выводятся из организма не полностью), поток энергии через трофические уровни , понять закон Либиха о минимуме и пр. Принцип сохранения массы (балансовые соотношения) широко используется в классе экологических моделей, называемых биогеохимическими моделями .
Наверное, самое простое использование первого начала термодинамики в экологии можно проиллюстрировать на примере гидрологических или гидрохимических процессов абиотических компонент экосистем. В частности, при моделировании морских экосистем (Беляев, 1978, 1987) дано математическое описание диффузии существенно неконсервативных частиц (обменивающихся веществом и энергией с окружающей средой при произвольном изменении параметров своего состояния во времени).
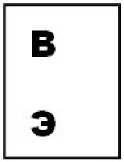
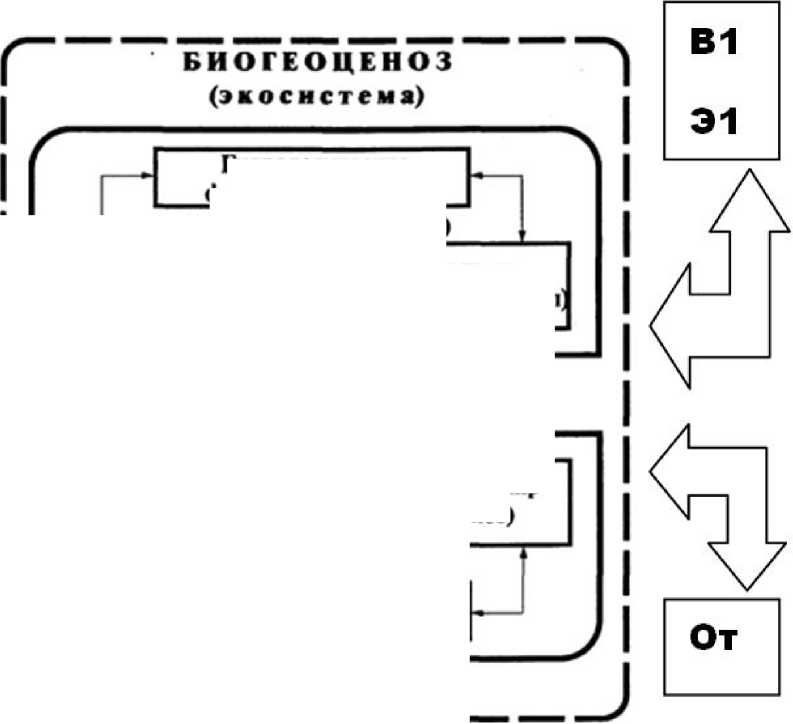
Первое начало термодинамики служит основой и для «блочного» описания экологических систем (рис. 1), что позволяет составлять балансовые соотношения и моделировать изменение этих характеристик в рамках термодинамических представлений. Существование биогеоценоза – экосистемы заканчивается одновременно с высвобождением в процессе круговорота веществ всей накопленной энергии (все переходит в От ).
Почвенные факторы (эдафотоп
Растительность (фитоценоз)
Рис. 1. Схема блоков биогеоценоза – экосистемы по В. Н. Сукачеву – А. Тэнсли; здесь В и В1 – вещество в момент времени t = 0 и t = 1; аналогично Э и Э1 – энергия, От – результаты жизнедеятельности экосистемы, отходы, «запасы» и пр.
Fig. 1. Diagram of the components of a biogeocoenosis - ecosystem according to V.N. Sukachev and A. Tansley; here, В and В1 represent matter at time t = 0 and t = 1, respectively; similarly, Э and Э1 represent energy; От denotes the results of ecosystem activity, such as waste products, "reserves," etc .
Климатические факторы (климатоп
БИОЦЕНОЗ
Микроорганизмы (микробоценоз)
Гидрологические факторы (гидротоп) ЭКОТОП (БИОТОП)
Животный мир (зооценоз)
Фактически математическая экология началась с рассмотрения точечных моделей, которые описывались системой обыкновенных дифференциальных уравнений:
(hi I dt = Fj(xi, хг,... хи, /), z = 1,2,... и, где Fi – нелинейные функции динамических переменных xi (биомасса, численность популяций и пр.) и времени t. Как правило, они состоят из нескольких слагаемых (вот и опять аддитивность!..): положительные компоненты описывают «прибыль» компонента xi, а отрицательные – «убыль». Для составления балансового соотношения необходимо знать скорости притока и оттока каждого компонента, их зависимости от ди- намических переменных xi и времени t. И постараться так записать модель – систему уравнений (формула выше), чтобы выполнялось первое начало термодинамики: все, что поступило в экосистему, переработалось и пошло либо на ее развитие, либо в «отходы».
В качестве примера укажем на аналитическую модель сезонного развития сообщества фитопланктона (так называемый эффект «цветения воды» (Крестин, Розенберг, 1991, 1996, 2002; Rozenberg, Krestin, 1997; Розенберг, 2013; Розенберг и др., 2023)). Это модель вольтерровского типа предполагает конкурентные взаимоотношения «обычных» (x1) и сине-зеленых водорослей (x2), причем последние находятся под воздействием зоопланктона (z). Ряд достаточно реалистичных предположений (экспоненциальный рост видов фитопланктона, постоянство поступления фосфора и тяжелых металлов, загрязняющих воду, выполнение «гипотезы эквивалентов» (Вольтерра, 1976) - биомасса жертвы полностью перерабатывается в биомассу хищника, и некоторые другие) позволили представить динамику такой экосистемы пятью дифференциальными уравнениями, описывающими баланс вещества в ней, что соответствует первому началу термодинамики. Эта модель имеет два стационарных решения, устойчивость которых зависит от соотношения ее коэффициентов. Модель представляется вполне адекватной реальной ситуации. В частности, получены два пика «цветения» (весенний и летний) для x2 и z, что хорошо согласуется с результатами полевых наблюдений (см., например, данные по фитопланктону для сезонов 1989–1991 гг. в Приплотинном плесе и 1982 г. в Ульяновском плесе Куйбышевского водохранилища (Паутова, Номоконова, 1994, с. 70) и по зоопланктону – в частности, биомассе коловраток (Тимохина, 2000, с. 60)).
Вернемся к первому началу термодинамики. Различая виды (формы) энергии (к представленным в табл. 1 можно добавить электромагнитную , ядерную и пр.; см. рис. 2 (Коган, 2007, c. 3; Яворский, Детлаф, 1990)), подчеркнем, что работа может быть выполнена, когда экстенсивная переменная изменяется с одного уровня интенсивной переменной на другой, и эта работа равна экстенсивной переменной, умноженной на разницу интенсивной переменной между двумя уровнями. Поскольку энергия сохраняется, работа подразумевает, что одна форма энергии передается другой форме энергии.
Таблица 1. Различные формы энергии и их интенсивные и экстенсивные переменные (Jørgensen, 2012, р. 17)
|
Форма энергии |
Экстенсивная переменная |
Интенсивная переменная |
|
Тепловая |
Энтропия (Дж / К) |
Температура (К) |
|
Расширения / сжатия |
Объем (m3) |
Давление (Ра = кг / (с2 m)) |
|
Химическая |
Грамм-молекула (M) |
Химический потенциал (Дж/моль) |
|
Электрическая |
Заряд (в амперах) |
Напряжение (вольт) |
|
Потенциальная |
Масса (кг) |
(Гравитация) (высота) (m2 / с2) |
|
Кинетическая |
Масса (кг) |
0.5 (скорость)2 (m2 / с2) |
Примечание. Потенциальная и кинетическая энергии обозначены для механической энергии. Дж – Джоуль, единица измерения энергии, работы (Дж = Н ' т, где Н - Ньютон, единица измерения силы; m – метр); К – Кельвин, единица термодинамической температуры (ТК = ТС + 273.15 [температура тройной точки воды +0.01 °C]); Ра – Паскаль, единица измерения давления, с – секунда; М – моль, единица измерения количества вещества.
В рамках термодинамики энергия рассматриваемой сложной системы часто определяется как способность выполнять работу (Jørgensen, 2012). Однако это определение противоречит второму началу термодинамики (см. далее). В этом контексте предполагается, что система переводится на уровень, где интенсивная переменная равна 0, в результате чего выполняемая работа становится равной энергосодержанию самой системы. Однако тепловая энергия отличается от других форм энергии в том смысле, что полное использование энергии для работы невозможно. Тепловая энергия может использоваться в так называемом цикле Карно для выполнения работы путем перевода из более теплой системы в более холодную систему. Эффективность становится равной (T – To / T), что означает, что для полного использования энергии для выполнения рабо- ты требуется, чтобы To = 0, и 0^K, что невозможно достичь для холодного резервуара без вложения большего количества работы, чем получено в цикле Карно. Ограничения переноса энергии на 0^К будут обсуждаться далее, когда будет представлено третье начало термодинамики.
Выше, говоря о превращении солнечной энергии в экосистемах в работу, теплоту или потенциальную энергию химических веществ пищи, мы указали на то, что первое начало термодинамики позволяет понять закон Либиха и такие экологические процессы, как биоаккумуляция и биомагнифика-ция. Прокомментируем эти положения.
Первое начало термодинамики свидетельствует о том, что если некий элемент, необходимый для роста биомассы, израсходован в экосистеме, то он не может быть воссоздан внутри нее, а должен быть добавлен из окружающей среды: «...борьба за выживание есть прежде всего борьба за свободную энергию» (Эбелинг и др., 2001, с. 76).
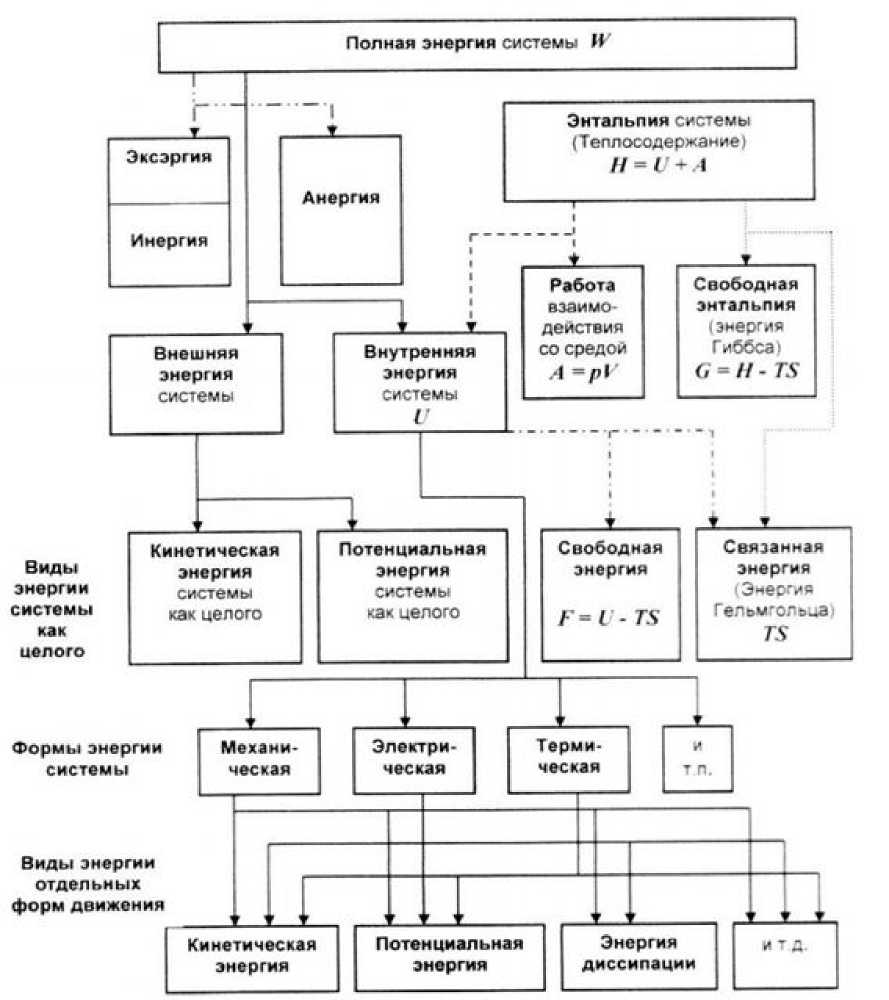
Рис. 2. Классификация понятий, связанных с энергией (Коган, 2007, с. 3)
Fig. 2. Classification of energy-related concepts (Kogan, 2007, p. 3)
В табл. 2 приведены средние концентрации химических элементов для пресноводных растений (Wetzel, 1983; Jørgensen, 2012, р. 18). Например, концентрация фосфора (на влажный вес) составляет 0.08 %; если содержание сухого вещества равно 10 %, то средняя концентрация фосфора будет 0.8 %. Содержание фосфора во многих пресноводных растениях колеблется от 0.4 до 2.0 % (на сухой вес). Это означает, что при отсутствии в экосистеме фосфора и достижения растением минимально возможного процента содержания фосфора (0.4 %) рост растения должен прекратиться. Окружающая среда редко имеет точно тот химический состав, который необходим для роста конкретного вида растения; это означает, что элемент, находящийся в наименьшем количестве по сравнению с потребностями, и определяет пределы роста. А это – классическая форму- лировка закона минимума Либиха.
Для описания процессов биоаккумуляции и биомагнификации рекомендуется использовать специализированный продукт программирования STELLA ( S ystems T hinking, E xperimental L earning La boratory; (Richmond, 1985; Costanza, 1987)), который в чем-то близок и развивает язык программирования сложных систем DYNAMO, предложенный в 60-х годах прошлого столетия Дж. Форрестером (1978). Язык STELLA позволяет строить потоковые диаграммы в полном соответствии с первым началом термодинамики. Например, С. Йоргенсен (Jørgensen, 2012, р. 22–27) иллюстрирует эти процессы на примере гипотетической трофической цепочки из четырех уровней и процесса накопления ДДТ в трофической пирамиде морской экосистемы.
Таблица 2. Средний элементный состав пресноводных растений (влажный вес; (Wetzel, 1983))
|
Элемент |
Содержание в растении (%) |
|
Кислород |
80.5 |
|
Водород |
9.7 |
|
Углерод |
6.5 |
|
Кремний |
1.3 |
|
Азот |
0.7 |
|
Кальций |
0.4 |
|
Калий |
0.3 |
|
Фосфор |
0.08 |
|
Магний |
0.07 |
|
Сера |
0.06 |
|
Хлор |
0.06 |
|
Натрий |
0.04 |
|
Железо |
0.02 |
|
Бор |
0.001 |
|
Марганец |
0.0007 |
|
Цинк |
0.0003 |
|
Медь |
0.0001 |
|
Молибден |
0.00005 |
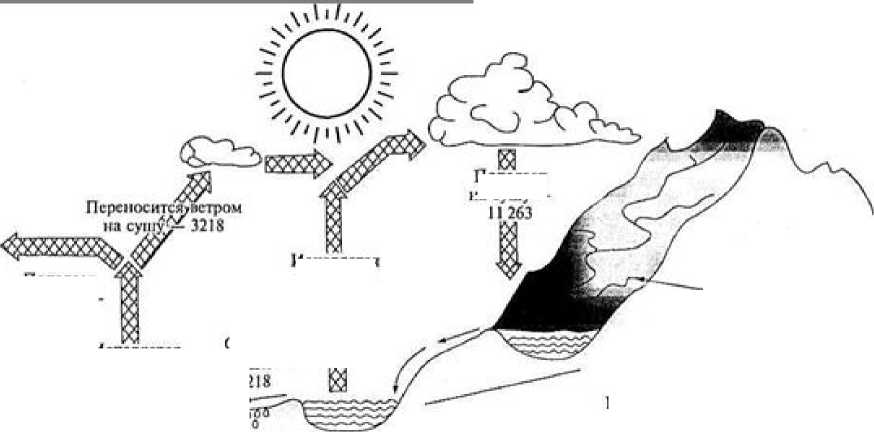
Наконец, последний пример аддитивных балансов в рамках первого начала термодинамики – круговороты вещества и энергии в природе. На рис. 3 (без комментариев) приведена схема глобального круговорота воды в течение суток. Заметим только, что движущей силой глобального круговорота воды служит солнечная энергия, вызыва- ющая испарение с поверхности океанов и суши. Основной источник поступления влаги в атмосферу (85 %) – поверхность Мирового океана, а с поверхности суши поступает около 14 %. В процессе круговорота вода может переходить из одного агрегатного состояния в другое.
Земная атмосфера — 4 987 900
Вся вода на поверхности суши — 88977,7
Почтенная мага и просачивающаяся иода — 25744
Грунтовые воды до глубины 800 м — 1609 000
Часть грунтовых вод просачивается в океан
Оксаны покрывают 71 % земной поверхности
Влага почвы
Инфильтрации полол- *** няст запасы грунтовых вол
Попадает в оксаны — 33789
Испаряется из океанов — 37007
—“~ Ручьи и реки — 482,7
Пресноводные озера — 48270 Соленые озера и внутренние моря — 40225
Зеркало грунтовых
*** вол *•*
Испаряется с суши — од*
Стекает с суши — 32
В оксанах-510 000 000
Попадает на сушу —
Грунтовые иолы ниже 800 м - 1609000*** Вся материковая иола — 3 332 721,7 Ледники и айсберги — 11263 000
Мировой запас воды —
524 048 711

Рис. 3. Мировой объем круговорота воды за день, км3 (Селиверстов, Бобков, 2004, с. 143)
Что касается скорости такого круговорота, рекомендуем прочитать о «путешествии» капли воды в романе одного из крупнейших литераторов эмиграции И. Ф. Наживина «Перун», изданном почти 100 лет тому назад в Париже (Наживин, 1927, с. 143–148; Петров, 1999, с. 346–348).
Второе начало термодинамики задает ограничения на направление процессов, которые могут происходить в термодинамических системах. В формулировке постулата Клаузиуса этот закон звучит так: теплота не может самопроизвольно переходить от тела, менее нагретого, к телу более нагретому. Следствие из второго начала термодинамики позволяет ввести для термодинамических систем еще одну функцию термодинамического состояния, названную энтропией (определяет меру необратимого рассеивания [бесполезности] энергии).1 Термодинамическая энтропия обычно применяется для описания равновесных (обратимых) процессов.
Таким образом, важнейшая термодина- мическая характеристика организмов, экосистем и биосферы в целом – способность создавать и поддерживать высокую степень внутренней упорядоченности, т. е. состояние с низкой энтропией, - достигается постоянным рассеиванием легко используемой энергии (свет, пища) и превращением ее в энергию, используемую с трудом (тепловую). Эффективность (КПД) природных систем ниже КПД разного рода двигателей. В живых системах много «горючего» уходит на «ремонт», что не учитывается при расчете КПД двигателей. Любое повышение эффективности экосистем ведет к увеличению затрат на их поддержание. Экологическая система - это «машина», из которой невозможно «выжать» больше, чем она может дать; всегда наступает предел, после которого выигрыш от роста эффективности сводится к нулю ростом расходов и риском разрушения экосистемы.
Второе начало термодинамики (с множеством формулировок и смысловых оттенков) играет для простых свойств экологических систем весьма значимую роль (Реймерс, 1994). Во-первых, энергетические процессы могут идти самопроизвольно только при условии перехода энергии из концентрированной формы в рассеянную. Во-вторых, потери энергии в виде недоступного для ис- пользования тепла всегда приводят к невозможности стопроцентного перехода одного вида энергии (кинетической) в другую (потенциальную), и наоборот.
Проявлением второго закона термодинамики в экологии является закон пирамиды энергий или правило 10 % (сформулирован независимо друг от друга В. В. Станчинским (в 1931 г.) и Р. Линдеманом (в 1942 г.)) – поток энергии, проходя через трофические уровни биоценоза, постепенно гасится, причем с одного трофического уровня экологической пирамиды переходит на другой, более высокий ее уровень в среднем около 10 % поступившей на предыдущий уровень экологической пирамиды энергии (Реймерс, 1994). Обратный поток, связанный с потреблением веществ и продуцируемым верхним уровнем экологической пирамиды энергии, намного слабее (часто не более 0.2–0.5 % от общего ее потока), поэтому говорить о круговороте энергии в биоценозах не приходится.
В-третьих, еще одна формулировка второго начала термодинамики звучит так: в замкнутой (изолированной в тепловом и механическом отношении) системе энтропия (степень упорядоченности) либо остается неизменной (если в системе протекают обратимые, равновесные процессы), либо возрастает (при неравновесных процессах) и в состоянии равновесия достигает максимума. В открытых системах , к которым относятся и экосистемы, согласно теореме сохранения упорядоченности в них ( теорема Пригожина ), энтропия не возрастает, а падает до тех пор, пока не достигнет постоянной величины, всегда большей нуля. Деятельность живых систем всегда негэнтропийна , пока сохраняется их свойство системности, т. е. отличительной особенностью живых организмов, экосистем и биосферы в целом является способность создавать и поддерживать высокую степень внутренней упорядоченности, т. е. состояние низкой энтропии (и это при том, что в экосистемах биомасса распределяется неравномерно и организуется таким образом, что местами энтропия возрастает, а в других местах резко снижается). Все системы, с которыми приходится иметь дело экологии, негэнтропийны, упорядочены таким образом, что, по меткому выражению Ю. Одума (1986, т. 1, с. 105), как бы «откачивают из сообщества неупорядоченность».
С теоремой Пригожина связана теорема (афоризм) Шрёдингера (1944 г.): упоря- доченность организма (особи) выше, чем окружающей его среды, и организм отдает в эту среду больше неупорядоченности, чем получает («отрицательная энтропия – это то, чем организм питается» (Шрёдингер, 1972, c. 74)):
cigS - d,S = ~S. при d,S > dgS.
где dеS – внутренняя энтропия, diS – внешняя энтропия, S выступает как мера упорядоченности (Реймерс, 1994).
Сходный, «уточняющий» характер теоремы Шрёдингера и общетермодинамических закономерностей носят и ряд других теорем и принципов термодинамики:
-
• теорема (афоризм) Хаасе (1963 г. (Rolf Haase; 1918–1997)): организм «питается» положительной энтропией, т. е. энергетическая ценность пищи выше, чем этот же показатель продуктов диссимиляции; таким образом, организм существует до тех пор и постольку, поскольку имеет положительный энергетический баланс;
-
• теорема Атлана (1968 г.; Henri Atlan; г. р. 1931): организм «питается» не только отрицательной энтропией, но и «шумом» (Atlan, 1968). Часть информации, содержащейся в пище, в ходе ассимиляции неизбежно теряется;
-
• теорема Бриллюэна (1956 г.; Léon Nicolas Brillouin; 1889–1969): энтропия отходов больше энтропии пищи (по сути дела и по содержанию это повторение теоремы Шрёдингера:
Sns — ^ab = S* еСЛИ Sab ^ S»^
где Sns – энтропия пищи, a Sab – энтропия продуктов диссимиляции). Например, молекулярное строение травянистых растений, которыми питается животное, более организованно, чем экскременты (Brillouin, Parodi, 1956);
-
• принцип Ле Шателье – Брауна (Henri Louis Le Chatelier; 1850–1936; Karl Ferdinand Braun; 1850–1918): при внешнем воздействии, выводящем систему из состояния устойчивого равновесия, это равновесие смещается в том направлении, при котором эффект внешнего воздействия ослабевает. «Все системы, с которыми приходится иметь дело экологии, негэнтропийны, упорядочены таким образом, что, по известному меткому выражению Ю. Одума, как бы «откачивают из сообщества неупорядоченность». Это происходит до тех пор и постольку, поскольку действует принцип Ле Шателье – Брауна <…> Поскольку в биосфере механизм осу-
ществления принципа Ле Шателье – Брауна основывается на функционировании систем живого, оно, это функционирование, как постулировал В. И. Вернадский, служит основным регулятором общеземных процессов» (Реймерс, 1994, с. 55). В настоящее время отмечается нарушение этого принципа в рамках биосферы. Если в конце прошлого века еще происходило увеличение биологической продуктивности и биомассы в ответ на возрастание концентрации углекислого газа в атмосфере, то с начала нашего века это явление не обнаруживается. Наоборот, биота выбрасывает углекислый газ, а биомасса ее автоматически снижается;
-
• эмпирическое термодинамическое правило Вант-Гоффа – Аррениуса (Jacobus Henricus (Henry) van ‘t Hoff; 1852–1911; Svante August Arrhenius; 1859–1927) в биолого-экологической модификации гласит, что подъем температуры на 10 °С (обычно в температурном интервале от 0 °C до 100 °C) приводит к 2–4-х кратному ускорению химических процессов. Фактически обмен веществ в одних случаях усиливается многократно (до 7–8 раз), а в других повышение температуры его замедляет. Экологический эффект глобального повышения температуры на 10 °С довольно трудно предсказуем – скорее всего, изменение температуры в таком размере катастрофично. Среднеглобальная температура атмосферы у поверхности Земли около 15 °С; за последний 1 млн лет она изменялась в пределах 10–17 °С. При изменении среднеглобальной температуры на 10 °С (ниже 5 и выше 25 °С) биота как бы сама себя «съест», т. к. процессы обмена веществ, усиливаясь, приведут не к сопротивлению изменениям в окружающей среде, а к быстрой самоде-струкции биосферы (нарушен в т. ч. принцип Ле Шателье – Брауна ) (Реймерс, 1994);
-
• правило поверхностей . Правило, сформулированное независимо друг от друга Ш. Рише (1899 г.; Charles Robert Richet; 1850–1935) и М. Рубнером (1902 г.; Мax Rubner; 1854–1932), гласит: отношение продуцируемого тепла к единице поверхности тела большинства гомойотермных животных выражается приблизительно одинаковыми величинами (порядка 1000 ккал/[м2 сутки]; для человека это порядка 850–1250 ккал). Эмпирически доказано, что средняя величина теплопродукции, которую можно оценивать по количеству потребляемого кислорода, связана с величиной теплоотдачи; последняя тем больше, чем меньше животное. В связи с тем что масса (объем) растет пропорцио-
- нально кубу, а поверхность – лишь квадрату поперечника (диаметра), у мелких животных на единицу массы приходится относительно большая поверхность, нежели у крупных. В связи с этим относительная отдача тепла в окружающую среду мелкими животными выше, что и компенсируется увеличенной теплопродукцией. Это правило существенно углубляет закономерность, формулируемую для теплокровных животных в виде правила Вант-Гоффа – Аррениуса;
-
• правило Бергмана (1847 г.; Carl Georg Lucas Christian Bergmann; 1814–1865). В экологии и биогеографии правило поверхностей связывают с правилом Бергмана: среди сходных форм гомойотермных (теплокровных) животных наиболее крупными являются те, которые живут в условиях более холодного климата (в высоких широтах или в горах). Если существуют близкие виды (например, виды одного рода), которые существенно не отличаются по характеру питания и образу жизни, то более крупные виды также встречаются в условиях более сурового (холодного) климата (например, амурская форма тигра с Дальнего Востока крупнее суматранской из Индонезии; северные подвиды волка в среднем крупнее южных).
Итак, с физической точки зрения энтропия ( S ; основная функция термодинамического состояния в рамках второго начала термодинамики) характеризует степень необратимости ( принцип необратимости 2), неиде-альности реального термодинамического процесса. Она является мерой диссипации (рассеивания) энергии, а также мерой оценки энергии в плане ее пригодности (или эффективности) использования для превращения теплоты в работу. В отличие от первого начала термодинамики, носящего абсолютный характер, второе имеет статистический, «т. е. увеличение энтропии в необратимых процессах отражает лишь наиболее вероятное их направление. Этот закон соблюдается наиболее точно для макроскопических систем с большим количеством молекул ( объектов. – Авторы ), где вероятности отклонения от среднестатического их распределения в объеме системы крайне малы» (Рубин, 1984, с. 63). Связь первого и второго начал термодинамики записывается следующим образом:
dS > ЬН/ T= (ДЖ- ДЛ) / Г, где Т – температура процесса (нулевое начало термодинамики). Выражение свидетельствует о том, что в изолированной системе энтропия остается неизменной в равновесных процессах и возрастает – в неравновесных.
Заключение
Таким образом, нулевой постулат («минус первое» начало) позволяет ввести некото- рую функцию состояния системы, обладающую свойствами эмпирической температуры; первый – постоянство общей энергии изолированной системы; второй – энтропию. Все это задает полный набор величин, необходимых для математического описания термодинамических процессов. Другие начала термодинамики в приложении к экологии рассмотрим в следующих статьях.
