
Динамика живого напочвенного покрова в среднетаёжных лиственных насаждениях за 15-летний период
Журнал: Resources and Technology @rt-petrsu
Рубрика: Полная статья
Статья в выпуске: 2 т.23, 2026 года.
Бесплатный доступ
В статье приведены результаты оценки надземной фитомассы растений и структуры живого напочвенного покрова (ЖНП) за 15-летний период в среднетаёжных разновозрастных лиственных фитоценозах послерубочного происхождения Республики Коми. Проведены геоботанические описания по стандартным методикам, определены видовой состав и фитомасса ЖНП методом укоса на площадках размером 400 см2 в 10—20-кратной повторности в берёзово-еловом и осиново-берёзовом насаждениях, формирующихся на еловых вырубках. Цель работы состояла в оценке динамики запасов фитомассы растений ЖНП в лиственных фитоценозах, сформировавшихся после рубки ельников, за 15-летний период. Выявлено, что общее количество видов растений, произрастающих в исследуемых фитоценозах, составляет 47, в т. ч. 38 видов растений напочвенного покрова, с общим проективным покрытием от 60 до 100 %. Установлено, что за 15 лет в берёзово-еловом насаждении фитомасса ЖНП варьировала от 1956 до 2263 кг/га, в осиново-берёзовом — от 834 до 952 кг/га. Показано, что по массе в напочвенном покрове доминируют травы и мхи, при этом фитомасса растений ЖНП обоих фитоценозов имеет тенденцию к уменьшению доли участия мхов. Установлено, что в осиново-берёзовом насаждении доля трав за 15-летний период увеличилась с 30 до 50 %, кустарничков — с 15 до 26 %, а мхов снизилась с 55 до 24 % от общей массы. Динамика фитомассы ЖНП в берёзово-еловом насаждении неоднозначна: к 20-летнему возрасту доля трав снизилась с 28 до 20 %, мхов увеличилась с 57 до 66 %, кустарничков практически не изменилась, в последующие 5 лет, по мере завершения смыкания крон в древостое, масса травянистых растений увеличилась до 29 %, кустарничков — до 20 %, а мхов снизилась до 52 %. Оценка изменчивости этого показателя в пределах исследуемых фитоценозов показала относительно равномерное распределение фитомассы мхов и кустарничков в берёзово-еловом молодняке в 2005 г. и увеличение их вариативности через 15 лет; в осиново-берёзовом насаждении за этот период наблюдалось снижение вариабельности. Использование результатов исследований возможно при оценке процессов восстановления естественной структуры ЖНП при послерубочной сукцессии и запасов углерода в растениях напочвенного покрова среднетаёжных лиственных фитоценозов.
Короткий адрес: https://sciup.org/147254491
IDS: 147254491 | УДК: 630*182.47 | DOI: 10.15393/j2.art.2026.9283
Dynamics of ground vegetation in middle taiga deciduous stands over a 15-year period
The article presents the results of an assessment of the phytomass of plants and the structure of forest live cover over a 15-year period in the middle taiga deciduous ecosystems of different ages of the post-harvest origin of the Komi Republic. Geobotanical descriptions were conducted using standard methods, and the species composition and phytomass of ground vegetation were determined using mowing methods in 400 cm² plots in 10—20 replicates in birch-spruce and aspen-birch stands formed in spruce clearings. The aim of the study was to assess the dynamics of the phytomass reserves of ground vegetation in deciduous phytomass communities formed after spruce logging over a 15-year period. It was found that the total number of plant species growing in the studied forest was 47, including 38 plant species of ground vegetation, with a total projective coverage from 60 to 100 %. It was found that over 15 years in birch-spruce forest, the phytomass of ground vegetation ranged from 1956 to 2263 kg/ha, in aspen-birch — from 834 to 952 kg/ha. It has been shown that grasses and mosses dominated in the ground vegetation by weight. The phytomass of ground vegetation plants of both phytocenoses tended to decrease the proportion of mosses. In the aspen-birch forest, the proportion of grasses increased from 30 to 50 % over a 15-year period, shrubs — from 15 to 26 %, and mosses decreased from 55 to 24 % of the total mass. The dynamics of phytomass ground vegetation in birch-spruce forest was ambiguous. By the age of 20, the proportion of grasses decreased from 28 to 20 %, mosses increased from 57 to 66 %, shrubs remained virtually unchanged, over the next 5 years, as the crowns closed in the stand, the mass of herbaceous plants increased to 29 %, shrubs to 20, and mosses decreased to 52 %. The number of shrubs increased to 20, and the number of mosses decreased to 52 %. An assessment of the variability of this indicator within the studied phytocenoses showed a relatively uniform distribution of the phytomass of mosses and shrubs in birch-spruce young trees in 2005 and an increase in their variability after 15 years. During this period, a decrease in variability was observed in the aspen-birch forest. The research results might be used to assess the processes of restoring the natural structure of the forest live cover during post-harvest succession and carbon reserves in plants of the ground vegetation of the middle taiga deciduous forests.
Текст научной статьи Динамика живого напочвенного покрова в среднетаёжных лиственных насаждениях за 15-летний период
Особенностью северных лесов стало формирование лиственных и смешанных лиственнохвойных насаждений на месте вырубок. Естественное лесовозобновление после рубок оказывает существенное влияние на состав, структуру и фитомассу растений древесного яруса и напочвенного покрова. При рубке происходит значительная трансформация состава и структуры растительных сообществ [11]. Изменение видового богатства и роли доминирующих и функциональных групп растений оказывает влияние на экосистемные процессы [14]. Формирование видового состава напочвенного покрова на месте рубки происходит под влиянием многих факторов, в т. ч. климатических, почвенных и биотических [5]. По сравнению с исходным фитоценозом, в процессе сукцессионного развития лесных экосистем послерубочного происхождения происходит потеря их естественной структуры, которая включает в т. ч. изменение видового состава и соотношение ценотических групп растений живого напочвенного покрова [4], [3]. На территории Республики Коми смена пород в процессе проведения лесозаготовительных работ приводит к изменению видового состава лесных фитоценозов; при этом численность видов в послерубочных лиственных насаждениях, по сравнению с еловыми, в 1,5—2 раза выше, в основном за счёт травянистых многолетников [4].
Растения живого напочвенного покрова можно использовать в качестве индикатора при анализе последствий изменения климата, усиления антропогенной нагрузки на лесные экосистемы, изучении вопросов сохранения биоразнообразия и устойчивости наземных экосистем к катастрофическим природным и антропогенным воздействиям [13], [12].
Оценки фитомассы живого напочвенного покрова в таёжных лесах при послерубочных сукцессиях в условиях средней тайги Республики Коми немногочисленны [15], [2]. В данных работах показано увеличение фитомассы ЖНП на еловых вырубках в 1,7—2,5 раза, сосновых — в 1,9—2,4 раза, по сравнению с исходными лесными фитоценозами. Исследования, изучающие длительные временн ы е изменения растений ЖНП в послерубочных лесных экосистемах в исследуемом регионе, отсутствуют, что является новизной этой работы. Цель работы состояла в оценке динамики запасов фитомассы растений ЖНП в лиственных фитоценозах, сформировавшихся после рубки ельников, за 15-летний период.
2. Материалы и методы
Изучение лиственных насаждений проводилось в период с 2005 по 2020 г. на территории Железнодорожного лесничества, расположенного в Княжпогостском районе Республики Коми (РК) (62°19' с. ш. 50°55' в. д.). Объекты исследования — берёзово-еловое насаждение разнотравного типа (6Б4Еед.С ед.Ос) (возраст в 2005 г. 12 лет) и осиново-берёзовое насаждение чернично-разнотравного типа (6Ос3Б1Е ед.Пх) (возраст в 2005 г. 40 лет). Почвы — торфянисто-подзолисто-глееватые. Исследуемые насаждения развиваются на еловых вырубках. Исходные ельники относились к чернично-долгомошному и черничному типу, с составом древостоя 8Е2Б, подроста 10Е, возраст 150—190 лет, согласно данным Кылтовского участкового лесничества ГУ РК «Железнодорожное лесничество» [6]. На вырубке был оставлен еловый подрост. Более подробная характеристика древостоя представлена ранее [8]. Естественное лесовосстановление на территории Железнодорожного лесничества составляет 74,1 % в год, искусственное лесовосстановление — 3,9 %, комбинированное — 22 % в год от общего количества земель, нуждающихся в лесовосстановительных мероприятиях [6].
В лиственных насаждениях заложены шесть постоянных пробных площадей (ППП) размером 300 м2 каждая, на которых определены основные характеристики древостоев по общепринятой в лесной таксации методике. На каждой ППП определяли общее проективное покрытие (ОПП) растений травяно-кустарничкового и мохового ярусов. Для геоботанической характеристики ЖНП применяли общепринятую методику учёта растений на площадках размером 1 м2 и оценивали проективное покрытие каждого вида. Учёт массы надземных органов растений ЖНП проводили методом укоса на площадках размером 400 см2 в 10—20-кратной повторности [10]. Отобранные растительные образцы сушили при температуре 105 ºС до абсолютно сухого состояния и взвешивали на электронных весах с точностью 0,001 г. Статистическая обработка полученных данных включала определение средней арифметической, ошибки среднего и коэффициента вариации (CV).
3. Результаты
Общее количество видов растений, произрастающих в исследуемых фитоценозах, составляет 47, в т. ч. 38 видов растений напочвенного покрова. Напочвенный покров мозаичен. Исследуемые фитоценозы различаются между собой по видовому составу и количеству видов (таблица).
В берёзово-еловом насаждении древесный ярус представлен доминирующими берёзой (Betula pendula Roth., B. pubescens Ehrh.), елью (Picea Obovate Ledeb.), а также единичными экземплярами осины (Populus tremula L.), сосны (Pinus sylvestris L.) и пихты (Abies sibirica Ledeb.). Среди подлесочных пород преобладают ива козья (Salix caprea L.), ива филико-листная (S. Phylicifolia L.) и рябина (Sorbus aucuparia L.), единично встречаются шиповник иглистый (Rosa acicularis Lindl.) высотой до 0,5 м и жимолость Палласа (Lonicera pallasii L.) 0,6—1 м высотой. Подрост сформирован берёзой и доминирующей елью, разной высоты. Мозаичность напочвенного покрова берёзово-елового насаждения обусловлена расположением технологических элементов рубки на участке. На месте трелёвочных волоков, по сравнению с пасечными участками, более развит моховой покров, преимущественно из сфагновых мхов (Sphagnum capillifolium (Ehrh.) Hedw., Sphagnum girgensohnii Russow., S. Angustifolium (C. Jens ex Russ.) C. Jens) и кукушкиного льна (Polytrichum commune (Hedw.) Br.) с проективным покрытием (ПП) до 80 %. В травяно-кустарничковом ярусе (ТКЯ) пасечных участков преобладают черника (Vaccinium myrtilus L.), брусника (V. vitis-idaea L.), ситник (Juncus filiformis L.) и полевица тонкая (Agrostis tenuis Sibth.), в моховом покрове доминируют политриховые (Polytrichum commune Sch. et Gmb.), сфагновые (Sphagnum capillifolium (Ehrh.) Hedw., Sphagnum girgensohnii Russow., S. angustifolium (C. Jens ex Russ.) C. Jens.) и зелёные мхи (Hylocomium splendens (Hedw.) Br., Sch. et Gmb., Pleurozium schreberi (Brid.). Mitt.). В 2005 г. общее проективное покрытие (ОПП) напочвенного покрова составляло 95—100 %, из них трав — 30 %, кустарничков — 5 %, мхов — 65 %. В 2015 г. ОПП немного уменьшилось — до 90—95 %, при этом ПП мохового покрова составляло от 30 % на пасечных участках до 85 % на месте трелёвочных волоков, ТКЯ — от 10 до 55 %. К 2020 г. ОПП растений напочвенного покрова снизилось и составило 75—80 %, при этом доля кустарничков составила 15 %, трав — 25 %, мхов — 35 %.
В осиново-берёзовом насаждении древостой сформирован осиной, берёзой и елью, единично пихтой. Подлесок состоит из ивы козьей, рябины и единичных экземпляров шиповника иглистого и жимолости Палласа. В ТКЯ преобладают черника, брусника, кислица (Oxalis acetosella L.) , золотая розга ( Solidago virgaurea L.), костяника ( Rubus saxatilis L.) , сныть ( Aegopodium podagraria L . ) . Для исследуемого осиново-берёзового фитоценоза характерно неравномерное распределение мохового покрова, с доминированием политриховых, а на отдельных участках — сфагновых мхов. Общее проективное покрытие растений в 2005 г. составляло 60 %, в т. ч. ТКЯ — 50 %, мохового покрова — 10 %. В 2015 г. ОПП составило 70 %, при этом увеличивается проективное покрытие мхов. В 2020 г. ОПП растений напочвенного покрова составляет 60 %, в т. ч. ПП кустарничков — 15 %, трав — 30 %, мхов — 15 %.
С использованием коэффициента Жаккара (К ж ) определено видовое сходство между исследуемыми фитоценозами: в 2005 г. его значение составило 70 %, в 2015 г. — 80 %, в 2020 г. — 85 %. Значения показателя К ж указывают на высокую степень сходства между этими фитоценозами. Это связано с тем, что они имеют одинаковое происхождение (еловая вырубка) и похожий тип почв. Различие между ними определяется преимущественно отличием в возрасте и составе древостоев. За период исследований сходство между данными фитоценозами возрастает на 15 %, что обусловлено увеличением сомкнутости древостоя по мере роста берёзово-елового молодняка.
Фитомасса напочвенного покрова за 15 лет в берёзово-еловом насаждении изменялась от 1956 до 2263 кг/га, в осиново-берёзовом — от 834 до 952 кг/га (см. таблицу). Довольно близкие значения массы растений ЖНП приводятся для схожих лиственных фитоценозов средней тайги Вологодской области и Республики Карелия [9], [7]. Ельник черничный, расположенный в 12 км от исследуемых фитоценозов, накапливает в фитомассе ЖНП 1837 кг/га органического вещества [1], что довольно близко к исследуемому берёзовоеловому насаждению, но несколько выше, чем в осиново-берёзовом насаждении.
Таблица. Видовой состав и фитомасса растений напочвенного покрова в исследуемых лиственных насаждениях с 2005 по 2020 г., кг/га
Table. Species composition and phytomass of forest live cover plants in the studied deciduous stands from 2005 to 2020, kg/ha
|
Жизненная форма, вид |
Осиново-берёзовое насаждение |
Берёзово-еловое насаждение |
||||
|
2005 г. |
2015 г. |
2020 г. |
2005 г. |
2015 г. |
2020 г. |
|
|
Кустарнички |
||||||
|
Vaccinium vitis-idaea L. |
56,7 ± 3,4 |
43,5 ± 16,0 |
128,8 ± 4,0 |
99,4 ± 11,6 |
175,6 ± 11,5 |
143,4 ± 15,7 |
|
V. myrtillus L . |
70,8 ± 12,9 |
96,7 ± 7,4 |
29,1 ± 7,2 |
190,8 ± 20,0 |
141,5 ± 20,1 |
158,2 ± 35,3 |
|
Linnaea borealis L. |
11,3 ± 1,1 |
28,8 ± 2,3 |
61,5 ± 2,4 |
1,6 ± 0,2 |
24,9 ± 8,0 |
90,4 ± 4,5 |
|
Папоротники |
||||||
|
Dryopteris carthusiana (Vill.) H. P. Fuchs. |
11,2 ± 2,2 |
8,6 ± 1,9 |
12,7 ± 4,1 |
— |
— |
— |
|
Gymnocarpium dry-opteris (L.) Newman |
7,0 ± 1,5 |
12,4 ± 1,1 |
28,4 ± 5,2 |
5,0 ± 0,8 |
14,9 ± 2,0 |
21,5 ± 7,9 |
|
Хвощи и плауны |
||||||
|
Equisetum sylvaticum L. |
8,2 ± 1,9 |
8,0 ± 1,4 |
60,3 ± 8,6 |
17,2 ± 2,3 |
9,9 ± 3,1 |
89,8 ± 10,0 |
|
Diphasium comp-lanatum (L.) Rothm. |
— |
42,5 ± 3,1 |
80,0 ± 7,5 |
5,0 ± 0,8 |
24,9 ± 3,9 |
35,9 ± 9,7 |
|
Травы |
||||||
|
Agrostis tenuis Sibth. |
5,5 ± 0,9 |
4,2 ± 0,7 |
4,7 ± 0,2 |
133,5 ± 12,7 |
95,6 ± 10,5 |
70,1 ± 3,9 |
|
Juncus filiformis L. |
1,3 ± 0,1 |
0,8 ± 0,1 |
6,0 ± 1,2 |
44,2 ± 13,1 |
96,9±13,1 |
106,6 ± 39,4 |
|
Luzula pilosa (L.) Willd. |
7,6 ± 1,5 |
0,8 ± 0,1 |
2,5 ± 0,3 |
7,3 ± 0,6 |
12,4 ± 2,7 |
10,8 ± 1,9 |
|
Deschampsia caes-pitosa (L.) P. Beauv. |
14,2 ± 1,3 |
25,6 ± 3,8 |
12,5 ± 2,4 |
4,1 ± 0,8 |
54,0 ± 7,5 |
72,3 ± 10,6 |
|
Carex globularis L. |
10,6 ± 2,1 |
9,2 ± 1,9 |
8,1 ± 1,7 |
34,6 ± 5,8 |
15,7 ± 2,1 |
2,5 ± 0,4 |
|
Ranunculus propinquus C. A. Mey. |
— |
— |
— |
2,4 ± 0,3 |
— |
— |
|
Rubus saxatilis L. |
15,0 ± 1,7 |
22,2 ± 2,1 |
3,3 ± 0,4 |
37,2 ± 3,6 |
71,1 ± 3,7 |
85,0 ± 5,4 |
|
Oxalis acetosella L. |
23,1 ± 4,5 |
27,8 ± 2,2 |
— |
1,1 ± 0,1 |
0,1 ± 0,01 |
0,1 ± 0,01 |
|
Chamerion angus-tifolium (L.) Scop. |
18,2 ± 2,4 |
0,8 ± 0,1 |
0,5 ± 0,1 |
191,3 ± 18,7 |
37,4 ± 1,9 |
11,3 ± 4,8 |
|
Maianthemum bifolium (L.) F. W. Schmidt |
1,0 ± 0,1 |
0,8 ± 0,1 |
2,5 ± 0,1 |
0,1 ± 0,01 |
0,1 ± 0,01 |
2,5 ± 1,0 |
|
Angelica sylvestris L . |
12,5 ± 3,1 |
22,5 ± 1,8 |
18,7 ± 2,1 |
— |
— |
— |
|
Pyrola media Sw. |
30,4 ± 5,1 |
41,3 ± 4,4 |
55,7 ± 7,5 |
0,6 ± 0,1 |
2,5 ± 0,8 |
2,5 ± 1,0 |
|
Trientalis europaea L. |
7,3 ± 2,5 |
19,5 ± 1,4 |
27,3 ± 3,7 |
0,1 ± 0,01 |
23,1 ± 1,1 |
38,0 ± 3,2 |
|
Melampyrum sylvaticum L. |
3,8 ± 0,4 |
4,2 ± 0,7 |
3,2 ± 1,0 |
40,0 ± 1,9 |
38,0 ± 1,9 |
2,5 ± 0,1 |
|
Solidago virgaurea L. |
64,5 ± 7,5 |
88,3 ± 16,7 |
74,5 ± 12,8 |
21,4 ± 2,1 |
7,5 ± 1,4 |
2,5 ± 0,4 |
|
Crepis sibirica L. |
3,5 ± 0,8 |
— |
— |
— |
||
|
Hieracium umbellatum L. |
4,4 ± 0,7 |
3,2 ± 0,8 |
2,5 ± 0,6 |
— |
— |
— |
|
Cirsium heterophyllum (L.) Hill. |
10,8 ± 1,7 |
7,4 ± 1,2 |
8,7 ± 1,8 |
— |
— |
— |
|
Ortilia secunda (L.) House |
9,1 ± 1,5 |
8,2 ± 1,6 |
— |
— |
2,4 ± 0,8 |
2,5 ± 0,1 |
|
Geranium sylvaticum L. |
1,0 ± 0,2 |
0,8 ± 0,1 |
1,2 ± 0,1 |
— |
— |
— |
|
Aegopodium podagraria |
18,7 ± 2,2 |
22,5 ± 1,8 |
— |
— |
— |
— |
|
Chrysosplenium alternifolium L. |
5,1 ± 1,2 |
— |
— |
— |
— |
— |
|
Мхи |
||||||
|
Polytrichum commune Hedw. |
166,3 ± 17,1 |
162,5 ± 20,9 |
75,1 ± 16,7 |
433,8 ± 34,8 |
447,5 ± 34,8 |
180,2 ± 19,3 |
|
Pleurozium schreberi (Brid.) Mitt. |
35,0 ± 4,8 |
35,2 ± 3,5 |
17,5 ± 6,3 |
40,3 ± 1,6 |
49,9 ± 1,9 |
52,5 ± 2,1 |
|
Dicranum polysetum Sw. |
5,9 ± 0,3 |
12,8 ± 1,4 |
10,1 ± 2,0 |
11,1 ± 2,7 |
34,0 ± 6,7 |
91,9 ± 5,6 |
|
Hylocomium splendens (Hedw.) Br., Sch. et Gmb. |
111,9 ± 8,9 |
6,3 ± 1,8 |
13,5 ± 1,7 |
140,3 ± 16,0 |
113,6 ± 16,0 |
124,6 ± 41,0 |
|
Sphagnum girgensohnii Russow. |
141,2 ± 26,9 |
86,5 ± 19,2 |
65,7 ± 9,8 |
351,8 ± 108,8 |
529,3 ± 188,3 |
389,9 ± 127,7 |
|
Sphagnum capilli-folium (Ehrh.) Hedw. |
19,3 ± 2,8 |
15,1 ± 2,1 |
5,4 ± 0,7 |
73,2 ± 6,9 |
118,3 ± 12,7 |
102,1 ± 14,7 |
|
S. angustifolium (C. Jens ex Russ.) C. Jens |
39,1 ± 4,9 |
28,7 ± 3,2 |
12,7 ± 1,8 |
59,4 ± 6,1 |
79,4 ± 8,5 |
61,3 ± 7,3 |
|
Aulucomnium palustre (Hedw.) Schwaegr. |
0,2 ± 0,1 |
2,5 ± 1,0 |
1,0 ± 0,1 |
7,3 ± 1,3 |
40,0 ± 12,8 |
2,5 ± 0,1 |
|
Лишайники |
||||||
|
Peltigera aphthosa (L.) Willd |
— |
— |
— |
2,5 ± 0,1 |
2,5 ± 0,3 |
2,1 ± 0,2 |
|
ВСЕГО |
951,7 ± 117,2 |
900,2 ± 91,7 |
833,7 ± 244,0 |
1956,6 ± 314,7 |
2263,0 ± 312,7 |
1955,5 ± 112,4 |
Согласно представленным данным, масса растений напочвенного покрова исследуемых насаждений за 15-летний период варьировала (см. таблицу). В напочвенном покрове исследуемых фитоценозов по массе преобладают следующие виды: черника , щучка дернистая ( Deschampsia caespitosa (L.) P. Beauv) , полевица тонкая Agrostis tenuis Sibth., герань лесная ( Geranium sylvaticum L.), иван-чай ( Chamerion angustifolium (L.) Scop . ), марьянник лесной ( Melampyrum sylvaticum L.), золотая розга ( Solidago virgaurea L.) , бодяк разнолистный ( Cirsium heterofillum (L.) Hill.) , кукушкин лён, а также зелёные и сфагновые мхи.
В фитомассе растений напочвенного покрова исследуемых фитоценозов доля папоротников, хвощей и плаунов в среднем не превышает 5 %. На травянистые растения в осиновоберёзовом насаждении в 2005 г. приходилось около 30 %, кустарнички — 15 %, мхи — 55 % от общей массы растений напочвенного покрова (рисунок 1). За 15 лет доля мхов снизилась до 24 %, а кустарничков и трав увеличилась до 26 % и 50% соответственно.
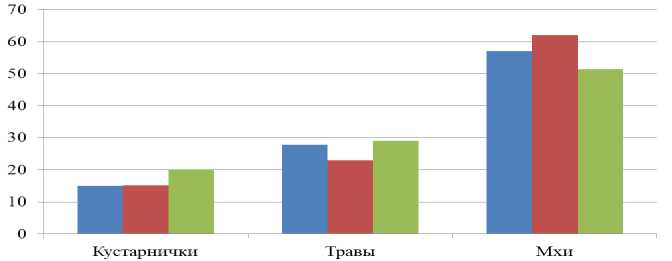
Динамика фитомассы в берёзово-еловом молодняке неоднозначна: в 2015 г., по сравнению с 2005 г., доля трав в общей фитомассе снизилась с 28 до 20 %, мхов — увеличилась с 57 до 66 %, кустарничков — практически не изменилась (рисунок 2). Однако за период
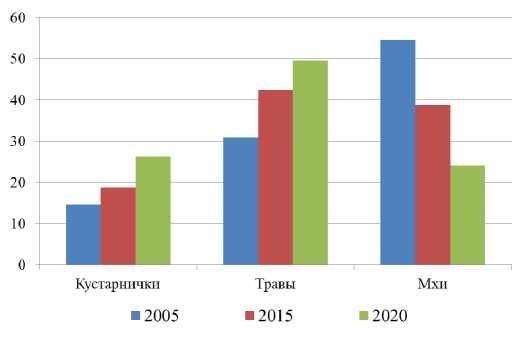
Рисунок 1. Динамика соотношения фитомассы кустарничков, трав и мхов в напочвенном покрове осиново-берёзового насаждения, % [рисунок авторов]
Figure 1. Dynamics of the ratio of phytomass of shrubs, grasses and mosses in the forest live cover of aspen-birch stands, % с 2015 по 2020 г., напротив, масса травянистых растений увеличилась до 29 %, кустарничков — до 20 %, а мхов снизилась до 52 %. Столь неоднозначная динамика связана с изменениями в развитии древостоя в процессе сукцессионного развития. В 2020 г. к 20-летнему возрасту данное насаждение переходит из стадии молодняка в стадию средневозрастного насаждения, что характеризуется завершением смыкания крон.
■ 2005 «2015 «2020
Рисунок 2. Динамика соотношения фитомассы кустарничков, трав и мхов в напочвенном покрове берёзово-елового насаждения, % [рисунок авторов]
Figure 2. Dynamics of the ratio of phytomass of shrubs, grasses and mosses in the forest live cover of a birch-spruce stand, %
По сравнению с исследуемыми фитоценозами для ельника черничного характерны значительное превалирование мхов (81,6 %) (преимущественно зелёных) и низкая доля участия трав (3,7 %) в фитомассе ЖНП [1].
4. Обсуждение и заключение
Согласно полученным данным, между показателями фитомассы ЖНП в разные годы существенных отличий нет, однако разница в массе отдельных видов и соотношении мхов, кустарничков и трав может быть довольно значительна (см. таблицу). Известно, что структура и видовой состав напочвенного покрова в процессе сукцессионной смены определяется типом рубки. Видовой состав ЖНП в лиственных молодняках, возникающих на месте вырубок, формируется индивидуально, и на него оказывает влияние большое количество факторов [3]. В процессе лесовосстановления на вырубках, в связи с изменением условий освещённости, количество зелёных мхов снижается, при этом одними из характерных видов-индикаторов, поселяющихся на вырубках, являются иван-чай и щучка дернистая [3], [4]. Согласно проведённым исследованиям, можно отметить относительно равномерное распределение фитомассы мхов и кустарничков в березово-еловом молодняке в 2005 г. (СV = 11 %) и увеличение их вариабельности через 15 лет (СV = 18—25 %). В осиновоберёзовом насаждении, наоборот, за 15 лет вариативность фитомассы ЖНП снижается. Вариабельность массы мхов обусловлена тем, что в процессе лесовосстановления на вырубках некоторые виды кукушкиного льна и сфагнума могут заменять зелёные мхи, доминирующие в ельниках до вырубки из-за того, что зелёные мхи менее устойчивы к изменению условий освещённости [1], [3]. Для еловых вырубок Архангельской области отмечается, что наиболее чувствительным к изменению условий местообитания среди зелёных мхов является Hylocomium splendens , обилие которого в первые годы после рубки в 3—4 раза ниже, через 10 лет — в 2 раза ниже, чем в исходном ельнике [3]. Согласно полученным результатам, в 2005 г. в фитомассе мхов доминируют политриховые и сфагновые мхи, однако уже в период с 2015 по 2020 г. доля зелёных мхов, таких как Plerozium schreberi и Hylocomium splendens , увеличивается, а кукушкиного льна и сфагновых мхов снижается (см. таблицу). Происходит это благодаря росту древостоя, увеличению его густоты и сомкнутости, а значит, изменению освещённости и созданию более благоприятных условий для роста зелёных мхов, которые плохо переносят увеличение освещённости на вырубках. Доля участия политриховых мхов в формировании фитомассы осиновоберёзового насаждения за 10-летний период (2005—2015 гг.) относительно стабильна, однако в последующие 5 лет (2015—2020 гг.) она снижается.
В настоящее время проводятся исследования по выявлению видов растений ЖНП, которые можно использовать в качестве индикатора изменения климата [13], [12]. Согласно полученным результатам, виды, которые можно было бы рассматривать как индикатор изменения климата, не выявлены.
Таким образом, проведённые исследования показали, что надземная фитомасса и структура травяно-кустарничкового и мохового ярусов в разновозрастных лиственных фитоценозах послерубочного происхождения за 15-летний период меняется. Фитомасса напочвенного покрова за 15 лет в берёзово-еловом насаждении варьировала от 1956 до 2263 кг/га, в осиново-берёзовом — от 834 до 952 кг/га. Выявлено, что растения ЖНП берёзово-елового молодняка аккумулируют в 2—3 раза больше фитомассы, чем осиново-берёзовое насаждение. За исследуемый период изменилось соотношение между массой кустарничков, трав и мхов, произошла трансформация в структуре надземной фитомассы, поменялась доля участия видов растений, при этом видовой состав остался относительно стабильным. Возросла доля участия зелёных мхов в фитомассе мохового яруса, что связано с изменением условий освещённости по мере роста древостоя и увеличения сомкнутости крон в исследуемых фитоценозах. Полученные данные могут быть использованы при оценке процессов восстановления естественной структуры ЖНП в ходе послерубочной сукцессии и запасов углерода в растениях напочвенного покрова среднетаёжных лиственных фитоценозов.
Исследование выполнено при финансовой поддержке средств федерального бюджета на выполнение государственного задания Института биологии Коми НЦ УрО РАН, тема «Cредообразующая роль и продуктивность лесных и болотных экосистем европейского северо-востока России» (№ 125020501547-8).
