
Генетические портреты региональных популяций якутов (по данным о полиморфизме Y-хромосомы)
Журнал: Археология, этнография и антропология Евразии @journal-aeae-ru
Рубрика: Антропология и палеогенетика
Статья в выпуске: 2 т.53, 2025 года.
Бесплатный доступ
Приводятся итоги сравнения основных этнолокальных групп якутов по SNP-гаплогруппам и STR-гаплотипам Y-хромосомы. Показано, что кластеры STR-гаплотипов в построенных филогенетических сетях доминирующей гаплогруппы N3a2 (N-M1982) соответствуют трем линиям: N-M1983, N-M1933, N-Y25011. Первая, широко распространенная по всей Якутии, прослежена у предполагаемых потомков легендарного первопредка якутов Эллэя (присутствует у половины современных якутских мужчин). Линия N-M1933 выявлена в ареале батулинцев – потомков легендарного первопредка Омогоя. Высокая частота ветви N-Y25011 в бассейне Вилюя отражает переселение туда якутов в XVII в. со средней Лены. При этом доминирование линий N-M1983 и N-Y25011 в северо-восточной его части меньше, чем в юго-западной. Установлено понижение частоты гаплогруппы N3a2 до 70 % у якутов на северо-востоке бассейна Вилюя, Якутии и Хабаровского края. Дана оценка возраста ближайшего общего предка якутов с гаплогруппой N3a2 (1 200 ± 480 лет), согласующаяся с данными палеоДНК. Изученные выборки якутов Якутии, Охотского побережья и сахаязычных эвенков формируют компактное «якутское» ядро в генетическом пространстве многомерного шкалирования Y-генофондов Сибири и Дальнего Востока. Доказано, что своеобразие этого ядра связано с высокой частотой гаплогруппы N3a2 (68–95 %), которая редка (0–21 %) у других народов Сибири (долган, нанайцев, негидальцев, нивхов, тувинцев, ульчей, эвенков, эвенов). Сделан вывод о согласованности региональных профилей Y-хромосомы с историческими сведениями об этногенезе якутов и их преданиями.
Короткий адрес: https://sciup.org/145147508
IDS: 145147508 | УДК: 575.1 | DOI: 10.17746/1563-0102.2025.53.2.144-154
Genetic Portraits of the Yakut Regional Populations (Based on Y-Chromosome Polymorphism Data)
We present data on SNP haplogroups and STR haplotypes of the Y-chromosome in main Yakut ethno-local populations. Clusters of STR haplotypes and median networks of principal haplogroup N3a2 (N-M1982) indicate three lines: N-M1983, N-M1933, and N-Y25011. The fi rst one, widely distributed throughout Yakutia and present in one half of Yakut males, marks the putative descendants of Elley, the legendary progenitor of the Yakuts. Line N-M1933 is found where descendants of another legendary progenitor, Omogoy, live. The N-Y25011 line is frequent in the Vilyuy basin, where the Yakuts had migrated from the Middle Lena in the 1600s. The predominance of lines N-M1983 and N-Y25011 is less marked in the northeastern part of this region than in the southwestern one. The frequency of haplogroup N3a2 drops to 70 % in the Yakuts of the northeastern Vilyuy basin, northeastern Yakutia, and northeastern Khabarovsk Territory. The estimated time to the most recent common ancestor of Yakuts, marked by the N3a2 haplogroup, 1200 ± 480 years, shows a fair agreement with aDNA data. Samples of the Yakuts from Yakutia and the Okhotsk coast and of Sakha-speaking Evenki reveal a compact “Yakut” core area in the multidimensional genetic space of the Y-gene pools of Siberia and the Far East. This core is marked by an elevated frequency (68–95 %) of the N3a2 haplogroup, which is rare (0–21 %) in other populations of Siberia (Dolgans, Nanais, Negidals, Nivkhs, Tuvans, Ulchi, Evenki, and Evens). Regional Y-chromosome profi les are consistent with historical data regarding Yakut origins and legends.
Текст научной статьи Генетические портреты региональных популяций якутов (по данным о полиморфизме Y-хромосомы)
Проблему происхождения якутов более 300 лет изучают историки, археологи, этнографы и лингвисты. В многочисленных исследованиях сформулированы версии, достигнут значительный прогресс в понимании этой проблемы, и все же окончательное решение не найдено. Поэтому данные популяционной генетики могут служить дополнительным источником при обсуждении вопросов происхождения и расселения якутов.
Русские первопроходцы, основавшие в 1632 г. Ленский (Якутский) острог, встретили ок. 28 тыс. якутов (самоназвание – саха) [Долгих, 1960, с. 542–544]. Хозяйственный уклад саха (северные скотоводы и коневоды) разительно отличался от уклада ближайших соседей, где основой жизни были оленеводство, охота, рыбалка и собирательство. Отличался и их язык, принадлежащий к тюркской языковой группе. Какие-либо письменные сведения о якутах до начала XVII в. не найдены, но устная народная традиция указывает имена предков-основателей саха – Эллэй Боотур и Омогой Баай [Ксенофонтов, 1977, с. 16–28]. Предками немногочисленных хоринских родов считаются старик Улуу Хоро и его родственники [История Якутии, 2020, т. I, с. 198].
К началу присоединения территории современной Якутии к Русскому государству (XVII в.) более 90 % якутов были сосредоточены в центральной ее части – в междуречье Лены и Алдана [История Якутии, 2021, т. II, с. 9]. За следующие два века они расселились на огромной территории: площадь Республики Саха (Якутия) составляет ок. 3 млн км 2 , а численность в ней якутов к 2021 г. достигла 470 тыс. чел., традиционно подразделяющихся на центральную, вилюйскую и северную группы [История Якутии, 2020, т. I, с. 251].
Одним из генетических инструментов, дающих возможность заглянуть вглубь веков, является комплексный анализ полиморфизма Y-хромосомы. Поскольку она находится в ядрах клеток только у мужчин, то практически отсутствует «перетасовка» гене- тического материала между родительскими геномами и значительная часть Y-хромосомы в неизменном виде передается в поколениях от отца к сыну. Редкие мутации, постепенно накапливаясь, порождают мировое генеалогическое древо Y-хромосомы, на котором геном каждого мужчины занимает свое место. Это древо возникает благодаря однонуклеотидным (SNP, single-nucleotide polymorphism) мутациям – взаимозаменам нуклеотидов. Его ветви различной толщины и древности отражены в строгой иерархической системе гаплогрупп разного уровня. Для исторических реконструкций широко используются и мутации другого типа – STR (short tandem repeat). STR-гаплотипы отличаются друг от друга разным числом повторов одних и тех же «мотивов» (сочетаний двух – шести нуклеотидов). Вероятность возникновения STR-мутаций (увеличения или уменьшения числа повторенных «мотивов») гораздо выше, чем однонуклеотидных. Подход к процессу мутаций как к «молекулярным часам» основан на математических моделях теории вероятностей и позволяет давать вероятностные оценки возраста генетических событий. Если скорость SNP-мутаций в «молекулярных часах» уподобить движению часовой стрелки, то скорость STR-мутаций будет близка к движению секундной стрелки. Использование обеих позволяет с той или иной точностью реконструировать время генетических событий.
Все исследования Y-генофонда якутов указывают на его яркую особенность – крайне малое разнообразие гаплогрупп Y-хромосомы: доминирование гапло-группы N-Tat [Zerjal et al., 1997; Пузырев и др., 2003], частота которой у якутов достигает 80–90 % [Tambets et al., 2004; Pakendorf et al., 2006; Харьков и др., 2008; Федорова, 2008, с. 139], с ярко выраженным эффектом основателя. Датировка ближайшего общего предка (TMRCA, time to most recent common ancestor) современных носителей этого варианта Y-хромосомы – ок. 1 300 л.н. [Адамов, 2022].
В ряде работ [Pakendorf et al., 2006; Федорова, 2008, с. 139–154; Федорова и др., 2014] исследовались основ- ные этнолокальные популяции якутов – центральная, вилюйская и северная. Выявлена близость первых двух, а также снижение частоты основной гаплогруп-пы N-Tat у северных якутов (ок. 70 %) по сравнению с центральными и вилюйскими (80–90 %).
Изучение палеоДНК по антропологическим материалам якутских погребений подтвердило преемственность и относительную стабильность линий Y-хромосомы на протяжении последних 400 лет [Федорова, Звенигороски, Алексеев, 2023]. Анализ 17-маркерных Y-STR-гаплотипов выявил в древней и современной популяциях якутов три доминирующих гаплотипа: самый частый Ht1 присутствует во всех группах; Ht2 распространен в центральной части Якутии; Ht3 преобладает в Вилюйском регионе.
После расшифровки полного генома человека и бурного развития технологий полногеномного секвенирования появились новые возможности в изучении генетической истории якутов [Poznik et al., 2013; Lippold et al., 2014; Karmin et al., 2015; Ilumäe et al., 2016]. Установлено, что линия N-M2019/M2118 возникла на филогенетическом дереве родительской гаплогруппы N-Tat ок. 6 200 л.н. [YFull..., 2023]. Якут-
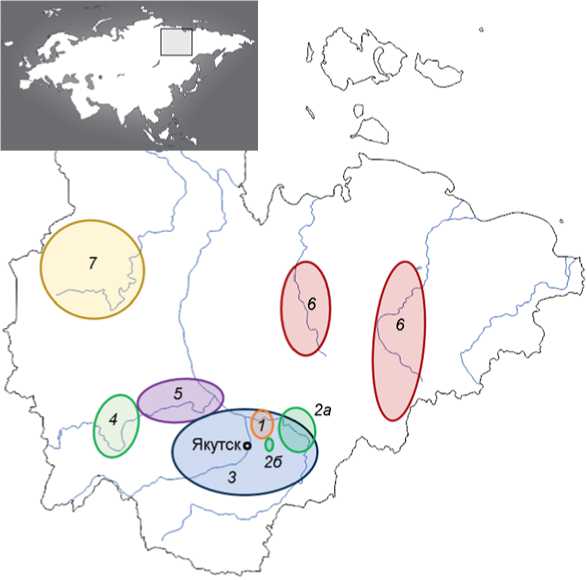
Рис. 1. Географическое положение анализируемых территориальных групп якутов.
1 – Усть-Алданский улус (по: [Харьков и др., 2008]); 2а – Таттинский и Томпонский улусы; 2б – села Толон и Чыаппара Чурапчинского улуса (по: [Karafet et al., 2018]);
3 – Центральная Якутия (по: [Thèves et al., 2010]); 4 – юго-запад бассейна Вилюя (по: [Zvénigorosky et al., 2020]); 5 – северо-восток бассейна Вилюя (по: [Xu et al., 2014]); 6 – Северо-Восточная Якутия (Верхоянский, Оймяконский, Момский, Абыйский улусы); 7 – оленекские сахаязычные эвенки.
ская линия N-M1982 отделилась от других ветвей гаплогруппы N-M2019/M2118 ок. 2 300 л.н. [Адамов, 2022]. Она делится на две неравные по частоте ветви: мажорную N-M1991 и минорную N-M1933 [Karmin et al., 2015]. Первая в свою очередь состоит из субветвей N-M1983 и N-Y25011 [Адамов, 2022].
Благодаря отчетливо выраженным корреляциям между ветвями N-M1983, N-Y25011, N-M1933 и сочетаниями гаплотипов в STR-локусах появляется возможность более детально исследовать различные территориальные популяции якутов [Там же]. Объединение данных об Y-хромосоме, полученных научными коллективами, с новыми собственными данными позволяет уточнить реконструкцию генетической истории якутов.
Материалы и методы
Изученные выборки. Для анализа были отобраны 758 Y-STR-гаплотипов якутских образцов из Якутии: 135 из собственных данных (далее – с.д.), 623 из публикаций других авторов. Для 561 образца (121 – с.д., 440 – из литературных данных) известно территориальное происхождение доноров (рис. 1). Группировка образцов по регионам зависела от объема выборки. Вилюйские якуты разделены на две территориальные группы: юго-запад бассейна Вилюя – 48 образцов (с.д.) из Сунтарского и Нюрбинского улусов; северо-восток бассейна Вилюя – 109 из Вилюйского, Верхне-вилюйского и Кобяйского улусов (17 с.д., 92 [Thèves et al., 2010]). Якуты СевероВосточной Якутии представлены 89 образцами: из Абыйского (3 с.д.), Верхоянского (1 с.д.), Момского (50 [Zvénigorosky et al., 2020]), Оймяконского (35 [Ibid.]) улусов. В группу Центральной Якутии включены 176 образцов из Усть-Алданского улуса (6 с.д., 108 [Харьков и др., 2008], 62 [Karafet et al., 2018]); 78 из Таттинского (6 с.д.), Томпонского (4 с.д.) улусов и запада Чурапчинского (41 [Thèves et al., 2010], 27 [Zvénigorosky et al., 2020]); 61 образец из других улусов (36 с.д., 25 [Xu et al., 2014]). Впервые представлены данные о 157 образцах: 135 из Якутии и 22 образцах якутов, проживающих на северо-востоке Хабаровского края. Образцы с.д. собирались после подписания добровольного информированного согласия на обследование, форма которого одобрена этическим комитетом Медико-генетического научного центра им. академика Н.П. Бочкова.
Выделение ДНК и генотипирование. ДНК из 153 образцов венозной крови выделена методом фенол-хлороформной экстракции с использованием протеиназы К. Генотипирование (фрагментный анализ) проведено на приборе ABI 3130xl (Applied Biosystems) с помощью набора Y-filer PCR Amplification Kit (Applied Biosystems) (17-локусная панель STR-маркеров Y-хромосомы). Четыре образца буккального эпителия генотипированы в коммерческой лаборатории FTDNA (12 STR-локусов).
Определение гаплогрупп. Для большинства использованных в работе образцов имелись сведения о Y-SNP-гаплогруппе с разной степенью детализации ее положения на Y-хромосомном древе гаплогрупп. Для 158 образцов, для которых были данные только о Y-STR-гаплотипах [Thèves et al., 2010; Xu et al., 2014], проведена предикция гаплогруппы по Y-STR-гап-лотипам. Гаплогруппы этих образцов устанавливались путем сопоставления с гаплотипами образцов из других работ, где гаплогруппы протестированы. В единичных случаях использовался онлайн предиктор Nevgen .
Многомерное шкалирование. Генетические расстояния Нея рассчитаны c помощью программы DJgenetic [Balanovsky et al., 2008] по данным о частоте встречаемости 13 Y-гаплогрупп: N3a2 (N-M2019/ M2118), C-M407, C-M48, C-M217(xM504, M407, M48), N-F4205, N-P43, N-M231(xM2019/M2118, F4205, P43), Q-M242, O-M175, I-M170, J-M304, R1a-M420, R1b-M343. В категорию «другие» объединены наиболее редкие гаплогруппы: С-M504, E1b1b1-M35.1, G1-M285, G2a-P15 и др. Матрица генетических расстояний Нея визуализирована методом многомерного шкалирования (MDS) в программе Statistica version 7.1.
Филогенетические сети. Для более детального анализа структуры якутской гаплогруппы N-M1982 построены филогенетические сети по принципу medianjoining (медианные сети) [Bandelt, Forster, Röhl, 1999] для 17-маркерных гаплотипов набора Y-filer. Вес каждого маркера принят равным 10, с параметром ε = 0. Медианные сети построены с помощью программы Network v.10.2.0.0 и визуализированы в программе Network Publisher v.2.1.2.5.
Число тандемных повторов в локусе DYS389B определяется как разность числа повторов локусов DYS389II и DYS389I. С высокой вероятностью линии N-M1991 соответствует 16 и более повторов в локусе DYS392, а N-M1933 – 15 (кластер Ht2) [Адамов, 2022]. Ветви N-M1983 и N-Y25011 в составе гаплогруппы N-M1991 разделяются по аллелям локуса DYS389B. В линии N-M1983 наблюдается 18 повторов и более (кластер Ht1). Для ветви N-Y25011 характерно 17 или 16 повторов (кластер Ht3). Вместе с тем некоторая часть гаплотипов DYS392 = 16 и DYS389B = 17 относится к линии N-M1983 вследствие возвратной мутации 18→17 [Там же]. Соотношение частот ветвей N-Y25011 и N-M1983 внутри кластера Ht3 пока неизвестно.
Результаты и обсуждение
Генофонды локальных популяций якутов по данным о совокупности Y-SNP-гаплогрупп
Среди 15 Y-SNP-гаплогрупп, обнаруженных у якутов (табл. 1), преобладает N-M1982 (85 %), включающая две основные ветви: N-M1991 (70 %) и N-M1933 (15 %). Это доминирование формирует особенности графиков многомерного шкалирования, построенных на основании матриц генетических расстояний Нея по всей совокупности гаплогрупп (табл. 2; рис. 2). Для сопоставимости данных из разных публикаций «якутская» гаплогруппа N-M1982 учтена в составе родительской N3a2 (другое обозначение N-M2019/M2118).
В контексте генофондов народов Дальнего Востока и Сибири четко выделяется якутский кластер (рис. 2), объединяющий всех якутов и сахаязычных эвенков (см. рис. 1). Это обусловлено высокой частотой гаплогруппы N3a2 (68–95 %), определившей их удаленность от других народов Сибири и Дальнего Востока (долганы, нанайцы, негидальцы, нивхи, тувинцы, ульчи, эвенки, эвены), у которых частота N3a2 варьирует от 0 до 21 % (в среднем 6 %). Величины генетических расстояний от усредненной якутской популяции (табл. 2) четко демонстрируют ее удаленность от других популяций. Наиболее близкими к якутам оказываются эвены [Duggan et al., 2013]. Но генетическое расстояния и до них ( d = 0,90) на порядок больше, чем в среднем между якутскими группами ( d = 0,01).
Расположение популяций в якутском кластере (см. рис. 2) указывает на преобладание вклада гаплогруппы N3a2 в формирование его структуры. В группах, отдалившихся от центра, частота этой гаплогруппы более низкая, чем в популяциях ядра, но она все равно остается мажорной: совокупный вклад других гаплогрупп не превышает 30 %. Са-хаязычные эвенки – единственная неякутская группа в якутском кластере – вошли в него благодаря высокой частоте N3a2, хотя в их генофонде присутствуют гаплогруппы, характерные для эвенков (C-M48, 15 %) и других популяций, соседствующих с якутами: N-P43 (6 %), R1a-M420 (6 %).
При анализе положения популяций в генетическом пространстве многомерного шкалирования все STR-гаплотипы якутской гаплогруппы N-M1982 учитывались как единое целое. Следующим шагом является более детальный анализ отдельных территориальных групп якутов с использованием данных о распространении в них разных STR-гаплотипов доминирующей гаплогруппы N-M1982.
Таблица 1. Частота гаплогрупп Y-хромосомы в региональных популяциях якутов, %
|
аияэюхо ‘эияонв>1И1Л1Лн-ос1Л-1Д1 ‘эияоив1Л1-онвв 1Ч1Алв |
СМ см II с |
°! 00 со |
см со" со |
от" ю |
° о" |
см со" |
от" |
ID |
1П |
со со т— |
ср со" |
от |
ID |
1 |
|||||||||||
|
wouah a (uniats) вхвэ nunngAuasd 1Я1Лхк |
со II с |
от S |
со от |
от от" со |
от о" in |
о от" |
о in" |
**1 LD |
1П |
см" |
id |
о" |
со см" |
in о" |
т— т— |
Ч о |
о |
О |
10 см" |
о |
|||||
|
[9002 ‘ IB I© popped] ихнэае Э1чнн1чеьехео эиюяэнэио |
со со II с |
см |
см" |
in in |
ю |
со" |
^ см |
со |
со" |
id т— |
in" |
со |
1 |
||||||||||||
|
[9002 ‘ IB I© popua>|Bd] эЛиЛ ииюнюх(109 ‘итЛяк xoiaoa-odaaag |
см со II с |
“1 00 |
LO со |
см со |
со" |
со" |
СО |
со |
1 |
||||||||||||||||
|
[БЮ2 ‘ |В )Э влозора^] итЛя^ xoiaoa-odaaag |
со со II с |
°! 00 со |
см со" со |
^ in" со |
о со" |
со со т— |
1П |
со о" |
1П |
со со т— |
1П |
со" |
о со" |
ID |
1 |
||||||||||
|
итЛя^ xoiaoa-odaaag |
о со II с |
от со |
о" со |
о" со |
см со" in |
in |
о от" |
от т— |
со" |
со in" |
со in" |
04 см" |
см см" |
т— т— |
04 см" |
Ч id |
т— т— |
||||||||
|
>s m |
[9002 ' |B)apopua>|Bd] |
со in II с |
°! 00 от |
см со" о |
00 т— |
1 |
|||||||||||||||||||
|
[£Ю2 ‘ IB )Э BAOJopad] |
ю II с |
°! от |
^ от |
^ со |
о |
00 т— |
со |
ID со |
1П со" |
00 т— |
оо т— |
1 |
|||||||||||||
|
ьсниид ениэоэед xoiooa-odaaeg |
со о II с |
со |
со" |
со от" in |
^ со |
со" см |
со со" |
ID |
со |
от о" |
со |
00 см" т— |
со |
от о" |
о" |
со |
00 т— |
со |
1 |
||||||
|
ымнид вниаээвд Bbube-ojq) |
со II с |
со от 00 |
со от" со |
in со |
со ю |
см" |
ч |
см" |
см" |
ч |
см" |
см" |
см" |
1 |
|||||||||||
|
[9002 ' |B)apopua>|Bd] |
in о II с |
“1 о от |
LO о" от |
т— |
о |
о |
см" |
см" |
см" |
см со |
1 |
||||||||||||||
|
К 1- (X к го ГО 1 0) =Г |
[£Ю2 ‘ IB )Э BAOJopaj] |
см о II с |
*4 S |
СО от |
со см" |
о см" |
**1 со |
см см" |
т— т— |
см см" |
ID со |
см см" |
|||||||||||||
|
1чэЛиЛ Э1чняив1ЭО |
со II с |
*4 СО 00 |
см LO со |
о |
п |
от см" см |
см со" |
со т— |
со |
ч со |
О) |
со |
со т— |
1 |
|||||||||||
|
вэЛиЛ ojoxaHHhUBdAh t/виве ‘1яэЛиЛ ИИХЭНОШЛЮ! ‘ИИЮНИ11В1 |
со II с |
со со от |
со со" от |
со in" со |
со со" со |
со см" |
ю |
со см" |
со см" |
со см" |
со |
со |
**1 т— |
1 |
|||||||||||
|
эЛиЛ иияэнвРиу-яюл |
со II с |
от со 00 |
° со" со |
см" со |
см со" со |
^ |
1П |
со |
со о" |
со" |
id |
со о" |
со" |
**1 см" |
1 |
||||||||||
|
1— ф го го" о го |
со т— см 2 от т© см 2 Z |
см со от 2 Z |
от от 2 Z |
со II СО от со со СО > Q |
II СО от со со СО > Q |
со со от 2 Z |
00 т— см 2 от т— о см 2 X т— со см 2 Z |
in о см Z |
со Z |
со" см 2 от о см 2 х^ со см 2 Z |
со in" о см |
см 2 6 |
о 1 О |
о in 2 О |
со 1 О |
О in 2 о 2 х^ см 2 О |
со |
о 2 |
О со 2 "О |
ю г о |
СМ СМ 2 С |
о см 2 га £ |
СО со 2 ь £ |
||
Таблица 2. Генетические расстояния популяций от суммарной выборки якутов
|
Сокращение |
Популяция |
Генетическое расстояние * |
Размер выборки |
|
Я-тотал-2 |
Якуты |
0,000 |
995 |
|
Я-тотал-1 |
Якуты Республики Саха (Якутия) в целом |
0,000 |
758 |
|
Я-центр |
Якуты Центральной Якутии |
0,000 |
502 |
|
Я-вил-FP |
Вилюйские якуты |
0,001 |
113 |
|
Я-вил-юз |
Якуты юго-запада бассейна Вилюя |
0,002 |
48 |
|
Я-св |
Якуты Северо-Восточной Якутии |
0,004 |
187 |
|
Я-вил-св |
Якуты северо-востока бассейна Вилюя |
0,006 |
109 |
|
Саха-эв |
Сахаязычные эвенки [Pakendorf et al., 2006] |
0,018 |
33 |
|
Охотские |
Охотские якуты |
0,023 |
22 |
|
Эвены-D |
Эвены [Duggan et al., 2013] |
0,893 |
89 |
|
Эвенки-байк |
Эвенки Забайкалья |
1,35 |
50 |
|
Эвенки-K |
Западные эвенки [Karafet et al., 2018] |
1,37 |
91 |
|
Эвенки-амур |
Эвенки Приамурья |
1,64 |
81 |
|
Долганы-K |
Долганы, Таймыр [Karafet et al., 2018] |
1,79 |
57 |
|
Ульчи |
Ульчи |
2,59 |
52 |
|
Тувинцы |
Тувинцы |
2,99 |
450 |
|
Эвенки-P |
Эвенки, Подкаменная Тунгуска [Pakendorf et al., 2006] |
3,12 |
40 |
|
Нанайцы |
Нанайцы |
3,15 |
267 |
|
Негидальцы |
Негидальцы |
3,22 |
14 |
|
Эвены-охот |
Эвены |
3,25 |
88 |
|
Нивхи |
Нивхи |
3,35 |
63 |
*Цветовая шкала отражает генетическую близость (зеленый) к якутам или отдаленность (красный) от них.
Измерение 2
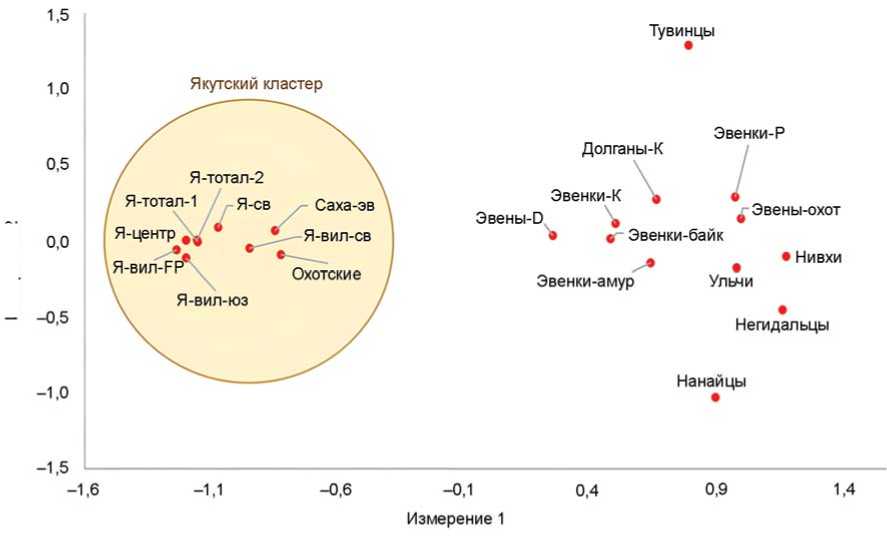
Рис. 2. Положение девяти объединенных групп якутов в генетическом пространстве популяций Сибири и Дальнего Востока (график многомерного шкалирования, коэффициент стресса 0,07, алиенации – 0,09).
Усл. обозн. см. табл. 2.
Генетическая история якутов по данным о STR-гаплотипах доминантной гаплогруппы N-M1982
Для построения медианных сетей были использованы 338 образцов гаплогруппы N-M1982, для которых известны тандемные повторы в 17 STR-локусах панели Y-filer. Расчет возраста ближайшего общего предка основных линий N-M1991 и N-M1933 гаплогруппы N-M1982 по STR-маркерам дает оценку 1 200 ± 480 лет. Поскольку эти линии молоды, STR-гаплотипы в них, как правило, совпадают, за исключением двух STR-локусов: DYS392 и DYS389B. На сводной медианной сети STR-гаплотипы N-M1982 отчетливо разделяются на три кластера: Ht1, Ht2 и Ht3 (рис. 3, а ; табл. 3).
C легендарным тюркоязычным предком якутов Эллэем [История Якутии, 2020, т. I, с. 174] условно связывают ветвь Ht1, которая наблюдается у половины современных якутов (см. табл. 1) [Адамов, 2022]. Гаплотип этой ветви был выявлен в древнем образце SS1 человека из погребения Сытыган Сихэ, предполагаемого потомка Тыгына Дархана [Zvénigorosky et al., 2020]. Последний, по преданиям, был прямым потомком Эллэя.
Центральная Якутия. Согласно легендам, второй предок якутов Омогой Баай, тесть Эллэя, был из племени батулинцев [История Якутии, 2020, т. I, с. 192]. Участник Второй Камчатской экспедиции Г.Ф. Миллер в 1736–1737 гг. записал сообщение якутского ша- мана Сотоя Трекина о составе этого племени: «бак-синцы, батулинцы, силангцы, игидейцы, джокдзохон-цы, торасинцы, орготы, байгантайцы» (цит. по: [Элерт, 2001, с. 112–113]). Наслеги, образованные из названий родов батулинцев, в настоящее время находятся в разных улусах Якутии, в т.ч. Чурапчинском, Таттинском, Томпонском (см. рис. 1). На западе Чурапчинского улуса граничат друг с другом Бахсытский (с. Толон) и Алагарский (с. Чыаппара) наслеги. Алагарский род в XVII–XVIII вв. входил в состав Сыланской волости [Долгих, 1960, с. 376]. Бахсытцы и сыланцы, по преданиям, являются потомками Омогоя [Апросимов, Попов, 2015, с. 38].
Высокая частота линии N-M1933 (ок. 58 %), наблюдаемая в Таттинском, Томпонском улусах и в западной части Чурапчинского, может указывать на вклад современных потомков родов боотулу (бату-линцев) в генофонд региона. Показательно, что и в антропологических материалах погребений XVII– XIX вв. в Жулейском, Баягинском наслегах, с. Ытык-Кюель (Киэн-Эбэ) Таттинского улуса доминирует гаплогруппа N-M1933 [Crubezy et al., 2010]. Из 12 древних STR-гаплотипов к кластеру Ht2 относятся 11. Преобладание ветви N-M1933 (Ht2) демонстрирует и медианная сеть 17-маркерных гаплотипов, построенная по образцам из указанных улусов (рис. 3, б ). Гаплотипы Ht3 в этих местах встречаются редко.
Большая группа улусов Центральной и Южной Якутии – Хангаласский, Мегино-Кангаласский, Гор-
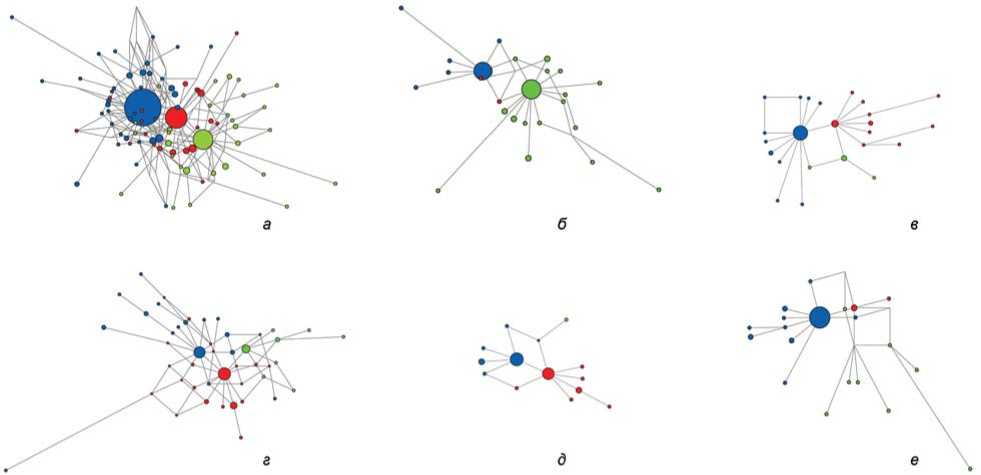
Рис. 3. Медианные сети STR-гаплотипов гаплогруппы N-M1982.
а – якутов в целом ( n = 338); б – Таттинского, Томпонского и запада Чурапчинского (Чыаппара, Толон) улусов ( n = 73); в – Центральной Якутии, кроме вышеназванных улусов ( n = 54); г – северо-востока бассейна Вилюя ( n = 80); д – юго-запада бассейна Вилюя ( n = 42);
е – Северо-Восточной Якутии ( n = 62).
Ветвь Ht1 (синий цвет) – гаплотипы N-M1991, DYS389B = 18; Ht3 (красный) – гаплотипы N-M1991, DYS389B = 17; ветвь Ht2 (зеленый) – гаплотипы N-M1933.
ный, Намский, восточная часть Чурапчинского, Амгин-ский, Олекминский, Алданский – представлена 61 образцом. Очевидно, требуется дальнейшее, более углубленное, изучение. На данном этапе распределение ветвей гаплогруппы N-M1982 этих образцов практически не отличается от общего якутского (см. табл. 1).
Соотношение современных гаплотипов Ht1 и Ht3 примерно 2,5 к 1. Доминирование ветви Ht1 отмечено и в древних якутских образцах: к ней относятся шесть из семи образцов якутов-мегинцев, восемь из десяти образцов из долины Эркээни в Хангаласском улусе [Keyser et al., 2015; Zvénigorosky et al., 2020], семь из девяти из погребений в восточной части Чурапчин-ского улуса [Crubézy et al., 2010].
Отдельную медианную сеть для якутов Усть-Ал-данского улуса нельзя построить из-за малого числа ( n = 5) 17-маркерных гаплотипов N-M1982. При этом высокая частота (68 %) гаплотипов кластера Ht1 согласуется с преданиями дюпсюнцев и борогонцев об их происхождении от легендарного предка Эллэя [Апросимов, Попов, 2015, с. 28, 31].
Объединенная медианная сеть гаплотипов якутов из других улусов Центральной Якутии (рис. 3, в ) демонстрирует сходство с общим якутским распределением (рис. 3, а ).
Бассейн Вилюя. У вилюйских якутов доминирует линия N-M1991. При этом частоты встречаемости 17 или 18 повторов в локусе DYS389B примерно одинаковы, что указывает на повышенную частоту именно ветви N-Y25011. Однако на северо-востоке бассейна Вилюя доминирование гаплогруппы N-M1991 менее выражено (ок. 60 %), чем у якутов, живущих выше по течению реки, в Нюрбинском и Сунтарском улусах (ок. 87 %). Такое распределение связано с тем, что в нижнем течении Вилюя к приходу русских первопроходцев жили различные роды «пеших якутов» неизвестного происхождения – кыргыдаи, кирикеи, онтулы, олесы и др. [Долгих, 1960, с. 462–469]. В результате массового переселения в XVII–XVIII вв. различных популяций из Центральной Якутии часть местных тунгусских родов перешла на скотоводство и была ассимилирована.
Предком части наслегов северо-востока бассейна Вилюя, по преданиям, считается Омогой Баай [Апро-симов, Попов, 2015, с. 50–58]. Батулинцы (боотулу) встречаются среди вилюйских и северных якутов [Ушницкий, 2015]. По-видимому, с этим связано наличие в выборке образцов гаплогруппы N-M1933 (14 %). Медианная сеть гаплотипов N-M1982 для северо-востока бассейна Вилюя (рис. 3, г ) демонстрирует минорную долю гаплотипов Ht2.
На территории современных Сунтарского, Нюр-бинского, Верхневилюйского улусов в XVII–XVIII вв. расселялись бордонцы, жарханцы и другие выходцы из Центральной Якутии, считавшие себя потомками
Таблица 3. Основные (модальные) 17-маркерные STR-гаплотипы образцов якутов с гаплогруппой N-M1982
|
Кластер |
Ht1 |
Ht2 |
Ht3 |
|
DYS19 |
14 |
14 |
14 |
|
DYS385a |
11 |
11 |
11 |
|
DYS385b |
13 |
13 |
13 |
|
DYS389I |
14 |
14 |
14 |
|
DYS389B |
18 |
17 |
17 |
|
DYS390 |
23 |
23 |
23 |
|
DYS391 |
11 |
11 |
11 |
|
DYS392 |
16 |
15 |
16 |
|
DYS393 |
14 |
14 |
14 |
|
DYS437 |
14 |
14 |
14 |
|
DYS438 |
11 |
11 |
11 |
|
DYS439 |
10 |
10 |
10 |
|
DYS448 |
19 |
19 |
19 |
|
DYS456 |
14 |
14 |
14 |
|
DYS458 |
16 |
16 |
16 |
|
DYS635 |
22 |
22 |
22 |
|
GATA H4 |
12 |
12 |
12 |
Эллэя [Парникова, 1971, с. 47–50, 60–61; Ушницкий, 2017; Петров, 2017]. На юго-западе бассейна Вилюя практически отсутствуют образцы «ветви Омогоя» N-M1933 (см. табл. 1). Также высокая частота линии N-M1991 наблюдается и в образцах из древних якутских захоронений Сунтарского и Нюрбинского улусов [Keyser et al., 2015; Zvénigorosky et al., 2020] – в восьми из девяти. Медианная сеть для юго-запада бассейна Вилюя (рис. 3, д ) наглядно демонстрирует описанное выше преобладание линии N-M1991 (при равном соотношении гаплотипов Ht3 и Ht1) и практически отсутствие кластера Ht2.
Северо-Восточная Якутия. В данном случае были использованы образцы из разных улусов (см. рис. 1). Вместе с доминированием линии N-M1991 наблюдается относительно высокая частота гаплогруппы N-M1933 (ок. 9 %). По-видимому, это связано с переселением части баягантайцев в район Оймякона и на р. Мому. В целом частота якутской гаплогруп-пы N-M1982 продолжает оставаться высокой – ок. 70 %. Все древние образцы (за исключением одного) из погребений Верхоянского (16 образцов) и Оймяконского (3 образца) улусов относятся к кластеру Ht1 [Keyser et al., 2015; Zvénigorosky et al., 2020]. Повышенная доля этой ветви видна и на медианной сети (рис. 3, е ).
Северо-восток Хабаровского края. В группе, представленной аяно-майскими, тугуро-чумикански-ми и охотскими якутами (см. табл. 1), преобладание линии N-M1982 сохраняется на уровне 68 %. Остальные гаплогруппы, за исключением I-P37.2 (9 %), –
C-M48 (14 %), N-P43 (4,5 %), O-M268 (4,5 %) – имеют тунгусо-маньчжурское или местное доякутское происхождение. Гаплотип O-M268 по девяти STR-маркерам совпадает с таковым верхоянского эвенка, приведенным в работе Б. Пакендорф и др. [Pakendorf et al., 2007].
Вслед за русскими первопроходцами, основавшими Охотский острог (1647 г.), первые якуты вышли к Охотскому морю в конце XVII – начале XVIII в. [Парникова, 1971, с. 57], т.к. быстрое истребление соболей, необходимых для уплаты ясака, в Центральной Якутии вынуждало совершать дальние походы для промысла или покупки собольих шкурок. Но более массовые переселения якутов, как добровольные, так и принудительные, произошли позже в связи с перевозкой грузов по Охотскому (1731–1852 гг.) и Аян-скому (1852–1867 гг.) трактам [Там же, с. 91–97]. Различные грузы (ткани, чай, продовольствие, промтовары и др.) везли до портов, затем они доставлялись морем до Петропавловска-Камчатского и Аляски. С судов в портах выгружали мех из Америки (шкуры бобра, калана и др.), морские товары. Некоторые якуты нанимались на работу в Российско-Американскую компанию. Гаплотип N-M1991 потомка одного из этих якутов – индейца из племени атапасков (Аляска, США) – опубликован [Davis et al., 2011].
Генетическая история якутов с иными гаплогруппами
Другие гаплогруппы обнаруживаются с частотой 15 % в 114 образцах якутов Республики Саха (см. табл. 1). По преданиям, одним из предков саха, наряду с Эллэем и Омогоем, является старик Улуу Хоро – предводитель хоринских родов. Язык хоринцев не был понятен якутам, поэтому современные исследователи полагают, что с хоринцами связан монгольский компонент этногенеза саха. Гаплогруппы C-M407, N-F4205 и C-M504 («старкластер»), преобладающие у бурятов и баргутов, наблюдаются среди якутов с общей частотой ок. 3 %. Это согласуется с оценкой численности хоринцев: ок. 2 % от общей численности якутов в начале XX в. [Ксенофонтов, 1992, с. 161]. Отметим, что один из гаплотипов «старкластера» выявлен у жителя с. Хоро Сунтарского улуса. В антропологических материалах якутских погребений XVII–XIX вв. обнаружены два образца с гаплогруппой C-M407 и два с гаплогруппой N-F4205 [Crubezy et al., 2010; Zvénigorosky et al., 2020].
Общая частота гаплогрупп предположительно тунгусского или местного доякутского происхождения (C-M48, N-P43, Q-M242) у якутов не превышает 5 %. В образцах раннего железного века с территории Якутии зарегистрированы гаплогруппа N-P43 (индивид из с. Дюпся) [Ma et al., 2021], отсутствие мутации Tat (Покровский человек) [Amory et al., 2006].
Парагруппа N-M231(xM1991, M1933, F4205, P43) в основном представлена европейскими ветвями N-Tat. Вместе с другими гаплогруппами, нетипичными для северо-востока Азии (I, J, R1a, R1b), она вносит вклад ок. 6 %. Предками доноров образцов O-P49 (два гаплотипа) и O-M1706 (один гаплотип), по-видимому, были выходцы с Корейского полуострова.
К вопросу о происхождении якутов
Наблюдаемые особенности рассмотренных территориальных групп связаны с массовым переселением якутов из центральных в более отдаленные районы Якутии, а отчасти и за ее пределы в XVII–XVIII вв. Ядро якутского народа сформировалось в Центральной Якутии в результате демографического взрыва, датируемого по полиморфизму гаплогрупп N-M1991 и N-M1933 XIV в. н.э. [Адамов, 2022]. К этой же дате приводят расчеты эффекта основателя по аутосомным данным [Tournebize, Chu, Moorjani, 2022]. Патрилиней-ность и патрилокальность поддерживали устойчивую передачу Y-хромосомы на территории проживания якутских родов. Браки якутов определялись экзогамными традициями: жен стремились брать из других улусов или хотя бы других наслегов. Мужчины-якуты легко женились на женщинах-тунгусках, но якутки редко выходили замуж за тунгусов [Федорова, 2008, с. 183; Федорова, Хуснутдинова, 2022]. Эти особенности якутских брачных традиций отражаются в доминировании одной, относительно молодой, гапло-группы Y-хромосомы N-M1982 и достаточно высоком разнообразии пула митохондриальной ДНК [Федорова, 2008, с. 183–185; Федорова, Хуснутдинова, 2022].
Выводы
Сочетание результатов массового параллельного секвенирования Y-хромосомы и накопленного массива данных о STR-гаплотипах позволило разделить молодую гаплогруппу N-M1982, доминирующую у якутов (на уровне 85 %), на три ветви. В основных этнолокальных группах якутов выявлены следующие особенности.
-
1. На всей территории расселения якутов с высокой частотой обнаруживается ветвь N-M1991 с DYS389B = 18, которая ассоциируется с легендарным первопредком Эллэем. По преданиям, от него происходит мужская линия большинства якутов: «линия Эллэя» обнаруживается у половины мужчин.
-
2. Ветвь N-M1933 распространена в местах проживания потомков батулинцев, которых народная традиция связывает со вторым легендарным предком якутов Омогоем и его соплеменниками. В Централь-
- ной Якутии высокая частота «линии Омогоя» выявлена в Таттинском, Томпонском улусах и на западе Чурапчинского (Бахсытский и Алагарский наслеги).
-
3. Высокая частота ветви N-M1991 с DYS389B = 17 в бассейне Вилюя, по-видимому, связана с зафиксированным в русских письменных источниках переселением туда родов бордонцев и жарханцев со средней Лены в XVII в. Доминирование гаплогрупп N-M1983 и N-Y25011 на северо-востоке бассейна Вилюя выражено менее отчетливо, чем на юго-западе.
-
4. Частота якутской гаплогруппы N-M1982 понижается примерно до 70 % в территориальных группах якутов северо-востока бассейна Вилюя, Якутии и Хабаровского края.
-
5. Якутские минорные гаплогруппы имеют разное происхождение. Гаплогруппы C-M407, N-F4205, C-M504 («старкластер») могут отражать монгольский компонент в этногенезе якутов (частота 3 %). Также невысока (ок. 5 %) у якутов частота гаплогрупп тунгусского или местного доякутского происхождения – C-M48, N-P43, Q-M242. Гаплогруппы, вошедшие в состав якутского народа в более позднее время (I, J, R1a, R1b и др.), имеют совокупную частоту ок. 7 %.
Работа выполнена в рамках Государственного задания Минобрнауки России для Медико-генетического научного центра им. академика Н.П. Бочкова.
