
Иммунные контрольные точки: основные функции, роль в патогенезе злокачественных новообразований, нежелательные явления при терапии ингибиторами иммунных контрольных точек
Журнал: Вестник гематологии @bulletin-of-hematology
Рубрика: Передовая статья
Статья в выпуске: 4 т.22, 2026 года.
Бесплатный доступ
В обзоре даны современные представления об иммунных контрольных точках (ИКТ), описаны их разнообразные варианты с уточнением функции и механизма действия, приведена роль в процессах активации, пролиферации, выживания и поддержания иммунного гомеостаза, детально рассмотрены механизмы регулирования уровня иммунорецепторов на клеточной поверхности, передачи активирующего и ингибирующего сигналов. Представлены иммунологические механизмы противоопухолевого контроля, пути ухода опухоли из-под иммунного надзора, взаимосвязь HLA-генетических факторов с ответом на терапию блокаторами иммунных контрольных точек и осложнениями, опосредованными иммунотерапией. Показана роль индивидуальных характеристик пациента в достижении эффективности ингибиторов ИКТ.
Короткий адрес: https://sciup.org/170214002
IDS: 170214002
Immune Checkpoints: Basic Functions, Role in the Pathogenesis of Malignant Neoplasms, and Adverse Events Associated with Immune Checkpoint Inhibitor Therapy
The review presents current concepts regarding immune checkpoints (ICs), describes their various types detailing their functions and mechanisms of action, and outlines their role in processes such as activation, proliferation, survival, and the maintenance of immune homeostasis. The mechanisms regulating the level of immune receptors on the cell surface, as well as the transmission of activating and inhibitory signals, are described in detail. The immunological mechanisms of antitumor control, the pathways by which tumors evade immune surveillance, and the relationship between HLA genetic factors and both the response to immune checkpoint inhibitor therapy and immunotherapyrelated adverse events are presented. The role of a patient's individual characteristics in achieving the efficacy of immune checkpoint inhibitors (ICIs) is demonstrated.
Текст научной статьи Иммунные контрольные точки: основные функции, роль в патогенезе злокачественных новообразований, нежелательные явления при терапии ингибиторами иммунных контрольных точек
Введение . Иммунная система человека – это сложнейший механизм , способный распознавать и уничтожать широкий спектр угроз , включая пато гены и злокачественные клетки . В основе её функ ционирования лежит тонкий баланс между акти вацией и ингибированием . Одну из центральных ролей в этом процессе играют иммунные контроль ные точки ( ИКТ ) – молекулы , расположенные на по верхности иммунных клеток , которые регулируют силу и продолжительность иммунного ответа . Они предотвращают чрезмерную иммунную реакцию , которая могла бы привести к повреждению соб ственных тканей .
Активирующие ИКТ играют ключевую роль в процессах активации, пролиферации, выживания и поддержания иммунного гомеостаза Т-клеток, регулировании В-клеточной активации и синтеза иммуноглобулинов. Ингибирующие сигнальные пути чрезвычайно важны для реализации механизмов ау- immune surveillance, and the relationship between HLA genetic factors and both the response to immune checkpoint inhibitor therapy and immunotherapy-related adverse events are presented. The role of a patient's individual characteristics in achieving the efficacy of immune checkpoint inhibitors (ICIs) is demonstrated.
Иммунная система человека обладает мощным потенциалом для распознавания и уничтожения опухолевых клеток . Однако опухоли зачастую раз вивают механизмы уклонения от иммунного над зора , что позволяет им избегать элиминации и прогрессировать . Одним из ключевых механизмов такого уклонения является активация ингибирую щих ИКТ – молекул , которые регулируют интенсив ность иммунного ответа и предотвращают аутоим мунные реакции . Опухолевые клетки используют эти молекулы для снижения активности атакую щих их иммунных клеток , создавая иммуносупрес сивное микроокружение .
Ингибирующие иммунные контрольные точки расположены на поверхности в первую очередь Т-лимфоцитов, которые, связываясь со своими лигандами, подавляют иммунный ответ. Наиболее изученными и клинически значимыми являются молекулы PD-1 (programmed cell death protein 1) и CTLA-4 (cytotoxic T-lymphocyte-associated protein 4). Эти иммунные точки играют критическую роль в поддержании аутотолерантности, но в то же время, опухолевые клетки научились использовать их для уклонения от иммунного надзора организма.
Онкологические заболевания остаются сложной проблемой для медицины . Однако последние де сятилетия ознаменовались настоящим прорывом благодаря развитию иммунотерапии , в частности , использованию блокаторов иммунных контроль ных точек . Эти инновационные препараты , воздей ствуя на тонкие механизмы регуляции иммунной системы , открыли новую эру в борьбе с онкологи ческими заболеваниями .
История создания ингибиторов ИКТ
Способность белка CTLA-4 к угнетению актив ности Т - лимфоцитов была открыта учеными Кали форнийского университета в 1990- х г . г . Основным направлением дальнейших исследований стало применение CTLA-4 для терапии аутоиммунных за болеваний . Джеймс П . Эллисон предположил , что ингибирующая способность CTLA-4 может быть использована и в области онкологии . Эллисон раз работал антитело , связывающееся с CTLA-4 и бло кирующее его функциональную активность . В кон це 1994 г . были получены первые положительные результаты лечения опухолей у животных с помо щью разработанного антитела . Успешные результа ты применения анти -CTLA-4 антитела для лечения больных метастатической меланомой были проде монстрированы в 2010 г . Первое моноклональное анти -CTLA-4 антитело , официально одобренное FDA (Food and Drug Administration, США ) для лече ния метастатической меланомы в 2011 г ., получило название ипилимумаб .
Рецептор PD-1, экспрессирующийся на поверх ности Т - лимфоцитов и , подобно CTLA-4, ингибиру ющий Т - клеточную активность , был открыт ученым Университета Киото Тасуку Хондзё в 1992 г . Первым блокатором PD-1, одобренным FDA в 2013 г ., стал пембролизумаб – высокоаффинное антитело , оказы вающее двойное блокирующее действие на лиганды PD-L1 и PD-L2. Несколькими месяцами ранее в Япо нии был зарегистрирован препарат ниволумаб , бло кирующий взаимодействие PD-1 с его лигандами .
Из двух стратегий лечения терапия , направлен ная на ингибирование сигнального пути PD-1, ока залась более эффективной , и в настоящее время ис пользуется при нескольких видах злокачественных неоплазий , включая лимфому Ходжкина , мелано му , почечно - клеточный рак , рак головы и шеи , рак легких , гепатоцеллюлярную карциному . В 2018 г . Джеймс П . Эллисон и Тасуку Хондзё были удостоены Нобелевской премии по физиологии и медицине за разработку революционного метода лечения рака – блокаду иммунных контрольных точек .
Целью настоящей работы является представле ние современных сведений о механизмах действия ИКТ , терапии ингибиторами ИКТ и связанных с этой терапией осложнениях у пациентов со злока чественными новообразованиями .
Результаты
Иммунные контрольные точки – регуляторы иммунного ответа
В зависимости от характера воздействия на им мунные процессы , ИКТ подразделяются на активи рующие и ингибирующие .
Активирующие ИКТ играют ключевую роль в процессах активации , пролиферации , выживания и поддержания иммунного гомеостаза Т - клеток , регу лировании В - клеточной активации и синтеза имму ноглобулинов . К активирующим сигнальным моле кулам относятся члены суперсемейства рецепторов фактора некроза опухоли – CD27, CD40, OX40, GITR, CD137, а также молекулы CD28 и ICOS, принадлежа щие к суперсемейству B7-CD28.
CD27 – рецептор , локализующийся на поверхности Т - лимфоцитов , субпопуляции В - лимфоцитов и NK- клеток . Лигандом CD27 является молекула CD70, экс прессируемая B- лимфоцитами . CD27 участвует в ге нерации и долгосрочном поддержания Т - клеточного иммунитета , регулировании В - клеточной активации и синтеза иммуноглобулинов .
CD28 конститутивно экспрессируется на 30-50% CD8+ Т - клеток и 95-100% CD4+ Т - клеток челове ка . Лигандами CD28 являются CD80 (B7-1) и CD86 (B7-2), расположенные на поверхности антиген презентирующих клеток ( АПК ). CD28 обеспечивает костимулирующие сигналы , необходимые для ак тивации , пролиферации , выживания и поддержа ния иммунного гомеостаза Т - клеток .
CD40 – рецептор , присутствующий на различ ных клетках иммунной системы , включая АПК . Лигандом CD40 является CD154 (CD40L), экспрес сируемый на поверхности активированных CD4+ T- клеток . Наличие CD40 подтверждает способность дендритных клеток к созреванию , что необходи мо для их участия в активации и дифференциации T- лимфоцитов .
CD122 представляет собой бета-субъединицу рецептора интерлейкина-2. CD122 локализуется на В-лимфоцитах, NK-клетках, моноцитах, дендрит- ных клетка, нейтрофилах. Экспрессия CD122, низкая в покоящихся Т-клетках, повышается в ответ на стимуляцию Т-клеточного рецептора (TCR). CD122 необходим для регуляции функций Т-клеток, периферического лимфатического гомеостаза и аутоиммунных процессов.
CD137 экспрессируется на Т - лимфоцитах , NK- клетках , дендритных клетках , гранулоцитах . CD137 стимулирует пролиферацию T- клеток . Сигнальный путь , опосредованный CD137, защищает CD8+ T- клетки от клеточной гибели , вызванной активацией .
OX40 (CD134) расположен на активированных Т - лимфоцитах , T- регуляторных клетках , NK- клетках , нейтрофилах . Лигандом OX40 является OX40L, экс прессирующийся на АПК . OX40 способствует экспан сии эффекторных Т - лимфоцитов и Т - клеток памяти . В то же время OX40 может подавлять дифференци ровку и активность Т - регуляторных клеток , а также контролировать продукцию цитокинов .
GITR – рецептор , экспрессирующийся на Т - и В - клетках , моноцитах , макрофагах , дендритных клетках . Лиганд GITR – GITRL локализуется преиму щественно на АПК . GITR способствует пролифера ции эффекторных Т - клеток , продукции цитокинов , ингибированию регуляторных Т - клеток .
ICOS (CD278) экспрессируется на поверхности активированных Т - лимфоцитов . Лигандом ICOS яв ляется ICOSL (CD275), локализующийся в основном на В - клетках и дендритных клетках . ICOS стимули рует пролиферацию Т - клеток , способствует диф ференцировке и эффекторным функциям Th1, Th2, Th17, T- фолликулярных хелперов и Т - регуляторных клеток .
Ингибирующие ИКТ
Ингибирующие сигнальные пути чрезвычайно важны для реализации механизмов аутотолерант ности , предотвращающих развитие иммунных ре акций в отношении собственных белков . Помимо участия в контроле аутоиммунных заболеваний , ингибирующие сигнальные пути оказывают вли яние на течение различных физиологических про цессов . Например , ингибирующие ИКТ регулируют иммунную толерантность при беременности . На рушение экспрессии ингибирующих сигнальных молекул на локальном или системном уровнях при водит к развитию гестационных осложнений , таких как невынашивание беременности и преэклампсия .
Модуляция работы или изменение экспрессии аденозиновых рецепторов , принадлежащих к ин гибирующим ИКТ , сопровождается усилением вос палительных процессов при заболеваниях нервной и сердечно - сосудистой систем . В связи с этим аде нозиновые рецепторы рассматриваются как потен циальные терапевтические мишени при различных патологических состояниях ( ишемическая болезнь сердца , нейродегенеративные болезни , атероскле роз и другие ).
Ключевые ингибирующие ИКТ в онкологии
В последние годы ингибирование ИКТ про демонстрировало революционные результаты в лечении широкого спектра онкологических забо леваний . Этот подход позволяет иммунной систе ме вновь эффективно распознавать и уничтожать опухолевые клетки . Ключевыми ингибирующими рецепторами , ставшими мишенью для современ ных терапевтических подходов , являются PD-1 и его лиганд PD-L1 (programmed death-ligand 1), а также CTLA-4. В норме активация этих рецепторов приводит к подавлению активности Т - лимфоцитов , что является важным механизмом поддержания аутотолерантности . Однако опухолевые клетки на учились использовать это в своих целях : они могут экспрессировать лиганды , которые связываются с PD-1 или CTLA-4 на Т - клетках , тем самым снижая противоопухолевый иммунный ответ .
Сигнальный путь PD-1
Транс - взаимодействие молекул PD-1, экспресси рованных на Т - лимфоцитах , c о своими лигандами PD-L1 или PD-L2, локализованными на поверхности АПК , инициирует передачу ингибирующего сигнала .
В составе цитоплазматического домена молекул PD-1 присутствуют монотирозиновые сигнальные мотивы : ITIM и ITSM, способные взаимодействовать с тирозинфосфатазой -1 (SHP-1), содержащей домен гомологии Src 2, и родственной ей тирозинфосфата - зой -2 (SHP-2). Ферменты SHP-1 и SHP-2 подавляют функции тирозинкиназ LCK и регуляторного белка ZAP70, ингибируют сигнальные пути PI3K/AKT/ mTOR и Ras/MEK/ERK, что приводит к подавлению передачи сигнала как Т - клеточным рецептором , так и костимулирующей молекулой CD28 ( рис . 1).
Белок SAP ( сигнальный белок , ассоциирован ный с молекулой активации лимфоцитов ), блоки рует взаимодействие тирозинфосфатазы SHP-2 с субстратом , что приводит к подавлению передачи ингибирующего сигнала PD-1.
Недавние исследования продемонстрировали возможность коэкспрессии молекул PD-L1 и PD-1 на АПК и их взаимодействия в цис - положении , что блокирует транс - взаимодействия PD-1 с лигандом , и , таким образом , способствует снижению ингиби рующей функции PD-1 в Т - лимфоцитах . Также мо жет осуществляться цис - взаимодействие молекул PD-L1 и CD80, приводящее к нарушению связыва ния PD-L1 с PD-1 и CD80 с CTLA-4. Следует отметить , что при этом способность CD80 активировать пере дачу сигнала молекулой CD28 сохраняется . Таким образом , цис - взаимодействие PD-L1 и CD80 может играть положительную роль в противоопухоле вом иммунном ответе посредством ингибирования функций PD-1 и CTLA-4.
Сигнальный путь CTLA-4
После связывания CTLA-4 с его лигандами , мо лекулами CD80 и CD86, тирозин , входящий в со -
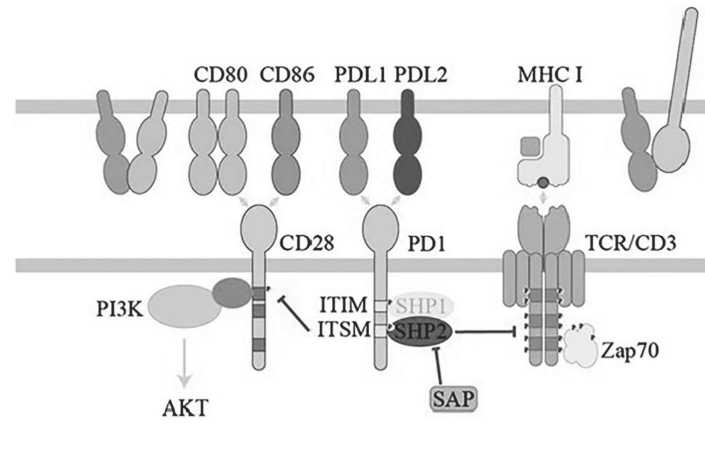
Рисунок 1. Сигнальный путь PD-1 [1]
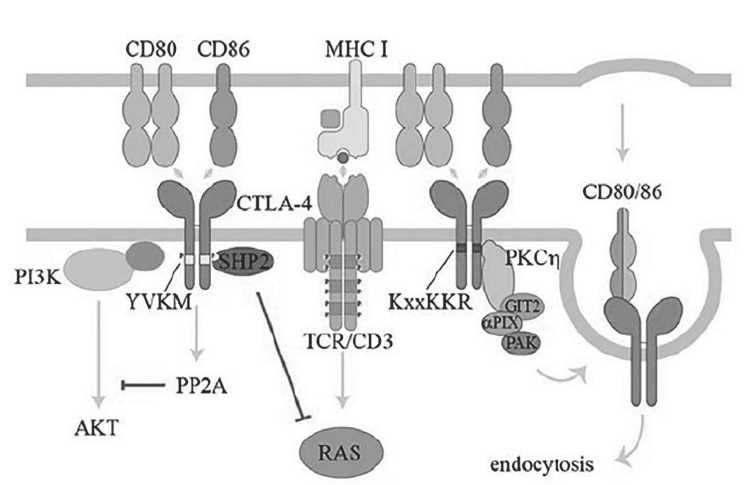
Рисунок 2. Сигнальные механизмы CTLA-4 [1]
став YVKM- мотива цитоплазматического домена молекулы , фосфорилируется киназами семейства Src или другими фосфотрансферазами (Jak2, Rlk). Фосфорилированный YVKM- мотив рекрутирует фосфатазу 2 (SHP2), которая ингибирует RAS ( се мейство ферментов ГТФаз ) и ослабляет переда чу сигнала T- клеточным рецептором посредством дефосфорилирования цепи CD3 ζ . Рекрутирование YVKM- мотивом фосфатазы PP2A приводит к нисхо дящему дефосфорилированию протеинкиназы В (AKT), что еще больше ослабляет путь активации Т - лимфоцитов ( рисунок 2).
Помимо подавления Т - клеточного ответа , осу ществляемого посредством YVKM- мотива , CTLA-4 может реализовывать ингибирующее действие внешними способами . В частности , молекулы CTLA-4 и CD28 имеют одинаковые лиганды – CD80/CD86. Более высокая аффинность связывания с лигандами дает CTLA-4 конкурентное преимущество , что пре пятствует реализации костимулирующей функции CD28. Т - лимфоциты , экспрессирующие CTLA-4, спо собны снижать поверхностный уровень CD80/CD86 на АПК путем транс - эндоцитоза , что также приво дит к снижению костимулирующего сигнала CD28. CTLA-4 способствует снижению экспрессии иммуно рецептора IDO в дендритных клетках посредством лигирования CD80/CD86, что приводит к истоще нию триптофана и подавлению Т - клеток .
Именно понимание этого механизма уклонения опухолей от иммунного контроля привело к прорыву в онкологии – разработке иммунотерапии препаратами-ингибиторами иммунных контрольных точек (immune checkpoint inhibitors, ICIs). Эти препараты, представляющие собой моноклональные антитела, направлены на блокирование взаимодействия между рецепторами контрольных точек и их лигандами. Блокируя PD-1 или CTLA-4, блокаторы снимают ингибирующие сигналы, позволяя реактивированным Т-лимфоцитам распознавать и уничтожать опухолевые клетки. Этот подход трансформировал лечение многих видов рака, включая меланому, рак легкого, рак почки и уротелиальный рак, приводя к долгосрочным ремиссиям у пациентов, которые ранее не имели эффективных вариантов лечения.
К ингибирующим сигнальным молекулам от носятся также A2AR, B7-H3, B7-H4, BTLA и другие . A2AR – один из четырех подтипов аденозиновых ре цепторов , широко распространенных почти во всех тканях и органах человека . Под воздействием ряда факторов ( гипоксия , некроз клеток и др .) солидные опухоли продуцируют высокие концентрации аде нозина , активирующего A2 А R. Активация A2AR на клетках опухоли приводит к ингибированию эффек торных Т - лимфоцитов и стимуляции супрессорных клеток (T- регуляторные клетки и миелоидные су прессоры ), что модулирует иммунный ответ и спо собствует уклонению клеток опухоли от иммунного надзора .
B7-H3 (CD276) – рецептор , расположенный на ак тивированных иммунных клетках ( Т - лимфоциты , NK- клетки , АПК ), гиперэкспрессия которого наблю дается на клетках опухолей . Лиганд рецептора B7-H3 в настоящее время неизвестен . B7-H3 характеризу ется сложной иммуномодулирующей активностью . Изначально рецептор рассматривался как положи тельный костимулятор из - за способности усиливать Т - клеточный ответ и продукцию интерферона - γ . Со временные исследования показали , что B7-H3 уча ствует в ингибировании Т - лимфоцитов .
B7-H4 (B7X, B7S1, VTCN1, DD-0110) – коингиби - торная молекула , экспрессируемая на АПК . Высокий уровень экспрессии B7-H4 наблюдается на клетках опухолей . B7-H4 негативно регулирует Т - клеточный иммунный ответ и способствует уходу от иммун ного надзора , ингибируя пролиферацию , секрецию цитокинов и клеточный цикл Т - лимфоцитов . B7-H4 играет чрезвычайно важную роль в онкогенезе , включая клеточную пролиферацию , инвазию , мета стазирование , антиапоптоз .
BTLA (CD272) экспрессируется на Т - и В - клетках , NK, дендритных клетках . Поверхностная экспрес сия BTLA снижается во время дифференцировки
CD8+ T- клеток от наивного фенотипа до фенотипа эффекторных клеток . Высокий уровень экспрессии BTLA наблюдается на опухолеспецифических CD8+ T- лимфоцитах . Лигандом BTLA является молекула HVEM.
IDO (Indoleamine-2,3-dioxygenase) представляет собой катаболический фермент триптофана с имму - ноингибиторными свойствами . IDO физиологиче ски экспрессируется в ряде тканей и клеток ( тонкий кишечник , легкие , женские половые пути , плацен та ). IDO подавляет T- и NK- клетки , способствует генерации и активации регуляторных T- клеток и миелоидных супрессоров , участвует в процессе зло качественной трансформации и играет ключевую роль в подавлении противоопухолевого иммунного ответа .
KIR (killer cell immunoglobulin-like receptors) – рецепторы , локализованные на поверхности NK- клеток и неко - торых популяциях Т - лимфоцитов , ли гандами которых являются молекулы HLA класса I. Комплекс сигналов , получаемых от ингибирующих KIR- рецепторов , снижает функциональную актив ность NK- клеток .
LAG3 (lymphocyte-activation gene 3, CD223) экс прессируется на активированных T- клетках , NK- клетках , B- лимфоцитах и плазмоцитоидных ден дритных клетках . Лигандами LAG3 являются молекулы HLA класса II. LAG3 подавляет иммунный ответ путём воздействия на регуляторные Т - клетки , а также прямого воздействия на CD8+ Т - лимфоциты .
TIM-3 (T cell immunoglobulin and mucin-domain containing-3, CD366) – коингибиторный рецеп тор , экспрессирующийся на IFN- γ - продуцирующих Т - клетках , FoxP3+ T- регуляторных клетках и клет ках врожденного иммунитета ( макрофагах и ден дритных клетках ). TIM-3 способствует снижению пролиферативного потенциала CD8+ Т - лимфоцитов и секреции цитокинов , таких как TNF- альфа , IFN- гамма и IL-2. Основным лигандом этого рецептора является галектин -9.
VISTA (V-domain Ig-containing suppressor of T cell activation, B7-H5) экспрессируется на CD4+ и С D8+ Т - клетках , а также моноцитах , нейтрофилах и ден дритных клетках . Повышенная экспрессия этого рецептора наблюдается на клетках опухоли и ее микроокружения . VISTA подавляет пролиферацию CD4+ и CD8+ Т - лимфоцитов .
Регуляция уровня ИКТ на клеточной поверх ности
Уровень молекул ИКТ на клеточной поверхности регулируется несколькими разнонаправленными процессами .
Синтез белковых молекул осуществляется в эндоплазматическом ретикулуме (ЭР), для их транспортировки на поверхность клетки используются аппарат Гольджи и секреторные везикулы. «Контролем качества», обеспечивающим доставку на клеточную поверхность только зрелых и функцио- нальных ИКТ, служит N-гликозилирование белковых молекул. N-гликозилирование важно не только для созревания молекул белка и их сортировки в клеточные органеллы, но и для их правильного сворачивания и олигомеризации. Гликаны оказывают влияние на функции зрелых белков и способствуют их стабильности, защищая от протеаз.
Молекулы ИКТ , достигшие клеточной поверхности , в дальнейшем могут подвергаться интернализации ( перемещение внутрь клетки с помощью эндоцито - за ) и рециклированию ( возвращение на поверхность клетки ), что обеспечивает быстрый регуляторный путь для модуляции их поверхностного уровня . Дру гим важным механизмом контроля поверхностного уровня ИКТ является связывание интернализован - ных молекул с белком убиквитином с последующей деградацией в протеасомах или лизосомах
Регуляция экспрессии CD28 на клеточной поверх ности
Молекула CD28, представляющая собой гомо димер , состоящий из двух одинаковых полипеп - тидных молекул , соединенных дисульфидной связью , синтезируется в ЭР . В составе белковой мо лекулы присутствует Ig- подобный домен V- типа , который содержит от одного до шести участков N- гликозилирования . Процесс N- гликозилирования белковой молекулы катализируется комплексом олигосахарид - трансфераз , который состоит из двух каталитических субъединиц – SST3A и STT3B. Глико зилированная белковая молекула транспортируется на поверхность клетки посредством аппарата Голь джи и секреторных везикул .
Следует отметить , что N- гликаны молекул CD28 могут играть роль негативных регуляторов взаи модействия CD28 с лигандом CD80, что приводит к снижению сигнальной активности CD28. Предпо лагается , что N- гликаны контролируют плотность кластеризации CD28 во время взаимодействия с ли гандами CD80/CD86.
Молекулы CD28, расположенные на по верхности клеток , подвергаются интерна лизации . Процесс начинается со связывания фосфоинозитид -3- киназы (PI3K) с мотивом YMNM ( аминокислотная последовательность Tyr–Val– Asn–Met) в цитоплазматическом домене CD28. В результате фосфорилирования PI3K образует ли пиды фосфатидилинозитол -3,4- бифосфат (PIP2) и фосфатидилинозитол -3,4,5- трифосфат (PIP3), кото рые могут связываться с внутренним слоем цито плазматической мембраны .
Интернализация молекул CD28 осуществляет ся клатрин - зависимым образом ( проникновение внутрь клетки посредством связывания с везику лами , покрытыми снаружи полимеризованным клатрином ). В процессе интернализации также мо гут участвовать белок синдрома Вискотта - Олдрича (WASP) и сортирующий нексин 9 (SNX9). Обнаруже но , что SNX9 связывает WASP посредством своего
SH3- домена , а также использует свой домен гомо логии к оксидазе фагоцитов для взаимодействия с p85- субъединицей PI3K и ее продуктом PIP3. По вышенная экспрессия SNX9 существенно усилива ет интернализацию CD28 молекул . Таким образом , контроль интернализации CD28 осуществляется с помощью механизма , в котором задействованы PI3K, WASP и SNX9. После интернализации молеку лы CD28 могут взаимодействовать с убиквитином и деградировать в цитозоле . Деградация CD28 может происходить по лизосомальному или протеасомаль - ному пути . Повышение экспрессии иммунорецеп тора CTLA-4 приводит к снижению уровня CD28 на поверхности Т - лимфоцитов , что происходит в ре зультате усиления интернализации и деградации молекул CD28.
Регуляция уровня PD-1 на клеточной поверхности
Белок PD-1 является продуктом гена PDCD1. В со ставе белковой молекулы присутствует IgV- домен , который имеет четыре сайта N- гликозилирования : N49, N58, N74, N116. С помощью масс - спектрометрического анализа установлено , что все четыре сайта содержат фукозу . Предполагается , что фукозилирование играет существенную роль в регуляции поверхностного уровня PD-1. Как уста новлено , генетическая абляция фукозилтрансфера - зы 8 (Fut8) приводит к снижению поверхностного уровня PD-1 и усилению активации Т - лимфоцитов . В настоящее время изучается , как именно гликози лирование регулирует уровень PD-1 на поверхности клеток . Возможно , гликозилирование определяет конфигурацию PD-1 молекулы и таким образом вли яет на процесс « контроля качества » в ЭР . Гликозили рование также влияет на процесс связывания PD-1 с его лигандами .
Процессы интернализации , деградации или ре циркуляции молекул PD-1 остаются предметом ис следований . Установлено , что в CD8+ Т - лимфоцитах , инфильтрирующих опухоль печени , функцию свя зывания с PD-1 в цитоплазме и облегчения рецир куляции PD-1 может выполнять белок Tox (Thymus High Mobility Group Box, высокомобильная группа , ассоциированная с селекцией тимоцитов ). Неиз вестно , регулирует ли Tox рециркуляцию PD-1 при других условиях . Интернализация поверхностного PD-1 исследовалась с помощью флуоресцентной ви зуализации , но пока неизвестно , участвует ли в ин тернализации PD-1 обычный клатрин - зависимый эндоцитоз . После интернализации молекулы PD-1 могут возвращаться на поверхность клетки или подвергаться убиквитинированию с помощью спец ифической E3- убиквитин - лигазы PD-1, называемой F-box protein 38 (FBXO38), с последующей деграда цией в протеасоме .
Установлено, что в Т-лимфоцитах, инфильтрирующих опухоли, экспрессия FBXO38 снижена вследствие постоянного воздействия опухолевого антигена и низкой экспрессии молекул CD80/CD86 на опухолевых клетках. Снижение экспрессии FBXO38 затрудняет процесс деградации PD-1, опосредуемый этим ферментом.
Повышенная экспрессия PD-L1, наблюдающаяся в злокачественно трансформированных стволовых клетках и способствующая уклонению от иммун ного надзора , является результатом функциони рования сигнальной оси ЭМТ / β - катенин /STT3/PD-L1. Эпителиально - мезенхимальный переход ( ЭМТ ) индуцирует экспрессию N- гликозилтрансферазы STT3 посредством β - катенина , последующее STT3- зависимое N- гликозилирование PD-L1 стабилизи рует и повышает поверхностный уровень молекул лиганда .
Фосфорилирование серина в положении 195 молекулы PD-L1 под воздействием 5' АМФ - активируемой протеинкиназы вызывает аномаль ное гликозилирование PD-L1 и блокирует транспорт молекулы из ЭР в аппарат Гольджи (TGN), что приво дит к деградации , ассоциированной с ЭР (ERAD).
Молекулы PD-L1, достигшие клеточной поверх ности , подвергаются постоянной интернализации . После интернализации может происходить возвра щение PD-L1 на клеточную поверхность с помощью шаперонных белков CMTM6/4 или направление в лизосому с помощью белка HIP1R для последующей деградации . Убиквитинирование и протеасомная деградации PD-L1 регулируются различными E3- лигазами (Cullin3-SPOP, β TrCP, STUB1).
Существуют сложные механизмы , противодей ствующие убиквитинированию и деградации PD-L1 молекул . Например , путь NF- κ B, активируемый TNF- α , индуцирует экспрессию белка CSN5 ( субъе диница 5 сигналосомы COP9). Белок CSN5 препят ствует связыванию молекул PD-L1 с убиквитином , протеасомная деградация не осуществляется , что способствует стабилизации экспрессии PD-L1 на клетках опухоли .
Регуляция уровня CTLA-4 на клеточной поверхно сти
Местом основной локализации молекул CTLA-4 являются внутриклеточные компартменты . Транс локация CTLA-4 на клеточную поверхность для выполнения ингибирующей функции происходит сразу после активации Т - клеточного рецептора . Для осуществления транспортировки задействует ся комплекс CTLA-4/TRIM/LAX/Rab8. Перемещение CTLA-4 к клеточной поверхности может также за пускаться фосфолипазой D (PLD) и фактором рибо - зилирования АДФ -1 (ARF1), зависящими от экзоци - тоза ( рис . 2 с ). CTLA4 стабилизируется на клеточной поверхности за счет связывания с лигандами CD80, CD86.
Поверхностные молекулы CTLA-4 могут интер нализироваться . Мотив YVKM в цитоплазматиче ском домене молекулы CTLA-4 взаимодействует с клатрин - ассоциированным адапторным ком плексом AP-2, что обеспечивает проникновение
CTLA-4 внутрь клетки . Фосфорилирование домена YVKM предотвращает интернализацию . Скорость интернализации CTLA-4 регулируется с помощью N- гликозилирования .
Интернализованный CTLA-4 может быть возвра щен из эндосом на поверхность клетки . Этот про цесс осуществляется с помощью белка LRBA, кото рый локализуется в эндосомах совместно с CTLA-4. Как установлено , мутации в гене , кодирующем бе лок LRBA, приводят к снижению уровня CTLA-4 на поверхности Т - лимфоцитов , в том числе регулятор ных , что сопряжено с риском аутоиммунных и лим фопролиферативных заболеваний , а также с дефи цитом гуморального иммунитета .
Механизмы сигнальных путей
Костимулирующий сигнал CD28
Для активации Т - лимфоцитов необходимо одно временное взаимодействие Т - клеточного рецептора и костимулирующей молекулы ( например , CD28 или ICOS), расположенными на Т - клетках , с HLA моле кулами и ко - стимулирующими молекулами (CD80, CD86), экспрессируемыми на антигенпрезентирую щих клетках .
Связывание молекул CD28 с лигандами CD80 или CD86 инициирует проведение костимулирующе - го сигнала . Цитоплазматический домен молекулы CD28 не обладает собственной каталитической ак тивностью . В составе домена присутствует мотив YMNM. Тирозин мотива YMNM может фосфорилиро ваться киназами семейства src p56lck и p59fyn. Фос форилированный мотив YMNM приобретает способ ность связываться с субъединицей p85 киназы PI3K. Активированная PI3K образует липиды PIP2 и PIP3, которые взаимодействуют с доменами гомологии к плекстрину (PH домены ) фосфоинозитид - зависи - мой протеинкиназы 1 (PDK1) и протеинкиназы В (AKT). PDK1 рекрутирует протеинкиназу PKC θ , что необходимо для последующей активации факторов транскрипции NF- κ B и NFAT.
Молекула CD28 также может связываться с адап - торным белком GRB2 посредством SH2 домена в проксимальном мотиве YMNM или SH3- домена в дистальном мотиве PYAP. GRB2 взаимодействует с молекулами сигнальной трансдукции Vav1, что по тенциально может инициировать два сигнальных комплекса . Инициация комплекса VAV-SOS приводит к активации фактора транскрипции AP1. Взаимо действие Vav1 c комплексом SLP76-LAT последова тельно инициирует активацию PLCy1 киназы , PKC θ киназы и , в конечном итоге , приводит к активации факторов транскрипции NF- κ B и NFAT.
Следует подчеркнуть , что активация NF- κ B и NFAT индуцирует транскрипцию как фактора выживания клеток BCL2L1, так и IL-2, важного Т - клеточного ци токина , необходимого для пролиферации Т - клеток .
Сигнальный путь TIM-3
Основным лигандом рецептора TIM-3 является лектин С-типа – галектин-9 (Galectin-9). Помимо га- лектина-9, TIM-3 может взаимодействовать со следующими лигандами: молекула клеточной адгезии карциноэмбрионального антигена 1 (Ceacam-1), ам-фотерин (иначе – HMGB1, high-mobility group protein B1, белок 1 высокомобильной группы) и фосфати-дилсерин (PS)
Лиганд Galectin-9 представляет собой раствори мый белок с двумя углеводными распознающими доменами . TIM-3 может связываться с Galectin-9 по средством гликозилированного IgV- домена .
Лиганд Ceacam-1 экспрессируется на АПК и ак тивированных Т - лимфоцитах . Этот лиганд и TIM-3 могут взаимодействовать как в цис -, так и в транс положениях . Для гликозилирования и поверх ностной экспрессии TIM-3 необходима совместная экспрессия и цис - взаимодействие с Ceacam1. Транс взаимодействие требуется для ингибирования эф фекторной функции Т - лимфоцитов .
Лиганды HMGB1 и PS в основном регулируют врожденный иммунный ответ . HMGB1 – это негисто новый хроматин - ассоциированный белок , который может секретироваться клетками микроокружения опухоли . HMGB1 связывается с TIM-3 на опухоль - ас - социированных дендритных клетках и блокирует транспорт нуклеиновых кислот из погибших опу холевых клеток в эндосомы дендритных клеток , таким образом подавляя индуцируемый нуклеи новыми кислотами врожденный иммунный ответ . Посредством взаимодействия с лигандом PS, TIM-3 регулирует эффероцитоз , осуществляемый в ден дритных клетках .
Цитоплазматический фрагмент TIM-3, прилегаю щий к трансмембранному домену , не имеет класси ческих ингибирующих и переключающих мотивов ITIM или ITSM, присутствующих в других ингиби рующих рецепторах , но содержит консервативную область из пяти остатков тирозина , два из которых (Tyr 265, Tyr 272) являются критически важными для сопряжения с нисходящими сигнальными путя ми . Пептидные последовательности , окружающие Tyr 265 и Tyr 272, являются высококонсервативны ми и могут функционировать как мотивы связыва ния SH2 домена , взаимодействуя с киназами , имею щими этот домен , а именно : Fyn, Lck, PI3K p85, Itk. Многие из этих киназ являются ключевыми компо нентами сигнального пути T- клеточного рецептора . Таким образом , между TIM-3 и TCR существует функ циональная связь .
Информация о влиянии сигнального пути TIM-3 на эффекторную функцию Т - лимфоцитов являет ся противоречивой . При сверхэкспрессии лиган да Galectin-9 передача сигналов TIM-3 индуцирует гибель Th1- и Th17- клеток , вызывает состояние Т - клеточного истощения . Образование комплекса TIM-3/Galectin-9 приводит к гибели TIM-3+ CD8+ T- лимфоцитов при раке толстой кишки . В то же вре мя в мышиной модели инфекции вирусом острого лимфоцитарного хориоменингита экспрессия TIM-3
способствовала развитию короткоживущих эффек торных Т - клеток , что сопровождалось усилением сигнализации AKT/mTOR.
Bat3 (HLA-B связанный транскрипт 3) может предотвращать TIM-3- индуцированную клеточную гибель . Связываясь с нефосфорилированным цито плазматическим доменом TIM-3, Bat3 рекрутирует каталитически активную форму Lck для проведения сигнала TCR. При взаимодействии TIM-3 с лигандом или антителом происходит диссоциация Bat3, веро ятно , опосредованная фосфорилированием Tyr 265 и Tyr 272, таким образом ингибирующее влияние Bat3 на функцию TIM-3 устраняется .
Высокая экспрессия TIM-3 на T- клетках наблюда ется у пациентов с меланомой , немелкоклеточным раком легких , В - клеточной неходжкинской лимфо мой . Установлено , что экспрессия TIM-3 иницииру ет процесс дисфункции Т - клеток . Рецептор TIM-3, вероятно , снижает функцию Т - клеток в микроокру жении опухоли при колоректальном раке , что может быть патогенетическим звеном роста и прогресси рования опухоли .
Выраженное увеличение уровня TIM-3 и его ли ганда Galectin-9 в сыворотке крови и ткани опухоли у пациентов с колоректальным раком , а также их прямая корреляционная связь , позволяет предполо жить роль этих белков в патогенезе ухода опухоле вых клеток от иммунного надзора при раке толстого кишечника .
Ингибиторы ИКТ
Ключевую роль в противоопухолевом иммунном ответе играют костимулирующие молекулы , такие как CD28. Этот рецептор , экспрессирующийся на Т - клетках , обеспечивает второй сигнал , необходи мый для полной активации Т - клеток , усиливая их пролиферацию , выживаемость и выработку цитоки нов . Взаимодействие CD28 с его лигандами B7 (CD80 и CD86) на АПК является фундаментальным для ин дукции эффективного иммунитета . Исследования показывают , что активация CD28 может потенции - ровать противоопухолевый ответ , индуцированный ИКТ , путем усиления функции Т - клеток . Комбиниро вание ИКТ с агентами , стимулирующими CD28, или использование биспецифических антител , нацелен ных на PD-1/PD-L1 и CD28, является перспективным направлением исследований для преодоления ре зистентности к терапии и улучшения клинических исходов .
Выбор конкретного ингибитора определяется молекулярной архитектурой препарата и его аф финностью к мишеням , что напрямую коррелирует с клинической эффективностью и безопасностью . На сегодняшний день наиболее эффективные пре параты - это моноклональные антитела , различаю щиеся по механизму действия и фармакокинетике .
Пионером направления стал ипилимумаб (Yervoy) – гуманизированное IgG1-антитело, нацеленное на CTLA-4. Его введение в практику доказало возможность значительного увеличения общей выживаемости при метастатической меланоме. Однако блокада CTLA-4 ассоциирована с высокой частотой иммуноопосредованных нежелательных явлений (3-4 степени у 10-20% пациентов), что требует постоянного мониторинга.
Вторая волна препаратов представлена инги биторами оси PD-1/PD-L1, отличающимися более сфокусированным действием . Ниволумаб (Opdivo) и пембролизумаб (Keytruda) являются анти -PD-1 антителами , которые восстанавливают функцию Т - клеток , предотвращая связывание рецептора с лигандами . Ниволумаб часто применяется в комби нациях , тогда как пембролизумаб выделяется своей гибкостью в различных режимах дозирования и ши роким спектром одобренных показаний .
Среди ингибиторов PD-L1 особое место занимает атезолизумаб (Tecentriq). Этот препарат блокирует взаимодействие PD-L1 с PD-1 и B7-1, демонстри руя высокую эффективность при немелкоклеточ ном раке легкого и уротелиальной карциноме . Его структура модифицирована для предотвращения связывания с Fc- рецепторами , что минимизирует антителозависимую клеточную цитотоксичность .
Синергия этих подходов наиболее ярко проявля ется в комбинации Ниволумаба и Ипилимумаба . Та кая терапия , стимулирующая CD28- зависимые пути активации в разных фазах иммунного ответа , обе спечивает глубокий и длительный клинический от вет , особенно в онкологии с высокой мутационной нагрузкой , хотя и требует баланса между агрессив ностью лечения и риском аутоиммунной токсично сти .
Терапия опухолей ингибиторами иммунных контрольных точек
Иммунотерапия ингибиторами ИКТ стала насто ящим прорывом в онкологии , открыв новые гори зонты в лечении многих агрессивных видов опухо лей . Механизм её действия основан на реактивации собственного иммунитета пациента для борьбы с опухолью . Ключевую роль в этом процессе играют Т - лимфоциты , которые активируются при снятии ингибирующих сигналов , идущих от иммунных кон трольных точек . Эти контрольные точки , такие как PD-1 и CTLA-4, являются естественными механиз мами саморегуляции иммунного ответа , предотвра щающими его избыточную активность и развитие аутоиммунных заболеваний . Однако опухолевые клетки часто используют их для уклонения от им мунного надзора , экспрессируя лиганды , которые подавляют активность Т - клеток . Ингибиторы ИКТ , в виде моноклональных антител , блокируют эти взаи модействия , высвобождая потенциал Т - лимфоцитов к уничтожению опухолевых клеток .
Иммунотерапевтические препараты, нацеленные на иммунные контрольные точки, известные как ингибиторы иммунных контрольных точек (ИКТ), продемонстрировали высокую эффектив- ность в лечении нескольких типов рака, включая метастатическую меланому, немелкоклеточный рак легких, почечно-клеточный рак, уротелиальный рак, лимфому Ходжкина и плоскоклеточный рак головы и шеи. К ИКТ относятся моноклональные антитела против белка запрограммированной клеточной гибели -1 (PD-1), лиганда запрограммированной клеточной гибели-1 (PD-L1), белка, ассоциированного с цитотоксическими Т-лимфоцитами-4 (CTLA-4), и гена активации лимфоцитов-3.
Блокирование взаимодействия PD-1/PD-L1 пре пятствует ингибирующему сигналу , передаваемому через PD-1 на Т - лимфоцитах , что приводит к реак тивации Т - клеточного иммунитета против опухоли . Исследования , проведенные H. Ribas и J. P. Allison, показали значительное улучшение выживаемости пациентов с метастатической меланомой при ис пользовании антител к PD-1 ( например , ниволумаб , пембролизумаб ) [2; 3].
Аналогичные успехи были достигнуты и при те рапии таких опухол e й , как рак легкого , рак почки , рак мочевого пузыря и другие . Ингибирование CTLA-4, другого важного рецептора на Т - лимфоцитах , также способствует усилению противоопухолевого иммунитета , особенно на ранних этапах иммунно го ответа . Работы J. Xu и соавт . подчеркивают роль CTLA-4 в контроле Т - клеточной активации , демон стрируя клиническую эффективность иматиниба и других ингибиторов ) [4].
Несмотря на эти успехи , общая частота ответов значительно варьируется в зависимости от типа опу холи , составляя от приблизительно 15% при НМРЛ до 40–50% при меланоме [5]. Кроме того , развива ющиеся нежелательные явления нередко приводят к необходимости проведения срочной терапии этих осложнений , или даже к прекращению проводимого специфического лечения .
Моноклональные антитела ( МКА ) стали также краеугольным камнем в терапии многих онкоге - матологических заболеваний , изменив парадигму лечения и значительно улучшив прогноз для па циентов . Перспективные исследования охватыва ют применение МКА при множественной миеломе ( ММ ), острых лейкозах и других редких гематологи ческих опухолях [6].
Ранние клинические исследования показали впе чатляющие результаты . У пациентов с рефрактерны ми формами лимфом , такими как рецидивирующая или рефрактерная лимфома Ходжкина , ингибиторы ИКТ продемонстрировали высокую частоту ответов , включая полные ремиссии . Аналогичные успехи на блюдаются при некоторых видах неходжкинских лимфом , например , при волосатоклеточном лейкозе и некоторых подтипах B- клеточных лимфом [7; 8].
Методы лечения ММ, как впервые диагностированной, так и рецидивов/рефрактерных форм заболевания, резко изменились за последнее два десятилетия из-за введения иммуномодулирующих препаратов, ингибиторов протеасом, моноклональных антител. Иммунотерапия становится новым стандартом в лечении пациентов, и за последнее десятилетие она получила огромный рост и расширение показаний [9]. В то же время следует отметить, что уже сейчас выбор терапии на различных этапах течения заболевания становится сложной задачей, поскольку врачи стремятся обеспечить наиболее эффективный подход к борьбе с заболеванием, сбалансированный с минимальной токсичностью и сохранением качества жизни [22].
В настоящее время активно проводятся иссле дования по изучению эффективности ингибиторов ИКТ в комбинации с другими методами лечения , такими как химиотерапия , иммунотерапия другими препаратами (CAR-T- клеточная терапия ), а также с таргетной терапией [11]. Изучаются новые мишени для ИКТ , разрабатываются более избирательно дей ствующие препараты с меньшей токсичностью . Осо бое внимание уделяется биомаркерам , позволяю щим прогнозировать ответ на терапию и выявлять пациентов , которые получат максимальный эффект от лечения ингибиторами ИКТ [12].
Иммуноопосредованные нежелательные яв ления при терапии ингибиторами ИКТ
Ингибиторы ИКТ открыли новые возможности в лечении онкологических заболеваний там , где традиционные методы , такие как химиотерапия и трансплантация стволовых клеток , оказались неэф фективны . Однако клинические результаты остают ся крайне вариабельными у разных пациентов и при разных видах опухолей . Хотя такие внутриопухоле - вые факторы , как экспрессия PD-L1 и мутационная нагрузка опухоли , обладают некоторой прогности ческой ценностью , они не полностью объясняют гетерогенность ответа [13]. У пациентов с низкой или отсутствующей экспрессией иногда наблюда ются устойчивые ответы , в то же время , неудача в лечении может произойти , несмотря на высокую экспрессию PD-L1 [14]. Эти данные свидетельству ют о том , что факторы , выходящие за рамки локаль ных характеристик опухоли , вносят значительный вклад в эффективность терапии [15].
Несмотря на значительные успехи , применение ингибиторов ИКТ также сопряжено с риском раз вития иммуноопосредованных нежелательных яв лений ( ИНЯ ). Эти осложнения могут затрагивать любой орган - мишень , включая кожу , желудочно кишечный тракт , органы эндокринной системы и легкие . Частота и тяжесть осложнений варьируют в зависимости от типа ингибиторов ИКТ , дозировки и индивидуальных факторов пациента . Своевремен ная диагностика и соответствующая терапия таких осложнений , как правило , с использованием корти костероидов , имеют решающее значение для пре дотвращения необратимых повреждений органов и улучшения качества жизни пациентов [16].
Ингибиторы ИКТ действуют, блокируя сигналь- ные пути, которые в норме подавляют активность Т-лимфоцитов – ключевых клеток иммунной системы. Однако, поскольку эти сигнальные пути играют роль и в поддержании толерантности к собственным тканям, их активация может привести к тому, что Т-лимфоциты начнут атаковать здоровые клетки и органы.
Важно отметить , что ИНЯ могут развиваться в любое время – от нескольких дней до месяцев и даже лет после начала терапии . Их тяжесть варьирует от незначительных , легко поддающихся коррекции , до жизнеугрожающих состояний . Наиболее частыми являются кожные реакции ( сыпь , зуд ), а также диа рея и эндокринопатии ( тиреоидит , гипофизит ) [17; 18]. Частыми осложнениями , кроме зуда , являются кореподобные экзантемы , витилиго и лихеноидный дерматит [19].
В совокупности различные клинические особен ности иммуноопосредованных нежелательных яв лений затрудняют их изучение и прогнозирование , поскольку на момент начала терапии ингибиторами ИКТ неясно , у кого из пациентов разовьется токсич ность и в какой системе органов . При этом важней шим условием успешного лечения является своев ременная диагностика и адекватная терапия ИНЯ , часто с использованием кортикостероидов [20; 21].
В метаанализе , оценивающем ИНЯ , ассоцииро ванные с антителами к CTLA-4, кожные токсические реакции были зарегистрированы более чем в 40% случаев . Другие иммуноопосредованные нежела тельные явления влияли на желудочно - кишечный тракт и эндокринные органы [22].
Спектр проявлений наиболее распространенных осложнений весьма разнообразен , что подтвержда ется большинством авторов . К наиболее частым из них относятся :
-
• Кожные реакции : сыпь ( макуло - папулезная , ве зикулярная ), зуд , сухость кожи , крапивница . В более редких случаях могут развиваться буллезные пора жения , синдром Стивенса - Джонсона или токсиче ский эпидермальный некролиз .
-
• Желудочно - кишечные расстройства : диарея , тошнота , рвота , боли в животе . Наиболее серьезным осложнением является иммуноопосредованный ко лит , который может проявляться значительной диа реей , кровью в стуле и обезвоживанием .
-
• Эндокринные нарушения : гипотиреоз и гипер тиреоз . Гипофизит , который может вызвать дефи цит различных гормонов , включая АКТГ , ТТГ , ЛГ , ФСГ , приводя к надпочечниковой недостаточности , гипотиреозу и другим эндокринным нарушениям . Сахарный диабет 1 типа .
-
• Гепатит : проявляется повышением уровня пе ченочных ферментов ( АЛТ , АСТ ), желтухой .
-
• Пневмонит : может проявляться кашлем , одыш кой , болью в груди . Тяжелый пневмонит может при вести к дыхательной недостаточности .
-
• Нефропатия : проявляется изменением показа -
- телей функции почек (креатинин, мочевина), отеками, протеинурией.
-
• Неврологические осложнения : периферическая нейропатия , миастения гравис , энцефалит , менин гит . Эти осложнения встречаются реже , но могут быть достаточно серьезными .
-
• Кардиологические осложнения : миокардит , пе рикардит . Эти состояния могут проявляться болью в груди , одышкой , аритмиями и требуют немедленно го медицинского вмешательства .
-
• Артралгии и миалгии .
-
• Офтальмологические проявления : увеит , конъ юнктивит , сухость глаз .
В настоящее время отсутствуют конкретные прогностические факторы риска развития иммуно - опосредованных побочных эффектов . Однако было показано , что результаты некоторых лабораторных исследований , включая абсолютное количество эо зинофилов и относительное количество лимфоци тов , коррелируют с общей частотой возникновения иммуноопосредованных осложнений [23]. Также со общалось о важности соотношения тромбоцитов к лимфоцитам для прогнозирования исходов у онко логических больных , получающих лечение ингиби торами ИКТ [24].
Раннее выявление ИНЯ имеет решающее значе ние для успешного лечения и предотвращения раз вития необратимых повреждений органов .
Роль генов HLA в развитии осложнений при тера пии ингибиторами иммунных контрольных точек
Поскольку активация иммунной системы неизбежно ведет к развитию иммуноопосредованных нежелательных явлений, варьирующихся от легких дерматологических проявлений до жизнеугрожающих поражений органов, обусловленных гиперактивацией Т-лимфоцитов, которые атакуют как опухолевые, так и нормальные клетки организма, особый интерес представляют исследования, связывающие развитие ИНЯ с индивидуальными особенностями экспрессии главного комплекса гистосовместимости HLA у пациентов. Вариации генотипа HLA все чаще признаются значимыми факторами, связанными с организмом хозяина, которые модулируют ответ на ингибиторы ИКТ [25]. Разнообразие аллелей HLA определяет репертуар пептидов, которые могут быть представлены, напрямую влияя на широту и специфичность противоопухолевого Т-клеточного ответа. Специфические аллели HLA связывают с различными результатами терапии ингибиторами ИКТ. Например, исследования показали, что определенные генотипы HLA класса II, такие как HLA-DRB4, могут служить прогностическими биомаркерами выживаемости после иммунотерапии. У пациентов с метастатическим немелкоклеточным раком легких наличие HLA-DRB4 коррелирует с улучшением общей выживаемости (ОВ.) И, напротив, определенные типы HLA связаны с восприимчивостью к имму-ноопосредованным нежелательным явлениям. Так, аллель HLA-DRB401 связан с повышенной вероятностью развития эндокринных ИНЯ у пациентов, получающих лечение ингибиторами ИКТ [26].
Другие исследователи показали связь аллелей HLA класса I, таких как HLA-A02:01 , с эффективно стью и токсичностью терапии ингибиторами ИКТ , однако результаты могут различаться в зависимости от типа рака и популяции обследуемых когорт [27].
Хотя результаты некоторых исследований пред полагают потенциальную корреляцию между спец ифическими типами HLA ( например , HLA-B35, HLA-DRB1:11 ) и частотой возникновения определенных ИНЯ , таких как иммуноопосредованный пневмонит , они требуют дальнейших крупномасштабных про спективных исследований для подтверждения этих ассоциаций и выяснения лежащих в их основе меха низмов . Сложное взаимодействие между генотипом HLA, презентацией антигенов и иммунным ответом подчеркивает важность типирования HLA при раз работке персонализированных стратегий терапии ингибиторами ИКТ , тем самым оптимизируя эффек тивность при минимизации токсичности .
Специфичность HLA-генотипа пациента может влиять на предрасположенность к тем или иным осложнениям, поскольку определенные типы HLA, как известно, связаны с аутоиммунными заболеваниями [28], поэтому типирование HLA может служить потенциальным инструментом скрининга для выявления пациентов с повышенным риском развития ИНЯ. Исследования показали, что носители определенных аллелей локусов HLA-A, HLA-B и HLA-DR могут иметь повышенный риск развития таких осложнений, как, например, аутоиммунный тиреоидит или воспалительные заболевания кишечника. Было выявлено, что аллели HLA-DRB104:01 коррелировали с повышенным риском развития аутоиммунного гепатита у пациентов, получавших ингибиторы PD-1, в то время как HLA-A02:01 ассоциировался как с более высокой эффективностью терапии, так и с повышенным риском кожных реакций [29]. Эти наблюдения подчеркивают, что индивидуальные различия в структуре молекул HLA могут влиять на то, какие пептиды (включая опухолевые или эндогенные) будут эффективно презентированы Т-клеткам, и, как следствие, на интенсивность и направленность иммунного ответа.
Несколько небольших исследований также про демонстрировали связь аллелей HLA с ИНЯ и исхода ми лечения пациентов при терапии ингибиторами контрольных точек иммунитета [30; 31]. В част ности , аллель HLA-A*03 был связан с уменьшением времени выживания без прогрессирования заболе вания после иммунотерапии [32], тогда как иссле дование 113 пациентов с метастатической мелано мой показало , что отсутствие супертипов HLA-B62 и HLA-B27 было связано с улучшением выживаемости при получении терапии анти -PD-1 [33].
Что касается побочных эффектов , то у пациентов с определенными аллелями HLA, получавших лече ние антителами к CTLA-4 и анти -PD-1, наблюдалось усиление зуда , в то время как другие аллели были связаны со сниженной вероятностью иммуноопос - редованных побочных эффектов . Вариабельность человеческих лейкоцитарных антигенов связана с побочными эффектами ингибиторов контрольных точек , что было показано как в ранних , так и более поздних работах [34; 35].
Группой американских исследователей был про веден ретроспективный метаанализ медицинских карт 515 пациентов с меланомой , прошедших тера пию ингибиторами ИКТ , как в виде монотерапии , так и в различных комбинациях , и имевших дан ные о типировании HLA. Этот анализ , с акцентом на кожные иммуноопосредованные нежелательные явления , охватывает период с 2003 по 2023 год . Учитывая важность PD-1 и CTLA-4 в подавлении ау тореактивных Т - клеточных ответов , авторы пред положили , что именно генетические факторы , свя занные с аутоиммунитетом , могут быть связаны с иммуноопосредованными побочными эффектами у пациентов . Цель состояла в том , чтобы определить , подтверждаются ли сообщенные ранее ассоциации аллелей в более широком масштабе , и установить дополнительные положительные или отрицатель ные ассоциации [36]. Поскольку пациенты проходи ли лечение в различных клиниках и в разное время , используемые препараты также были различными ( Таблица 1).
Таблица 1
Целевая направленность различных ингибиторов ИКТ [36]
|
Целевая направленность |
Название препарата |
|
CTLA‐4 (cytotoxic T‐lymphocyte– associated protein 4) |
Ипилимумаб (Ipilimumab) Тремелимумаб (Tremelimumab) |
|
PD-1 (programmed cell death protein 1) |
Ниволумаб (Nivolumab) Пембролизумаб (Pembrolizumab) Цемиплимаб (Cemiplimab) Достарлимаб (Dostarlimab) |
|
PD-L1 (programmed death‐ligand 1) |
Атезолизумаб (Atezolizumab) Авелумаб (Avelumab) Дурвалумаб (Durvalumab) |
|
LAG‐3 (lymphocyte‐activation gene 3) |
Релатлимаб (Relatlimab) |
Оценивалась связь аллелей HLA именно с кожны ми ИНЯ при терапии ингибиторами ИКТ , поскольку предыдущие исследования продемонстрировали сильные ассоциации между аллелями HLA при кож ных заболеваниях , таких как псориаз , атопический дерматит , витилиго и красный плоский лишай , а так же ассоциации между аллелями HLA и лекарствен но - индуцированными дерматозами [37–40]. Прове денный анализ показал , что аллель HLA-B*51:01 был связан с более высоким риском развития кожных поражений . Это самое крупное исследование , свя зывающее аллель HLA с кожными осложнениями , вызванными ингибиторами ИКТ . Предыдущие ис следования других авторов убедительно связывали этот аллель HLA с болезнью Бехчета и острой реак цией « трансплантат против хозяина » [41; 42].
Примечательно , что HLA-B*51:01 также ассоци ировался с кожными проявлениями , связанными с приемом лекарственных препаратов . В исследо вании , проведенном с участием около 150 тайских пациентов , была выявлена связь с возникновением синдрома Стивенса - Джонсона , токсического эпи дермального некролиза , и лекарственной реакции с эозинофилией и системным синдромом на фоне лечения фенитоином [43]. Аналогично , HLA*B51:01 был связан с тяжелыми кожными побочными ре акциями , вызванными фенитоином , в небольшом исследовании пациентов с эпилепсией из Южной Индии [44] и с кожными побочными реакциями , вы званными клиндамицином , у представителей ки тайской национальности хань [45].
С биологической точки зрения , аллели HLA игра ют фундаментальную роль в формировании репер туара Т - клеток . В тимусе развивающиеся тимоциты должны быть способны связывать собственные HLA с достаточно высокой аффинностью , чтобы под вергнуться положительной селекции и выжить , но одновременно и с приемлемо слабой , чтобы не быть признанными аутореактивными и не подвергнуть ся отрицательной селекции . Репертуар пептидов , которые могут связываться , варьирует в зависимо сти от различных аллелей HLA, при этом некоторые аллели HLA, как это установлено , имеют более вы сокую способность к связыванию пептидов , что по зволяет отбирать более склонный к аутоиммунным заболеваниям репертуар Т - клеток . Чем больше ауто реактивных клонов Т - клеток присутствует в преим - мунном репертуаре , тем выше вероятность того , что у человека нарушится толерантность к Т - клеткам и в последующем разовьются аутоиммунные реакции .
Учитывая связь HLA*B51:01 с кожными иммуноо-посредованными побочными эффектами, возможно, что HLA*B51:01 связывает пептиды, которые способствуют отбору репертуара Т-клеток, реагирующих преимущественно на ткани кожи. В дополнение к влиянию HLA на репертуар Т-клеток, вырабатывающихся у пациента, существуют также доказательства того, что некоторые лекарственные препараты мо- гут напрямую взаимодействовать с молекулой HLA и Т-клеточным рецептором, вызывая Т-клеточные опосредованные реакции гиперчувствительности IV типа к лекарственным препаратам.
Хотя значительная токсичность наблюдалась как при применении анти -CTLA-4, так и ингибиторов анти -PD-1/PD-L1 в качестве монотерапии , однако значительно более высокая частота ИНЯ была за регистрирована при использовании анти -CTLA-4 и анти -PD-1 в качестве комбинированной терапии [46]. Предпринимаются значительные усилия для опреде ления того , перевешивает ли увеличение эффектив ности , наблюдаемое при комбинированной терапии , отрицательное воздействие токсичности . При ис пользовании комбинированной терапии с помощью метаанализа установили , что в 88% случаев сообща лось о связанных с лечением нежелательных явлени ях , включая слабость , диарею , зуд и сыпь . Такие неже лательные явления могут потребовать приостановки лечения , изменения дозировки или полного прекра щения терапии . В частности , при комбинированной терапии приблизительно 20% пациентов прекрати ли лечение из - за связанных с лечением побочных эф фектов [47].
Следует отметить , что система HLA является лишь одним , безусловно важным , компонентом общего иммунного профиля пациента , и имеет сложную кор реляционную связь с аутоиммунным заболеванием и ответом на иммунотерапию . Например , хотя нали чие определенных вариантов HLA увеличивает риск развития аутоиммунитета , эти варианты не гаран тируют , что клинические проявления аутоиммунных реакций разовьются . Организм эволюционировал , чтобы иметь несколько недублирующих друг друга механизмов центральной и периферической толе рантности для ограничения неадекватной актива ции адаптивного иммунного ответа на собственные ткани . Следовательно , дополнительные генетиче ские биомаркеры , вероятно , могут быть использова ны как изолированно , так и в комбинации с аллелями HLA для повышения прогностической способности в отношении того , будут ли пациенты более или менее восприимчивы к развитию ИНЯ в процессе лечения ИКТ при злокачественных новообразованиях . Гено типирование HLA у пациентов может быть ценным для прогнозирования риска ИНЯ у пациентов , начи нающих терапию ингибиторами ИКТ .
Дальнейшее изучение взаимосвязи между HLA-фенотипом и спектром ИНЯ открывает перспективы для персонализации иммунотерапии. Возможно, в будущем станет реальностью прогнозирование риска развития конкретных осложнений на основе HLA-типирования пациента. Такой подход позволит проводить более тщательный мониторинг, превентивные мероприятия и, при необходимости, более активное купирование ИНЯ, тем самым повышая безопасность и эффективность терапии ингибиторами иммунных контрольных точек. Сложное взаимодей- ствие между генотипом HLA, презентацией антигенов и иммунным ответом подчеркивает важность типирования HLA при разработке персонализированных стратегий терапии ингибиторами ИКТ, тем самым оптимизируя эффективность при минимизации токсичности.
Заключение . Все больше данных подчеркива ет критическую роль факторов , связанных с орга низмом хозяина , в модулировании эффективности ингибиторов ИКТ , включая исходную иммунную компетентность организма , влияние генотипа HLA, разнообразие репертуара Т - клеток , профили цитоки нов и биомаркеры периферической крови . Также рас сматривается влияние и эпигенетической регуляции на иммунные ответы . Исследуется роль микробиома кишечника и его метаболитов , а также влияние мета болического статуса , питания и образа жизни . Кроме того , обсуждаются эффекты сопутствующих лекар ственных препаратов и сопутствующих заболеваний .
Метаболические факторы и факторы образа жиз ни , включая ожирение , липидный и глюкозный об мен , пищевой статус и физическая активность также взаимодействуют с иммунными функциями . Ожире ние , например , парадоксальным образом связано как с усилением , так и с ослаблением реакции на ингиби торы ИКТ в различных ситуациях , отражая сложные иммунометаболические взаимодействия [48].
В совокупности эти наблюдения подчеркивают роль индивидуальных характеристик пациента в до- стижении эффективности ингибиторов ИКТ. Изучение различных факторов, связанных с организмом хозяина, сможет улучшить стратификацию пациентов и способствовать разработке персонализированных стратегий иммунотерапии [49].
Наблюдаемая гетерогенность в ответах пациентов на ингибиторы ИКТ подчеркивает необходимость в прогностических биомаркерах , которые могут спо собствовать выбору лечения и смягчать побочные эффекты . В эпоху персонализированной иммунотера пии все более важным становится исследование того , как генетические характеристики человека влияют на его ответ на фармакологические препараты .
