
Исследование взаимодействия биологически активных пептидов из сои с молекулами АПФ и ДПП-4 методом молекулярного докинга
Журнал: Вестник Мурманского государственного технического университета @vestnik-mstu
Рубрика: Биотехнология пищевых продуктов и биологически активных веществ
Статья в выпуске: 3 т.29, 2026 года.
Бесплатный доступ
Методом молекулярного докинга оценена ингибирующая активность двух биологически активных пептидов соевого происхождения (IIVVQGKGAIGF и VIPPGVPYWTYNT) в отношении ангиотензинпревращающего фермента (АПФ) и дипептидилпептидазы-4 (ДПП-4). В качестве эталонов сравнения использованы синтетические препараты каптоприл и ситаглиптин. Трехмерные структуры пептидов предсказаны с помощью веб-сервера PEP-FOLD4, процедура докинга выполнена в программе AutoDock Vina на основе кристаллических структур из базы PDB (коды 1O86 и 1X70). Результаты показали, что оба пептида демонстрируют статистически значимо более высокую аффинность к АПФ (от –9,07 до –10,46 ккал/моль) по сравнению с каптоприлом (–5,40 ккал/моль). В случае ДПП-4 пептид VIPPGVPYWTYNT превзошел ситаглиптин (–8,56 против –7,86 ккал/моль), тогда как IIVVQGKGAIGF уступил референсу по энергии связывания. Анализ межмолекулярных взаимодействий выявил образование множественных связей с ключевыми остатками активных центров, однако лишь часть контактов локализованы непосредственно в каталитической зоне, что указывает на высокую общую аффинность при потенциально меньшей селективности по сравнению с синтетическими аналогами. Полученные in silico данные подтверждают высокий терапевтический потенциал исследуемых пептидов и обосновывают необходимость их химического синтеза и дальнейшей экспериментальной проверки in vitro и in vivo.
Короткий адрес: https://sciup.org/142248713
IDS: 142248713 | УДК: 664.38; 543.645.6; 577.112.6 | DOI: 10.21443/1560-9278-2026-29-3-361-376
Study of the interaction of biologically active soy peptides with ACE and DPP-4 molecules using molecular docking
The inhibitory activity of two biologically active peptides of soy origin (IIVVQGKGAIGF and VIPPGVPYWTYNT) against angiotensin converting enzyme (ACE) and dipeptidyl peptidase-4 (DPP-4) has been evaluated by molecular docking. Synthetic drugs captopril and sitagliptin have been used as comparison standards. The three-dimensional structures of the peptides are predicted using the PEP-FOLD4 web server, and the docking procedure is performed in the AutoDock Vina program based on crystal structures from the PDB database (codes 1O86 and 1X70). The results have shown that both peptides demonstrate statistically significantly higher affinity for ACE (from –9.07 to –10.46 kcal/mol) compared with captopril (–5.40 kcal/mol). In the case of DPP-4, the VIPPGVPYWTYNT peptide has surpassed sitagliptin (–8.56 versus –7.86 kcal/mol), while IIVVQGKGAIGF is inferior to the reference in binding energy. The analysis of intermolecular interactions has revealed the formation of multiple bonds with key residues of active sites, however, only a part of the contacts are localized directly in the catalytic zone, which indicates a high overall affinity with potentially lower selectivity compared to synthetic analogues. The data obtained in silico confirm the high therapeutic potential of the studied peptides and substantiate the need for their chemical synthesis and further experimental verification in vitro and in vivo.
Текст научной статьи Исследование взаимодействия биологически активных пептидов из сои с молекулами АПФ и ДПП-4 методом молекулярного докинга
DOI:
e-mail: , ORCID:
Фоменко В. В. и др. Исследование взаимодействия биологически активных пептидов из сои с молекулами АПФ и ДПП-4 методом молекулярного докинга. Вестник МГТУ. 2026. Т. 29, № 3. С. 361–376. DOI:
*Russian Biotechnological University (ROSBIOTECH), Moscow, Russia; e-mail: , ORCID:
Биологически активные пептиды представляют собой небольшие изолированные фрагменты белков, которые обладают уникальной физиологической активностью, выходящей за рамки основных потребностей в питании ( Fan et al., 2022; Guo et al., 2026 ). Эти вещества образуются при гидролитическом расщеплении белковых молекул и проявляют широкий спектр биологической активности: противовоспалительное, антиоксидантное, нейропротекторное, противомикробное действие ( Liu et al., 2022; Wang et al., 2022a; Tornesello et al., 2020; Zhang et al., 2023 ) . Биоактивные пептиды, получаемые из пищевых продуктов, представляют большой интерес для изучения, поскольку они могут быть полезны для здоровья и способствовать лечению различных заболеваний ( Nasri et al., 2022 ). Существуют различные способы получения биологически активных пептидов – ферментативный гидролиз, химический гидролиз, ферментация микроорганизмами ( Nasri et al., 2022; Akbarian et al., 2022; Wang et al., 2022b ). Использование протеаз – наиболее распространенный способ получения биоактивных пептидов, поскольку для достижения нужной степени гидролиза требуется меньше времени, а сам процесс хорошо воспроизводим и легко контролируется. В этом процессе используются различные ферментные препараты, такие как пепсин, бромелаин, трипсин, папаин и т. д. при оптимальном для них водородном показателе и температуре ( Akbarian et al., 2022; Wang et al., 2022b ). Источниками биологически активных пептидов могут быть морепродукты, мясные и молочные продукты, растительные белки и т. д. ( Ovchinnikova, 2021; Guha et al., 2021; Montesano et al., 2020 ).
Среди наиболее интересных свойств биоактивных пептидов из пищевых продуктов является свойство ингибировать ангиотензинпревращающий фермент (АПФ) и дипептидилпептидазу 4 (ДПП-4). Несмотря на более низкую фармакологическую эффективность, чем у синтетических препаратов, потенциал пептидов как функциональных пищевых ингредиентов получил широкое признание ( Zhao et al., 2025 ). Они могут применяться в качестве пищевых ингредиентов как в очищенном виде, так и в составе белковых гидролизатов, позволяя получать обогащенные биологически активными веществами функциональные продукты питания ( Zambrowicz et al., 2013; Peighambardoust et al., 2021; Lorenzo et al., 2018 ).
Ингибиторы АПФ часто назначаются для лечения гипертонии и других хронических заболеваний, в том числе сердечной недостаточности и хронической болезни почек. Эти препараты подавляют активность АПФ – фермента, который отвечает за превращение ангиотензина I в ангиотензин II. Подавление синтеза ангиотензина II способствует снижению артериального давления. Ингибиторы АПФ являются препаратами первой линии для лечения артериальной гипертензии наряду с тиазидными диуретиками, блокаторами кальциевых каналов и блокаторами рецепторов ангиотензина ( Cutrell et al., 2023 ) . Современные ингибиторы АПФ могут вызывать некоторые побочные эффекты, среди которых наиболее распространены гипотония после приема первой дозы, нарушение функции почек, гиперкалиемия и кашель ( Zheng et al., 2022a ). Биологически активные пептиды, способные ингибировать АПФ, могут стать перспективными натуральными веществами, применяемыми для лечения и профилактики гипертонии ( Jo et al., 2024 ).
ДПП-4 – это сериновая протеаза, ингибирование которой представляет значительный интерес в контексте разработки новых методов лечения сахарного диабета 2-го типа. Также было обнаружено, что ингибиторы ДПП-4 полезны для пациентов с COVID-19 ( Petrov et al., 2025 ) . ДПП-4 запускает катализ инсулинотропных гормонов, снижая уровень эндогенного инсулина и повышая уровень глюкозы в плазме крови. В области разработки лекарственных препаратов ингибиторы ДПП-4 открывают широкие возможности для создания гипогликемических средств, регулирующих активность инкретинов и снижающих уровень глюкозы в крови. Однако применение синтетических препаратов может быть сопряжено с различными побочными эффектами ( Chhabria et al., 2022 ). Также как и для АПФ, биологически активные пептиды, ингибирующие ДПП-4, рассматриваются как подходящие вещества для длительного терапевтического воздействия у больных сахарным диабетом 2-го типа ( Zhao et al., 2025 ) .
Методы биоинформатики открывают новые возможности в предсказании биоактивности пептидов. Одним из таких методов является молекулярный докинг, с помощью которого можно визуализировать механизм взаимодействия между лигандами и рецепторами на атомном уровне. Эта возможность делает молекулярный докинг самым популярным методом биоинформатики для изучения механизма действия факторов, влияющих на фармакологию ( Du et al., 2023 ).
В ходе исследования влияния трипсина и пепсина на белок сои в нашей прошлой работе были идентифицированы пептиды IIVVQGKGAIGF и VIPPGVPYWTYNT, для которых по результатам in silico анализа были предсказаны способности к ингибированию АПФ и ДПП-4 при помощи инструмента BIOPEP-UWM, однако моделирования взаимодействия этих пептидов с АПФ и ДПП-4 не проводилось ( Фоменко и др., 2026 ).
Целью работы является использование методов молекулярного докинга для оценки способности новых пептидных молекул ингибировать АПФ и ДПП-4, сравнение рассчитанных параметров связывания с характеристиками традиционных препаратов для оценки перспективности данных пептидов в качестве основы для дальнейших исследований in vitro и in vivo , а также применения в качестве функциональных ингредиентов в продуктах питания.
Материалы и методы
Подготовка рецепторных моделей и лигандов
Для проведения молекулярного докинга в качестве рецепторных моделей были использованы кристаллические структуры ферментов дипептидилпептидазы-4 (ДПП-4, PDB ID: 1X70) и ангиотензинпревращающего фермента (АПФ, PDB ID: 1O86), депонированные в базе данных Protein Data Bank (URL: .
Координаты центра области для молекулярного докинга определяли на основе анализа положения ко-кристаллизованных лигандов в исходных рентгеновских структурах белков-мишеней, а также с учетом литературных данных о локализации субстрат-связывающих карманов. Для этого трехмерные модели белков (АПФ, код PDB 1O86; ДПП-4, код PDB 1X70) загружали в программу PyMOL. С помощью инструмента выбора выделяли атомы ко-кристаллизованных лигандов, после чего определяли геометрический центр масс выделенной группы атомов. Полученные координаты центра масс использовали в качестве центра области для докинга. Для АПФ центр был установлен в точке (41,68; 38,31; 46,65) Å, для ДПП-4 – в точке (77,58; 55,80; 36,40) Å. Размеры области подбирали таким образом, чтобы они полностью охватывали предполагаемый сайт связывания. Стоит отметить, что для модели ДПП-4 активный центр был обнаружен в цепи B. Цепь А от цепи В не отличается по геометрии и аминокислотному составу, каждая из них формирует собственный активный центр. Поэтому выбор цепи B в качестве референса для определения координат центра области докинга является корректным, а полученные результаты достоверными.
Перед проведением докинга рецепторные структуры были подвергнуты стандартной подготовке с использованием пакета AutoDock Tools v.1.5.7. Выполнены следующие операции: удаление молекул воды и посторонних лигандов, не участвующих в катализе; добавление полярных атомов водорода; присвоение частичных зарядов по методу Гастейгера; конвертация форматов файлов в .pdbqt, совместимый с AutoDock Vina.
Структуры референсных лигандов – каптоприла (ингибитор АПФ) и ситаглиптина (ингибитор ДПП-4) – были получены из базы данных PubChem (URL: в формате .sdf. Конвертация форматов и генерация трехмерных моделей осуществлялись с помощью программного обеспечения Open Babel v.3.1.1, позволяющего обеспечить корректное присвоение типов атомов и стереохимии. Для визуализации химической структуры лигандов использовали сервисы: PubChem Sketcher V2.4 (URL: и PepDraw (URL: .
Модели трехмерной структуры пептидных лигандов были построены методом de novo с использованием веб-сервера PEP-FOLD4 (URL: . Данный сервер предназначен для предсказания структуры коротких линейных пептидов, состоящих из 5–40 аминокислот. Для каждой последовательности генерируется множество моделей (по умолчанию 100), которые затем группируются в кластеры по их структурному сходству.
Параметры молекулярного докинга
Докинг проводили с использованием программы AutoDock Vina v.1.2.7. Параметры поисковой области (grid box) были установлены следующим образом: размер области 50×50×50; центр – координаты, указанные выше, определенные на основе координат ко-кристаллизованных лигандов и каталитических остатков; остальные параметры по умолчанию. Для каждого лиганда выполнялось 9 независимых запусков. Выходные данные включали до 9 наиболее энергетически выгодных конформаций с энергией связывания в пределах 3 ккал/моль от наилучшего результата. Для дальнейшего анализа выбирали модель с наименьшей энергией связывания.
Визуализацию молекулярных структур и анализ межмолекулярных взаимодействий проводили с использованием программы Discovery Studio Visualizer (Dassault Systèmes, Франция). Конвертация файлов формата .pdbqt обратно в .pdb для визуализации выполнялась в PyMOL v.2.5. Для построения двумерных моделей взаимодействия использовали LigPlot+. При этом для детальной оценки межмолекулярных связей анализ проводили согласно данным Discovery Studio Visualizer, так как данная программа учитывает слабые взаимодействия (гидрофобные, электростатические и прочее), а также предоставляет возможность удобно работать с информацией, воспроизводя таблицу с детальным описанием стыковочных данных.
Валидация и статистический анализ
Значимость различий в энергиях связывания между группами лигандов оценивали с помощью двухвыборочного t -теста Стьюдента (двусторонний, уровень значимости α = 0,05) с поправкой Бонферрони для множественных сравнений. Расчеты выполняли в программе Microsoft Excel.
Молекулярно-структурная характеристика рецепторов и лигандов
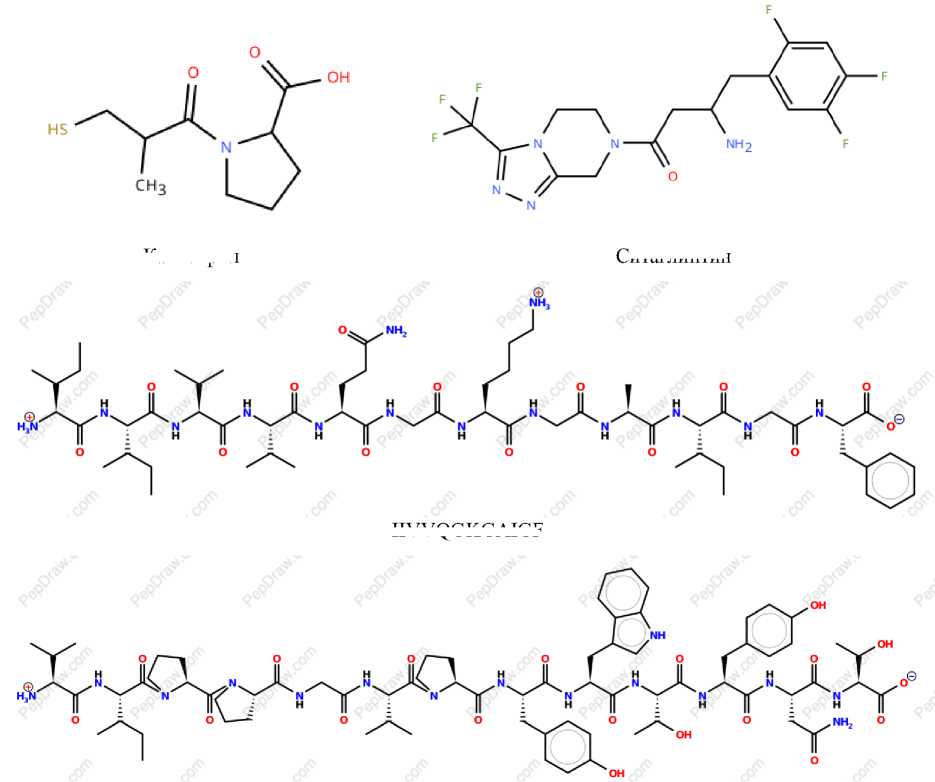
На рис. 1 представлены молекулярные структуры изучаемых пептидов и референсных молекул.
Каптоприл широко используется для лечения гипертонии и сердечной недостаточности и является мощным и специфическим ингибитором АПФ. Он имеет молекулярную формулу C9H15NO3S и молекулярную массу около 217 Да (Khamanga et al., 2011; Stoiljkovic et al., 2025). Ситаглиптин является пероральным ингибитором ДПП-4, способным улучшать контроль уровня глюкозы в крови, подавляя активность этого фермента и тем самым замедляя инактивацию глюкагоноподобного пептида-1 и глюкозозависимого инсулинотропного полипептида. Эмпирическая химическая формула этого вещества C16H15F6N5O, а молекулярная масса равна примерно 407 Да (Sotoudeheian et al., 2025).
Каптоприл
Ситаглиптин
IIVVQGKGAIGF
VIPPGVPYWTYNT
Рис. 1. Химические структуры изучаемых лигандов Fig. 1. Chemical structures of the studied ligands
Ангиотензинпревращающий фермент (АПФ) представляет собой цинк-зависимую дипептидазу. Данный фермент выполняет ключевую биологическую функцию в ренин-ангиотензиновой системе, катализируя превращение биологически неактивного ангиотензина I в мощный сосудосуживающий пептид – ангиотензин II. Это свойство превращает фермент в важную мишень для лечения гипертонии и сердечно-сосудистых заболеваний ( Zheng et al., 2022a; Jo et al., 2024 ) . АПФ человека состоит из двух доменов – N-домена и C-домена. Оба домена содержат цинк-связывающий мотив. АПФ имеет три основных активных узла (S1, S2 и S1’). Карман S1 включает остатки ALA354, GLU384 и TYR523; карман S2 – остатки GLN281, HIS353, LYS511, HIS513 и TYR520; карман S1’ содержит остаток GLU162. Тетраэдрический комплекс, который Zn2+ образует с HIS387, HIS383 и GLU411, имеет решающее значение для аффинности связывания АПФ с ингибиторами ( Jo et al., 2024; Wu et al., 2023; Zheng et al., 2022b; Shao et al., 2023 ) .
ДПП-4 представляет собой мембраносвязанный белок, функционирующий в виде димера, состоящего из двух идентичных субъединиц. Данный фермент находится на поверхности клеток различных тканей и играет ключевую роль в клеточной сигнализации, воспалительных процессах и инактивации гормонов. ДПП-4 имеет три ключевых активных участка: S1 (TYR547, SER630, TYR631, VAL656, TRP659, TYR666, ASN710, VAL711 и HIS740), S2 (ARG125, GLU205, GLU206 и TYR662) и S3 (SER209, PHE357 и ARG358). Каталитическая триада (SER630, HIS740 и ASP708) находится в углублении, окруженном гидрофобными остатками. Остатки TYR547, TRP629 и LYS554 играют важную роль в связывании активного центра комплексов фермента-ингибитора. Остаток TRP629 образует каталитический карман в ДПП-4, а TYR547 стабилизирует оксианион в каталитическом центре (Fang et al., 2025; Mathur et al., 2023).
Пептиды IIVVQGKGAIGF и VIPPGVPYWTYNT были обнаружены в гидролизатах соевого белка, обработанных последовательным гидролизом трипсином/пепсином и отдельно пепсином (обе последовательности присутствуют в различных субъединицах глицинина сои). Молекулярная масса пептидов составляла 1 200 и 1 506 Да соответственно. Для них были спрогнозированы свойства ингибировать АПФ и ДПП-4 при помощи базы данных BIOPEP-UWM в нашей прошлой работе ( Фоменко и др., 2026 ).
Результаты и обсуждение
Анализ аффинности пептидов к ДПП-4 и АПФ
В ходе работы были проанализированы энергии связывания пептидов IIVVQGKGAIGF и VIPPGVPYWTYNT с АПФ и ДПП-4. В качестве эталонных молекул использовали каптоприл и ситаглиптин. В табл. 1 представлены энергии связывания используемых рецепторов с пептидами и эталонными молекулами.
Таблица 1. Энергии связывания изучаемых молекул с ДПП-4 и АПФ Table 1. Binding energies of the studied molecules with DPP-4 and ACE
|
Рецептор |
АПФ |
ДПП-4 |
|||||
|
Модели |
Каптоприл |
IIVVQGKG AIGF |
VIPPGVPYW TYNT |
Ситаглиптин |
IIVVQGKG AIGF |
VIPPGVPYW TYNT |
|
|
s СО \ 5 « |
1 |
–5,601 |
–9,605 |
–10,945 |
–8,020 |
–7,119 |
–8,956 |
|
2 |
–5,595 |
–9,570 |
–10,699 |
–8,020 |
–7,042 |
–8,851 |
|
|
3 |
–5,496 |
–9,320 |
–10,607 |
–8,007 |
–7,016 |
–8,795 |
|
|
4 |
–5,451 |
–8,862 |
–10,466 |
–7,933 |
–6,938 |
–8,524 |
|
|
5 |
–5,409 |
–8,850 |
–10,364 |
–7,871 |
–6,883 |
–8,466 |
|
|
6 |
–5,344 |
–8,824 |
–10,329 |
–7,856 |
–6,801 |
–8,448 |
|
|
7 |
–5,187 |
–8,812 |
–10,229 |
–7,825 |
–6,796 |
–8,390 |
|
|
8 |
–5,110 |
–8,725 |
–10,076 |
–7,622 |
–6,760 |
–8,334 |
|
|
9 |
–4,997 |
–8,660 |
–10,042 |
–7,552 |
–6,734 |
–8,271 |
|
|
Среднее |
–5,399 |
–9,071 |
–10,464 |
–7,856 |
–6,899 |
–8,559 |
|
|
Отклонение |
0,214 |
0,369 |
0,296 |
0,170 |
0,137 |
0,246 |
|
|
t -критерий |
– |
1,86·10–12 |
1,46·10–16 |
– |
9,36·10–10 |
5,18·10–6 |
|
Анализ энергии связывания по 9 независимым моделям показал, что для АПФ оба пептида продемонстрировали большую аффинность, чем референсный препарат каптоприл, причем различия были существенно значимые в сравнении с эталоном согласно t -тесту Стьюдента с двумя независимыми выборками. Пептид IIVVQGKGAIGF продемонстрировал меньшую аффинность, чем ситаглиптин, причем различие в сравнении с эталоном являлось существенно значимым. В то же время пептид VIPPGVPYWTYNT показал большую аффинность, чем ситаглиптин. Стандартное отклонение в контексте анализа демонстрирует, насколько результаты схожи друг с другом: чем меньше значение, тем сильнее независимые анализы совпадают по энергии связывания. Наименьшее отклонение наблюдалось у пептида IIVVQGKGAIGF с ДПП-4, что, вероятно, обусловлено размером этой молекулы относительно активного центра.
Анализ межмолекулярных взаимодействий с АПФ
Подробная характеристика взаимодействия пептидов и референсного препарата каптоприла с каталитическим центром рецептора АПФ представлена в табл. 2.
Таблица 2. Характеристики связывания лигандов с АПФ Table 2. Binding characteristics of ligands with ACE
|
Лиганд |
Всего связей |
Связи с активным центром и вблизи него |
Диапазон расстояний (Å) |
|
Каптоприл |
10 |
TYR523 (1 водородная связь, 1 гидрофобное взаимодействие) HIS353 (1 водородная связь) HIS513 (1 водородная связь) PHE457 (1 гидрофобное взаимодействие) ALA354 (1 гидрофобное взаимодействие) VAL380 (1 гидрофобное взаимодействие) HIS383 (1 гидрофобное взаимодействие) PHE527 (1 гидрофобное взаимодействие) |
2,81–4,66 |
|
IIVVQGKGAIGF |
30 |
GLU123 (5 водородных связей) TYR360 (2 водородные связи, 3 гидрофобных взаимодействия) ARG124 (2 водородные связи) TYR62 (1 водородная связь, 1 гидрофобное взаимодействие) TRP220 (1 водородная связь) TYR394 (1 водородная связь) THR92 (1 водородная связь) ASP121 (1 водородная связь) TRP357 (1 гидрофобное взаимодействие) ALA63 (1 гидрофобное взаимодействие) MET223 (1 гидрофобное взаимодействие) ARG402 (1 гидрофобное взаимодействие) ILE88 (1 гидрофобное взаимодействие) HIS387 (1 гидрофобное взаимодействие) PHE570 (1 гидрофобное взаимодействие) ILE204 (1 гидрофобное взаимодействие) ALA207 (1 гидрофобное взаимодействие) ALA208 (1 гидрофобное взаимодействие) |
2,41–5,37 |
|
VIPPGVPYWTYNT |
32 |
ASP358 (1 водородная связь) TYR523 (1 водородная связь) HIS410 (1 водородная связь) HIS387 (1 водородная связь) TYR360 (1 водородная связь) SER355 (1 водородная связь) SER516 (1 водородная связь) GLU123 (1 электростатическое взаимодействие) TRP357 (1 гидрофобное взаимодействие) TYR62 (1 водородная связь, 1 гидрофобное взаимодействие) ASN66 (2 водородные связи) ASN70 (1 водородная связь) LYS118 (1 водородная связь) ARG124 (1 водородная связь, 2 гидрофобных взаимодействия) TYR394 (1 водородная связь) ARG522 (1 водородная связь) TRP59 (1 водородная связь) TRP220 (2 гидрофобных взаимодействия) VAL518 (1 гидрофобное взаимодействие) MET223 (1 гидрофобное взаимодействие) ILE88 (1 гидрофобное взаимодействие) ALA63 (1 гидрофобное взаимодействие) LEU139 (2 гидрофобных взаимодействия) LEU140 (2 гидрофобных взаимодействия) |
2,77–5,29 |
Взаимодействие каптоприла с АПФ
При докинге каптоприла с рецептором АПФ были обнаружены 3 классические водородные связи, 6 гидрофобных взаимодействий, а также одно дополнительное взаимодействие типа π-сульфидный контакт. Большинство выявленных контактов приходились на аминокислотные остатки активного центра, что свидетельствует о высокой селективности связывания.
В образовании водородных связей участвовали атомы остатков TYR523, HIS353 и HIS513 с расстояниями в диапазоне 2,81–2,97 Å. Гидрофобные взаимодействия были зафиксированы с остатками ALA354, VAL380, HIS383, PHE457, TYR523 и PHE527 в диапазоне расстояний 4,16–5,06 Å. Дополнительно отмечено взаимодействие между атомом серы лиганда и остатком PHE457 на расстоянии 4,23 Å.
Наибольшее число связей образовано с остатками PHE457 и TYR523 (по 2 контакта каждый). Особое значение имеет контакт с HIS383, так как данный остаток непосредственно координирует каталитический ион цинка, что указывает на влияние лиганда на металлозависимый каталитический механизм фермента. Визуализация взаимодействия представлена на рис. 2.
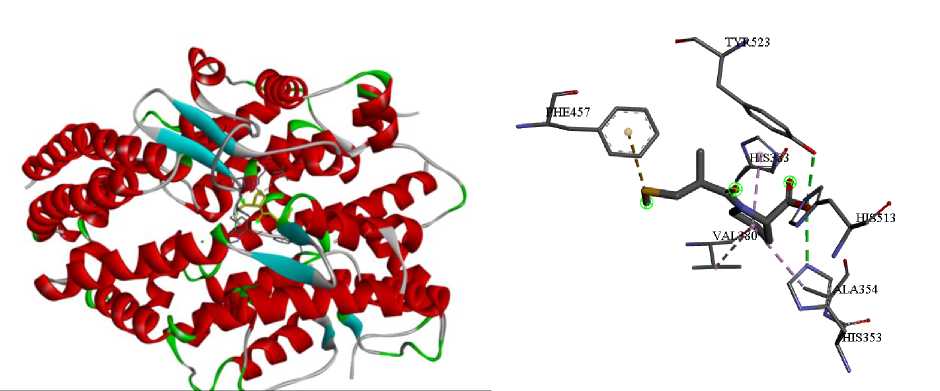
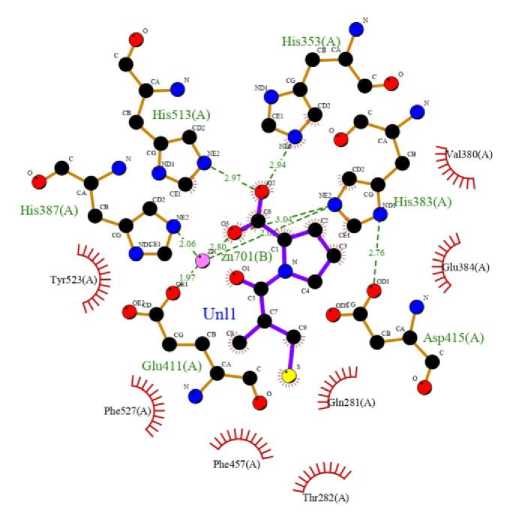
Рис. 2. Молекулярное взаимодействие АПФ и каптоприла
Fig. 2. Molecular interaction of ACE with captopril
Взаимодействие IIVVQGKGAIGF с АПФ
При связывании лиганда IIVVQGKGAIGF с АПФ выявлено 30 межмолекулярных взаимодействий: 14 водородных связей и 16 гидрофобных контактов.
Водородные связи с остатками активного центра и около него образованы с участием атомов GLU123 (5 контактов на расстояниях 1,84–2,88 Å), TYR360 (2 контакта, 2,29–2,98 Å), ARG124 (2 контакта, 3,04 Å), ASP121 (2,42 Å), THR92 (2,95 Å), TRP220 (3,16 Å), TYR394 (2,62 Å) и TYR62 (3,05 Å). При этом контакт ALA9–GLU123 (1,84 Å) является наиболее коротким и потенциально наиболее прочным водородным взаимодействием. Гидрофобные контакты обнаружены с остатками TRP59 (2 контакта, 4,21–4,40 Å), TYR360 (3 контакта, 4,67–5,24 Å), TYR62 (5,20 Å), TRP357 (5,04 Å), ALA63 (4,29 Å), MET223 (4,78 Å), ARG402 (5,30 Å), ILE88 (3,88 Å), PHE570 (5,09 Å), ILE204 (4,76 Å), ALA207 (4,61 Å) и ALA208 (5,14 Å). Гидрофобный контакт с HIS387 (5,17 Å) заслуживает особого внимания, так как этот остаток входит в цинксвязывающий мотив АПФ.
Наибольшее число взаимодействий в пределах активного центра отмечено с остатками GLU123 (5 связей) и TYR360 (5 связей), а также с ARG124 (2 связи). Особое значение имеет контакт с остатком GLU123, который расположен в непосредственной близости от каталитического центра фермента. Визуализация представлена на рис. 3.
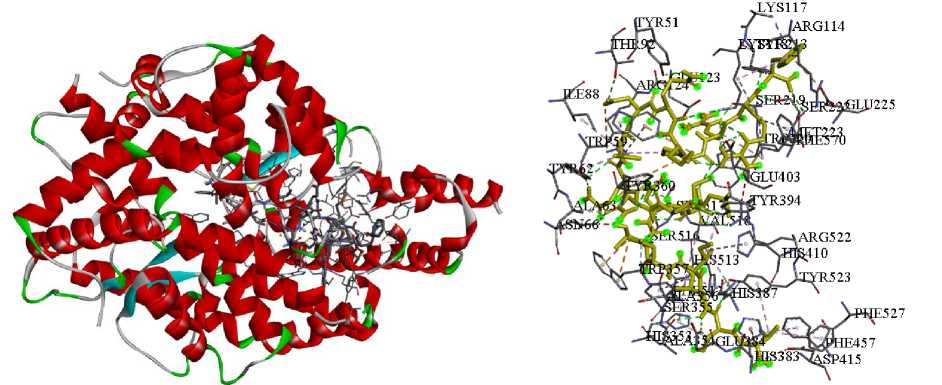
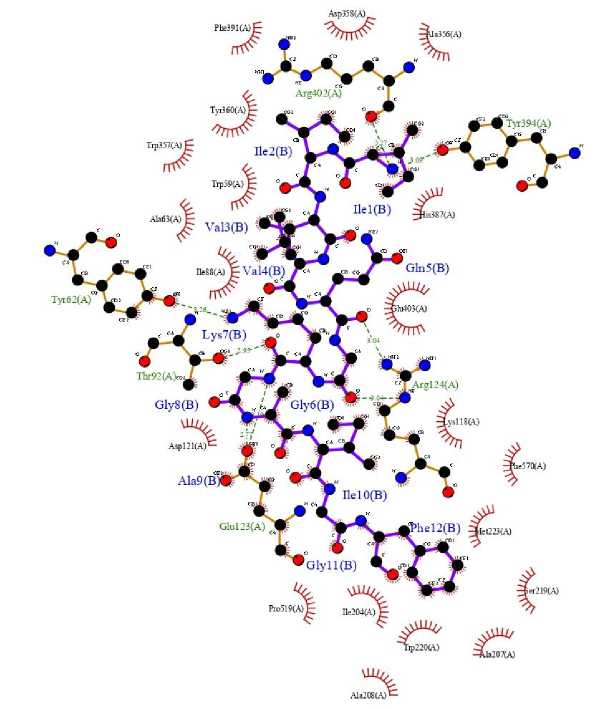
Рис. 3. Молекулярное взаимодействие АПФ и пептида IIVVQGKGAIGF
Fig. 3. Molecular interaction of ACE with peptide IIVVQGKGAIGF
Взаимодействие VIPPGVPYWTYNT с АПФ
Для лиганда VIPPGVPYWTYNT при докинге с АПФ обнаружено 32 межмолекулярных взаимодействия: 16 водородных связей, 15 гидрофобных контактов и 1 электростатическое взаимодействие.
Атомы остатков ASP358, TYR523, HIS410, HIS387, TYR360, SER355, SER516, TYR62, ASN66, ASN70, LYS118, ARG124, TYR394, ARG522 и TRP59 образовали водородные связи с лигандом в диапазоне расстояний
2,00–3,89 Å. При этом контакт TYR11–ASP358 (2,00 Å) является наиболее коротким и потенциально наиболее прочным водородным взаимодействием. Гидрофобные взаимодействия зафиксированы с остатками TYR62 (4,69 Å), TRP357 (5,09 Å), ARG124 (2 контакта, 4,91–5,10 Å), VAL518 (4,50 Å), MET223 (5,49 Å), ILE88 (4,15 Å), TRP220 (2 контакта, 4,67–5,17 Å), ALA63 (5,29 Å), LEU139 (2 контакта, 4,72–5,10 Å) и LEU140 (2 контакта, 5,21–5,37 Å). Электростатический контакт обнаружен с остатком GLU123 (4,03 Å).
Наибольшее число контактов отмечено с остатками ARG124 (3 связи), LEU139 (2 связи), LEU140 (2 связи) и TRP220 (2 связи). При этом большое количество взаимодействий лиганда приходится на периферические остатки рецептора (TYR62, ASN66, ASN70, LYS118, TYR394, ARG522, MET223, ILE88, ALA63, LEU139, LEU140, TRP220), что указывает на фрагментарное покрытие каталитического центра и, возможно, недостаточную стабильность комплекса для эффективного ингибирования. Тем не менее с остатками активного центра TYR523, HIS410 и HIS387 были обнаружены водородные связи, что потенциально указывает на высокую вероятность ингибирования активности АПФ. Визуализация представлена на рис. 4.
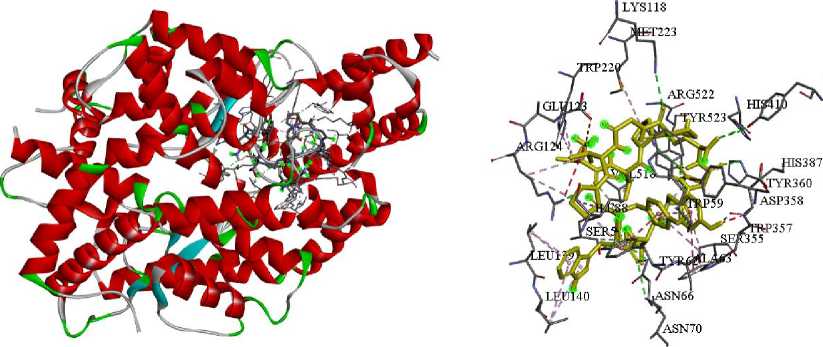
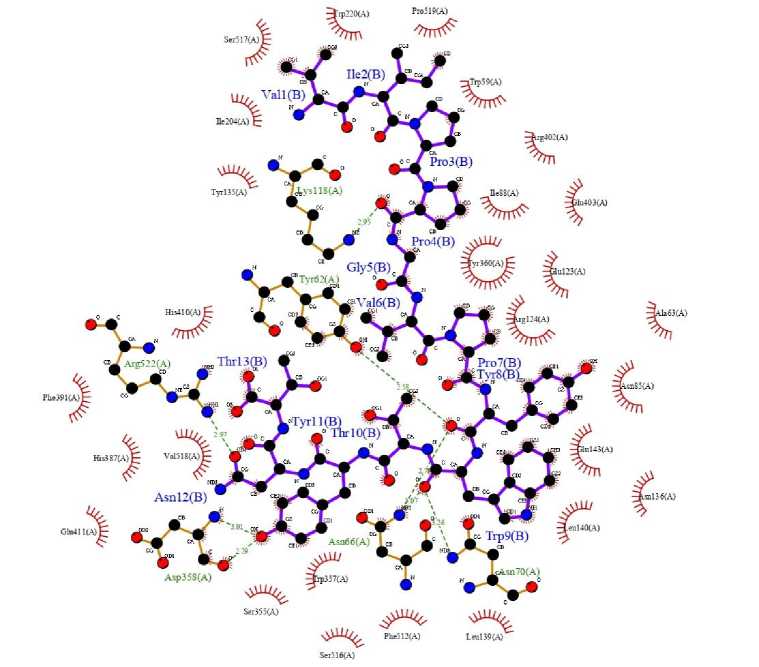
Рис. 4. Молекулярное взаимодействие АПФ и пептида VIPPGVPYWTYNT
Fig. 4. Molecular interaction of ACE with peptide VIPPGVPYWTYNT
Анализ межмолекулярных связей с ДПП-4
В ходе работы были изучены и проанализированы межмолекулярные взаимодействия между исследуемыми пептидами и ситаглиптином с молекулой ДПП-4. В табл. 3 представлена общая характеристика связей и, в частности, связи с активным центром белка-рецептора.
Таблица 3. Характеристики связывания лигандов с ДПП-4 Table 3. Binding characteristics of ligands with DPP-4
|
Лиганд |
Всего связей |
Связи с ДПП-4 |
Диапазон расстояний (Å) |
|
Ситаглиптин |
20 |
GLU205 (1 электростатическое взаимодействие) ARG125 (1 водородная связь, 1 галогенная связь) TRP629 (1 водородная связь, 5 гидрофобных взаимодействий) HIS740 (1 водородная связь, 1 галогенная связь) GLY741 (1 водородная связь) SER630 (2 водородные связи) TYR547 (2 водородные связи) ASN710 (1 галогенная связь) TYR662 (1 водородная связь, 1 гидрофобное взаимодействие) TYR666 (1 гидрофобное взаимодействие) |
2,74–5,35 |
|
IIVVQGKGAIGF |
29 |
GLU738 (1 комбинированное взаимодействие) ASP243 (1 электростатическое взаимодействие) SER744 (1 водородная связь) TYR238 (1 водородная связь) ALA707 (1 водородная связь) ASP709 (1 водородная связь) SER242 (2 водородные связи) GLN123 (2 водородные связи) TRP124 (1 водородная связь, 2 гидрофобных взаимодействия) TYR195 (1 водородная связь, 1 гидрофобное взаимодействие) ASP192 (1 водородная связь) ASN170 (1 водородная связь) TYR211 (1 водородная связь) LYS122 (1 водородная связь) GLN153 (1 водородная связь) VAL121 (1 гидрофобное взаимодействие) LYS250 (1 гидрофобное взаимодействие) ALA743 (1 гидрофобное взаимодействие) VAL252 (1 гидрофобное взаимодействие) VAL254 (1 гидрофобное взаимодействие) PHE240 (1 гидрофобное взаимодействие) |
2,18–5,98 |
|
VIPPGVPYWTYNT |
20 |
ASP739 (2 водородные связи, 1 электростатическое взаимодействие) GLN123 (2 водородные связи) TYR211 (2 водородные связи) GLY741 (1 водородная связь) ALA743 (1 водородная связь) ASN170 (1 водородная связь) ASP243 (2 электростатических взаимодействия) PHE240 (2 гидрофобных взаимодействия) VAL121 (1 гидрофобное взаимодействие) LYS250 (1 гидрофобное взаимодействие) VAL252 (1 гидрофобное взаимодействие) TRP124 (1 гидрофобное взаимодействие) TYR195 (1 гидрофобное взаимодействие) ALA707 (1 гидрофобное взаимодействие) |
1,76–5,41 |
Взаимодействие ситаглиптина с ДПП-4
При докинге ситаглиптина с рецептором ДПП-4 было обнаружено 20 межмолекулярных взаимодействий: 9 водородных связей, 7 гидрофобных контактов, 3 галогенных контакта (с участием атомов фтора), а также одно электростатическое взаимодействие. Многие выявленные контакты приходятся на аминокислотные остатки активного центра, что подтверждает высокую селективность связывания данного лиганда.
В образовании водородных связей участвовали атомы остатков TRP629, HIS740, GLY741, SER630 и TYR547 в диапазоне расстояний 3,30–4,18 Å, при этом наиболее прочные контакты (< 3,50 Å) зафиксированы с TRP629 (3,30 Å), TYR662 (3,31 Å) и SER630 (3,34 Å). Галогенные взаимодействия обнаружены с атомами ASN710 (2,88 Å), HIS740 (3,51 Å) и ARG125 (3,42 Å). Гидрофобные контакты образованы с остатками TRP629, TYR662 и TYR666 в диапазоне расстояний 3,91–5,23 Å.
Наибольшее количество связей образовано с остатком TRP629 (5 контактов), входящим в карман S1. Особое значение имеют контакты с каталитической триадой: HIS740 и SER630. Взаимодействие с ARG125 также вносит вклад в стабилизацию лиганда в кармане S2. Визуализация представлена на рис. 5.
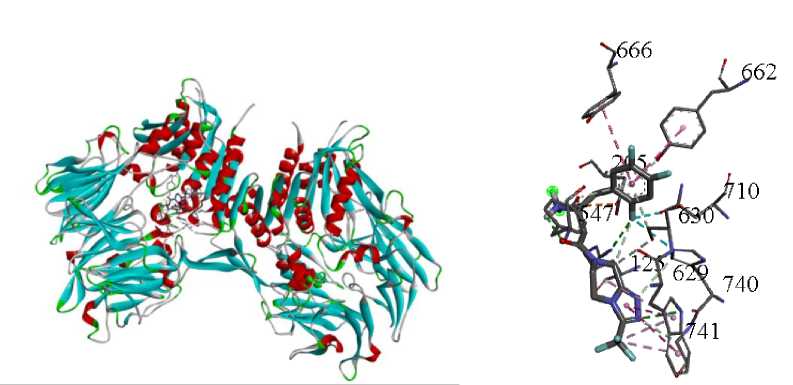
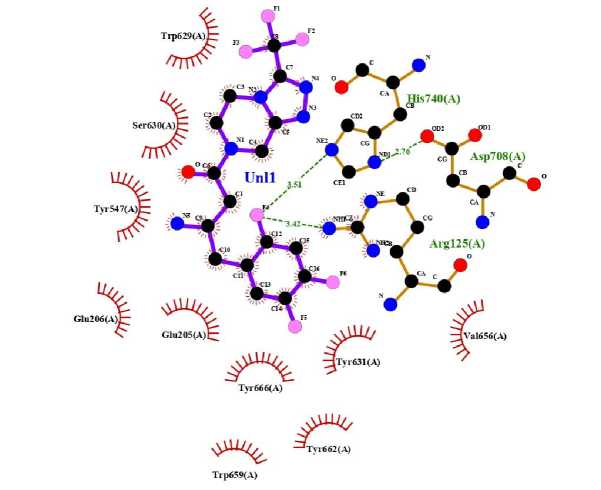
Рис. 5. Моделирование взаимодействия ДПП-4 и ситаглиптина Fig. 5. Modeling of DPP-4 interaction with sitagliptin
Взаимодействие IIVVQGKGAIGF с ДПП-4
При связывании лиганда IIVVQGKGAIGF с ДПП-4 выявлено 29 межмолекулярных взаимодействий: 15 водородных связей, 11 гидрофобных контактов, 2 электростатических взаимодействия и 1 комбинированный контакт (водородная связь + электростатическое взаимодействие).
Водородные связи образованы с участием атомов остатков GLU738 (2,33 Å), SER744 (2,93 Å), TYR238 (2,47 Å), ALA707 (2,64 Å), ASP709 (2,18 Å), SER242 (2 контакта, 2,37–2,61 Å), GLN123 (2 контакта,
3,03–3,92 Å), TRP124 (3,66 Å), TYR195 (3,83 Å), ASP192 (2,92 Å), ASN170 (3,13 Å), TYR211 (2,89 Å), LYS122 (3,03 Å) и GLN153 (3,17 Å). При этом контакт GLN5–ASP709 (2,18 Å) является наиболее коротким водородным взаимодействием. Электростатические взаимодействия зафиксированы с остатками ASP243 (5,07 Å) и ASP725 (4,81 Å). Гидрофобные контакты обнаружены с остатками TRP124 (2 контакта, 4,78–5,98 Å), TYR195 (4,86 Å), VAL121 (5,42 Å), LYS250 (5,38 Å), ALA743 (4,85 Å), VAL252 (5,04 Å), VAL254 (4,76 Å) и PHE240 (5,23 Å).
Наибольшее число взаимодействий отмечено с остатками TRP124 (3 связи), GLN123 (2 связи), SER242 (2 связи) и TYR195 (2 связи). Селективность к активному центру у IIVVQGKGAIGF была ниже, чем у ситаглиптина, однако многие контакты были в непосредственной близости к активному центру, хотя и не напрямую с описанными в литературе аминокислотами из активного центра ДПП-4. Визуализация представлена на рис. 6.
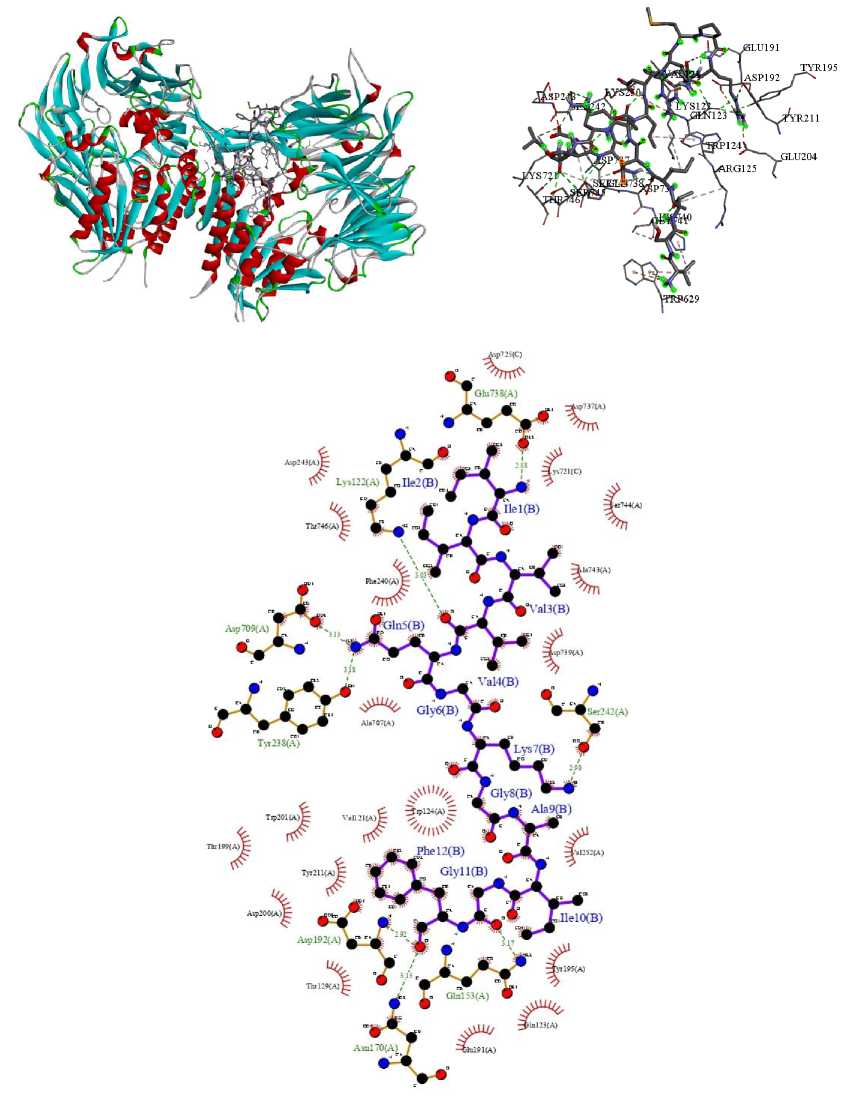
Рис. 6. Молекулярное взаимодействие ДПП-4 и пептида IIVVQGKGAIGF
Fig. 6. Molecular interaction of DPP-4 with peptide IIVVQGKGAIGF
Взаимодействие VIPPGVPYWTYNT с ДПП-4
Для лиганда VIPPGVPYWTYNT при докинге с ДПП-4 обнаружено 20 межмолекулярных взаимодействий: 9 водородных связей, 8 гидрофобных контактов и 3 электростатических взаимодействия.
Водородные связи образованы с участием атомов остатков ASP739 (2 контакта, 1,76–2,69 Å), GLN123 (2 контакта, 2,66–3,05 Å), TYR211 (2 контакта, 1,80–2,87 Å), GLY741 (3,34 Å), ALA743 (3,35 Å) и ASN170 (3,72 Å). При этом контакт THR13–ASP739 (1,76 Å) является наиболее коротким и потенциально наиболее прочным водородным взаимодействием среди всех проанализированных лигандов. Электростатические взаимодействия зафиксированы с остатками ASP243 (2 контакта с TRP9, 4,16–4,37 Å) и ASP739 (4,09 Å). Гидрофобные контакты обнаружены с остатками PHE240 (2 контакта, 4,46–5,10 Å), VAL121 (5,23 Å), LYS250 (4,15 Å), VAL252 (4,81 Å), TRP124 (5,30 Å), TYR195 (5,13 Å) и ALA707 (4,69 Å).
Наибольшее число контактов отмечено с остатком ASP739 (3 взаимодействия), который расположен в непосредственной близости от каталитического гистидина HIS740. VIPPGVPYWTYNT так же, как и IIVVQGKGAIGF, был менее селективен к активному центру, чем ситаглиптин. Визуализация представлена на рис. 7.
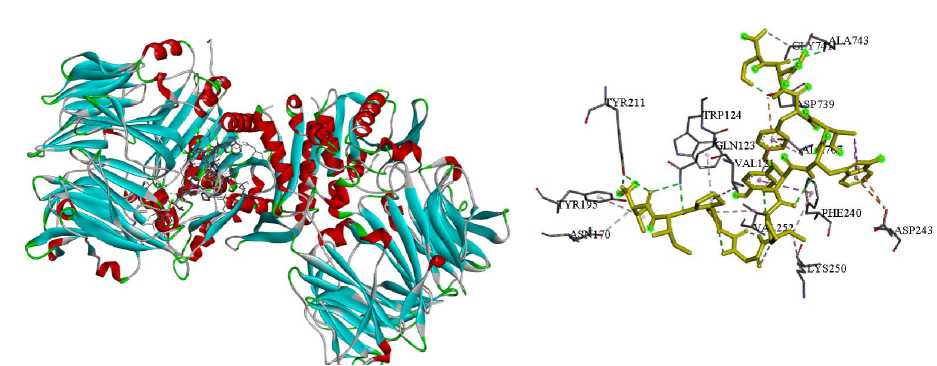
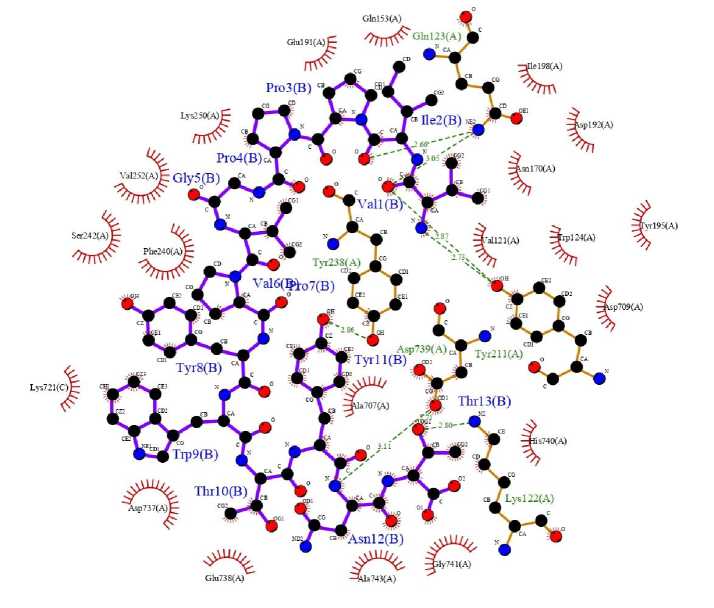
Рис. 7. Молекулярное взаимодействие ДПП-4 и пептида VIPPGVPYWTYNT
Fig. 7. Molecular interaction of DPP-4 with peptide VIPPGVPYWTYNT
Выводы
В ходе исследования с помощью методов молекулярного моделирования была оценена способность двух биологически активных пептидов соевого происхождения IIVVQGKGAIGF и VIPPGVPYWTYNT ингибировать АПФ и ДПП-4. Оба пептида продемонстрировали высокую аффинность к исследуемым рецепторам. В отношении АПФ пептиды IIVVQGKGAIGF (–9,07±0,37 ккал/моль) и VIPPGVPYWTYNT (–10,46±0,30 ккал/моль) показали статистически значимо более сильное связывание по сравнению с референсным ингибитором каптоприлом (–5,40±0,21 ккал/моль; p < 0,001). В случае ДПП-4 пептид VIPPGVPYWTYNT (–8,56±0,25 ккал/моль) превзошел по аффинности ситаглиптин (–7,86±0,17 ккал/моль; p < 0,001), тогда как IIVVQGKGAIGF (–6,90±0,14 ккал/моль) уступал этому веществу.
Анализ химических связей показал, что референсные препараты (каптоприл, ситаглиптин) демонстрировали высокую селективность, а большинство предсказанных контактов приходилось на остатки активного центра. Пептиды формировали большее общее число взаимодействий, однако лишь часть из них локализовались в каталитической зоне. Это указывает на то, что пептиды, обладая высокой общей аффинностью, вероятно, ингибируют активный центр хуже, чем эталонные препараты. Оба пептида формировали связи с различными остатками активных участков АПФ: TYR523, HIS410 и HIS387. Для взаимодействий с ДПП-4 не было обнаружено прямых контактов с описанными в литературе каталитическими участками, но были обнаружены контакты с рядом аминокислот в непосредственной близости к ним. Таким образом, оба пептида являются перспективными ингибиторами АПФ и ДПП-4. Это подтверждает перспективность их дальнейшего изучения в качестве функциональных ингредиентов в пищевых продуктах, а также их компонентов (в составе гидролизатов).
Следует отметить, что количество выявленных межмолекулярных взаимодействий, визуализированных с помощью LigPlot+, может отличаться от данных, полученных в Discovery Studio Visualizer. Это связано с тем, что LigPlot+ использует более строгие геометрические критерии детекции связей. В данной работе количественный анализ и классификация межмолекулярных связей проводились на основе данных Discovery Studio Visualizer, обеспечивающих более полную характеристику взаимодействий, а LigPlot+ использовался для общей визуализации.
Несмотря на благоприятные результаты, in silico интерпретация требует учета допущений метода: использование статичных кристаллических структур, упрощенное моделирование пептидов, отсутствие учета растворителя и динамики белка, конкуренции с точки зрения прочих субстратов. Полученные данные указывают на высокий потенциал пептидов, особенно VIPPGVPYWTYNT, в качестве перспективного натурального ингибитора АПФ и ДПП-4. Однако для подтверждения ингибирующей активности и оценки селективности необходим синтез пептидов и дальнейшие исследования in vitro и in vivo .
