
Излучение генетических маркеров факторов регуляции воспаления при микротоксикозе птиц на фоне применения средств профилактики
Журнал: Вестник Красноярского государственного аграрного университета @vestnik-kgau
Рубрика: Зоотехния и ветеринария
Статья в выпуске: 7, 2026 года.
Бесплатный доступ
Цель исследований – определение влияния разработанных профилактических комплексов на течение подострого сочетанного микотоксикоза (Т-2, афлаи зеараленонтоксикоза) у кур-несушек, оцениваемое по экспрессии провоспалительных цитокинов. Объекты исследований – метаболиты микроскопических грибов Fusarium (Т-2 токсин и зеараленон) и Aspergillus (афлатоксин В1). Для оценки эффективности при подостром микотоксикозе трех профилактических комплексов (комплексные кормовые добавки на основе энтеросорбентов, прои пребиотиков, антиоксидантов, гепатопротекторов) сформировали восемь групп кур-несушек (n = 10). Экспрессию мРНК провоспалительных цитокинов (IL1β, IL6, IFNɣ) определяли методом количественной ПЦР в реальном времени. Экспрессия генов оценивалась по количеству копий кДНК в исследуемом материале с учетом нормирования показателя относительно количества копий ДНК в той же пробе. При одновременном поступлении Т-2 токсина (2,5 мг/кг), зеараленона (1,7 мг/кг) и афлатоксина В1 (3,3 мг/кг) в селезенке, тимусе и печени кур-несушек наблюдается усиление экспрессии мРНК провоспалительных цитокинов (IL1β, IL6 и IFNγ). В тощей кишке экспрессия IL1β, IL6 и IFNγ была ниже, чем в контроле, на 64,0 % (p < 0,001), 39,2 (p < 0,001) и 61,7 % (p < 0,001). В группах, получавших профилактические комплексы с основным рационом, не контаминированным микотоксинами, изменений профиля экспрессии не отмечено. Исследованные профилактические комплексы при добавлении в рацион в дозе 0,25 % от рациона не приводили к изменению профиля синтеза провоспалительных цитокинов, и в то же время модулировали повышенную и сниженную индукцию про-воспалительных цитокинов. Однако значимый эффект (отсутствие статистически значимых отличий от группы биологического контроля) в условиях сочетанного микотоксикоза был отмечен только при использовании третьего профилактического комплекса.
Короткий адрес: https://sciup.org/140316554
IDS: 140316554 | УДК: 619:615.9:616-079:577.2 | DOI: 10.36718/1819-4036-2026-7-195-206
Study of genetic markers of inflammation regulation factors in mycotoxicosis of birds against prevention background
The aim of the study is to determine the effect of the developed prophylactic complexes on the course of subacute combined mycotoxicosis (T-2, afla- and zearalenone toxicosis) in laying hens, assessed by the ex-pression of proinflammatory cytokines. The objects of the study were metabolites of the microscopic fungi Fusarium (T-2 toxin and zearalenone) and Aspergillus (aflatoxin B1). To evaluate the effectiveness of three prophylactic complexes (complex feed additives based on enterosorbents, pro- and prebiotics, antioxidants, and hepatoprotectors) in subacute mycotoxicosis, eight groups of laying hens (n = 10) were formed. The ex-pression of mRNA of proinflammatory cytokines (IL1β, IL6, IFNɣ) was determined by quantitative real-time PCR. Gene expression was assessed by the number of cDNA copies in the studied material, taking into ac-count the normalization of the indicator relative to the number of DNA copies in the same sample. Upon sim-ultaneous administration of T-2 toxin (2.5 mg/kg), zearalenone (1.7 mg/kg) and aflatoxin B1 (3.3 mg/kg), an increase in the expression of mRNA of proinflammatory cytokines (IL1β, IL6 and IFNγ) was observed in the spleen, thymus and liver of laying hens. In the jejunum, the expression of IL1β, IL6 and IFNγ was lower than in the control by 64.0 % (p < 0.001), 39.2 (p < 0.001) and 61.7 % (p < 0.001). In the groups receiving prophy-lactic complexes with the basal diet not contaminated with mycotoxins, no changes in the expression profile were observed. The studied prophylactic complexes, when added to the diet at a dose of 0.25 % of the diet, did not lead to a change in the profile of the synthesis of proinflammatory cytokines, and at the same time modulated the increased and decreased induction of proinflammatory cytokines. However, a significant effect (no statistically significant differences from the biological control group) under conditions of combined mycotoxicosis was observed only with the use of the third preventive complex.
Текст научной статьи Излучение генетических маркеров факторов регуляции воспаления при микротоксикозе птиц на фоне применения средств профилактики
Funding: the study was supported by a grant from the Academy of Sciences of the Republic of Tatarstan to higher education institutions, research and other organizations to support human resource development plans in terms of encouraging their research and teaching staff to defend doctoral dissertations and conduct research (Agreement № 4/2025-PD-VNIVI dated December 22, 2025).
Введение. На современном этапе развития сельского хозяйства микотоксины являются одной из основных групп биогенных токсинов, контаминирующих сырье и продукцию [1–3]. Известно, что для микотоксинов характерен широкий спектр действия на разные органы и системы органов (гепато-, нефро-, иммуно-, гено-, и цитотоксичность, репродуктивную токсичность; мутагенные, тератогенные, канцероген- ные эффекты). Наиболее важными для исследования (в силу распространенности и токсичности) микотоксинами являются афлатоксин В1, зеараленон и Т-2 токсин [4–7], а также их сочетанное воздействие.
В изучении микотоксинов с учетом их поливалентного воздействия на организм остается актуальной характеристика их механизмов действия, в т. ч. влияние на экспрессию мРНК про- воспалительных цитокинов. При этом супериндукция цитокинов может являться одним из ключевых механизмов опосредования токсичности и иммунологических эффектов микотоксинов [7, 8]. В то же время существует тесная связь между воспалением и окислительным стрессом, причем пути воздействия медиаторов воспаления индуцируются окислительным стрессом [9]. Хроническое воздействие микотоксинов может участвовать в патогенезе воспалительных заболеваний кишечника, изменяя окислительно-восстановительный гомеостаз кишечника; известно также, что микотоксины могут играть значительную роль в обострении кишечных симптомов при воспалительных заболеваниях кишечника и способны усиливать воспаление и иммуноопосредованное повреждение эпителия, модулируя многочисленные пути развития заболевания [7].
Имеются данные, что в птицеводческой отрасли микотоксикозы приводят к значительным экономическим потерям, а пищевые добавки, снижающие степень негативного влияния микотоксинов на организм животных, могут способствовать повышению экономической эффективности птицеводческих хозяйств [10]. В условиях современного промышленного животноводства и птицеводства проблема микотоксикозов становится еще более актуальной, так как микотоксины (контаминировавшие корма в явной и скрытой форме), с одной стороны, могут приводить к хроническому отравлению, зачастую недиагностируемому в силу отсутствия четких клинических признаков, а с другой – приводить к более выраженным токсическим эффектам в сочетании с различными токсикантами (в т. ч. экотоксикантами – например такими, как акриламид и кадмий). Также имеются указания, что у различных видов животных некоторые микотоксины могут оказывать и опосредованное негативное влияние на пищеварительную систему, как снижая общее видовое разнообразие симбиотических бактерий, участвующих в процессе пищеварения, и относительное количество полезных кишечных симбионтов, так и провоцируя рост численности патогенных бактерий [7]. В свете этих данных важной задачей прикладной ветеринарной науки является дальнейшее изучение механизмов действия микотоксинов, а также изыскание средств, противодействующих их негативным эффектам на организм животных, важных для функционирования агропромышленного комплекса.
Цель исследования – определение влияния разработанных профилактических комплексов на течение подострого сочетанного микотоксикоза (Т-2, афла- и зеараленонтоксикоза) у кур-несушек, оцениваемое по экспрессии про-воспалительных цитокинов.
Задачи: воспроизведение сочетанного микотоксикоза у кур-несушек (Т-2, афла- и зеарале-нонтоксикоз); разработка нуклеотидной последовательности праймеров и зондов для ПЦР; оценка экспрессии мРНК провоспалительных цитокинов кур в селезенке, тимусе, тощей кишке и печени методом ПЦР в реальном времени.
Объекты и методы. Опыт был проведен на 80 курах-несушках кросса Ломан. Были сформированы 8 групп, по 10 птиц в каждой (распределение по группам по принципу аналогов). Условия опыта для каждой из групп опыта приведены в таблице (табл. 1). Группы содержались с соблюдением зоотехнических требований, изолированно друг от друга. Кормление осуществлялось полноценным рационом; также был организован свободный доступ к питьевой воде.
Таблица 1
|
Номер группы |
Название группы |
Рацион |
|
1 |
2 |
3 |
|
1 |
Биологический контроль (БК) |
Основной рацион |
|
2 |
Токсический контроль (ТК) |
Корм, контаминированный смесью микотоксинов* |
|
3 |
Третья группа, токсический рацион (ТР) + профилактический комплекс (ПК)1 |
Основной рацион, контаминированный смесью микотоксинов*, с добавлением профилактического комплекса № 1 (β-глюканы, силимарин, витамин Е, витамин С и левамизол)** (исследование эффекта профилактического комплекса) |
Окончание табл. 1
|
1 |
2 |
3 |
|
4 |
Четвертая группа, ТР + ПК2 |
Основной рацион, контаминированный смесью микотоксинов*, с добавлением профилактического комплекса № 2 (бентонит, янтарная кислота, метилурацил, витамин А, бифидобактерии и лактобактерии)** (исследование эффекта профилактического комплекса) |
|
5 |
Пятая группа, ТР + ПК3 |
Основной рацион, контаминированный смесью микотоксинов*, с добавлением профилактического комплекса № 3 (галлуазит, метионин, β-глюканы, силимарин)** (исследование эффекта профилактического комплекса) |
|
6 |
Шестая группа, ОР + ПК1 |
Основной рацион (без микотоксинов) с добавлением профилактического комплекса № 1** (контроль безвредности профилактического комплекса) |
|
7 |
Седьмая группа, ОР + ПК2 |
Основной рацион (без микотоксинов) с добавлением профилактического комплекса № 2** (контроль безвредности профилактического комплекса) |
|
8 |
Восьмая группа, ОР + ПК3 |
Основной рацион (без микотоксинов) с добавлением профилактического комплекса № 3** (контроль безвредности профилактического комплекса) |
* – контаминация корма во всех случаях проводилась по схеме: афлатоксин В 1 – 3,3 мг/кг корма, Т-2 токсин – 2,5 мг/кг и зеараленон – 1,7 мг/кг.
** – профилактический комплекс был добавлен в дозе 0,25 % от рациона.
Дизайн эксперимента
Experiment design
Длительность опыта составила 21 сут. В течение эксперимента ежедневно осуществлялось наблюдение за потреблением корма и воды, а также за динамикой клинических признаков. По истечении периода эксперимента животных выводили из опыта в соответствии с этическими принципами, закрепленными в соответствующих документах [11]. После вывода из эксперимента было проведено патолого-анатомическое исследование и изолированное взвешивание внутренних органов. Животные, павшие до окончания опыта, также были исследованы с применением патолого-анатомических методов.
Для генетической оценки экспрессии провос-палительных цитокинов у кур нами ранее был осуществлен дизайн праймеров и зондов для ПЦР, учитывая возможность амплификации экзонов интересующих нас генов кур, а именно: интерферон гамма (GenBank ID NM_205149.2); интерлейкин 1 бета (GenBank IDNM_204524.2); интерлейкин 6 (GenBank IDNM_204628.2), в рамках консервативных локусов были определены нуклеотидные последовательности и разработана нуклеотидная последовательность праймеров и зондов для ПЦР [12].
Для определения уровня экспрессии мРНК провоспалительных цитокинов исследовали количество РНК провоспалительных цитокинов кур в следующих органах: селезенке, тимусе, тощей кишке и печени. Определение уровня экспрессии мРНК осуществляли методом ПЦР в реальном времени. Пробы исследуемых тканей фиксировали раствором IntactRNA и замораживали при температуре –70 ºC. Перед выделением нуклеиновых кислот ткани исследуемых органов гомогенизировали с применением лизирующей матрицы «А» в гомогенизаторе Fast Prep-24 (M.P. Biomedicals, Индия). Выделение нуклеиновых кислот осуществляли коммерческим набором «РибоПреп» (ФБУН «ЦНИИ Эпидемиологии», Россия). ДНК из препарата выделенных нуклеиновых кислот удаляли путем их инкубирования с дезоксирибонуклеазами (эффективность реакции контролировали в ПЦР-РВ).
Синтез праймеров был выполнен компанией ЗАО «Евроген» (Россия).
Статистический анализ результатов включал в себя методы описательной и вариационной статистики. Для среднегрупповых показателей были вычислены арифметическое среднее (M) и стандартное отклонение (Sd); для оценки межгрупповых различий проводили тест Манна – Уитни (значимыми признавали отличия на уровне p ≤ 0,05). Расчеты проводили в программах MS Excel и Statistica 6.0.
Результаты и их обсуждение. В группе токсического контроля наблюдались прогрессирующие признаки микотоксикоза и снижение показателей яйценоскости и товарных качеств яйца (малый вес, истончение и бугристость скорлупы). Первые явные клинические признаки токсикоза были отмечены на пятые сутки опыта: увеличение потребления воды, вялость, гиподинамия, проблемы с координацией, взъерошенные перья и потеря блеска перьевого покрова. На десятые сутки развилось расстройство пищеварения (диарея), снижение потребления и (у трех особей) полный отказ от корма. На шестнадцатый и восемнадцатый дни исследования был зафиксирован падеж по одной птице. У павших особей наблюдались характерные клинические проявления микотоксикоза, включающие цианоз слизистых оболочек ротовой и синусовой полостей, гиперемию конъюнктивы и значительное загрязнение испражнениями перьевого покрова. К концу эксперимента у шести особей группы токсического контроля наблюдалось покраснение области клоаки, бледность гребня и слизистых оболочек.
В других группах опыта падеж птицы не был отмечен. У отдельных особей в третьей, четвертой и пятой группах отмечалась диарея. При этом общее состояние и внешний вид птицы оценивались как в целом благополучные.
Таблица 2
Весовые показатели внутренних органов кур-несушек различных групп опыта Weight indicators of the internal organs of laying hens in various experimental groups
После вывода из эксперимента было проведено патолого-анатомическое исследование и изолированное взвешивание внутренних органов.
В группе токсического контроля отмечено повышение массы печени на 21,4 % (р < 0,001), почек – на 18,5 % (р < 0,001) и селезенки – на 22,3 % (р < 0,001) и, напротив, уменьшение тимуса на 11,8 % (р < 0,01) (табл. 2).
В группах, получавших профилактические комплексы на фоне добавления в рацион микотоксинов (ТР + ПК1, ТР + ПК2, ТР + ПК3), наблюдали схожие изменения, хотя и выраженные в несколько меньшей степени. Масса печени, почек и селезенки у птиц третьей и четвертой группы была выше, чем у биологического контроля, на 16,9 % (р < 0,01); 12,5 (р < 0,05); 14,5 (р < 0,01) и 18,3 (р < 0,01); 7,3; 10,7 % (р < 0,05).
Масса тимуса у птиц третьей и четвертой группы была ниже (р < 0,05), чем у биологического контроля, на 9,3 и 8,1 %.
В группе, получавшей на фоне микотоксикоза профилактический комплекс № 3 (так же, как в группах, получавших профилактические комплексы с основным рационом), отличия показателей массы от группы биологического контроля статистически не значимы.
Отмеченные изменения не противоречат данным, опубликованным ранее другими исследователями. Так, известно, что печень – орган-мишень для афлатоксина В1: в сравнении с мышечной тканью, в тканях печени метаболиты этого токсина накапливаются в концентрации в 10 раз выше [13]. Гепатотоксическое и нефро- токсическое действие микотоксинов широко известно и показано в том числе на курах; также имеются данные, что токсические эффекты зеараленона в отношении этих органов связаны с механизмами окислительного стресса, а повреждения структур печени и почек (в т. ч. активация апоптоза) носят дозозависимый характер
-
[8] . Здесь происходит биопреобразование токсина в эпоксид и его дальнейшее связывание с ДНК, РНК и белками. В результате происходит накопление пероксидов (в силу инактивации антиоксидантных ферментов), что приводит к окислительному стрессу и увеличению относительного веса печени. К увеличению массы печени (возникновение гепатомегалии) на фоне афла-токсикоза приводит также повышенное накопление липидов в печени [14, 15]. Увеличение относительного веса почек на фоне потребления микотоксинов также отмечалось ранее [16].
При попадании в организм микотоксинов (в частности зеараленона), наблюдаются повреждения иммунокомпетентных органов, нарушения в работе иммунной системы, связанные с повышением степени окисления и развитием воспалительных реакций, что несет риски для здоровья человека и сельскохозяйственных животных [8]. Имеются данные, что изменение относительного веса иммунных органов также является характерным: в ответ на отравление микотоксинами возрастает относительный вес селезенки и происходит набухание спленоцитов, при этом масса тимуса снижается [17, 18].
Известно, что токсические эффекты микотоксинов тесно связаны с окислительным стрессом, который, в свою очередь, сказывается на работе иммунной системы, что сопровождается индукцией повышения уровня экспрессии про-воспалительных цитокинов [8]. В результате ранее проведенных исследований было установлено, что поступление в организм с кормом высоких доз микотоксинов вызывает увеличение экспрессии IL1β, IL6, IFNγ в селезенке, тимусе и печени. В тощей кишке их уровень, напротив, снижается [12].
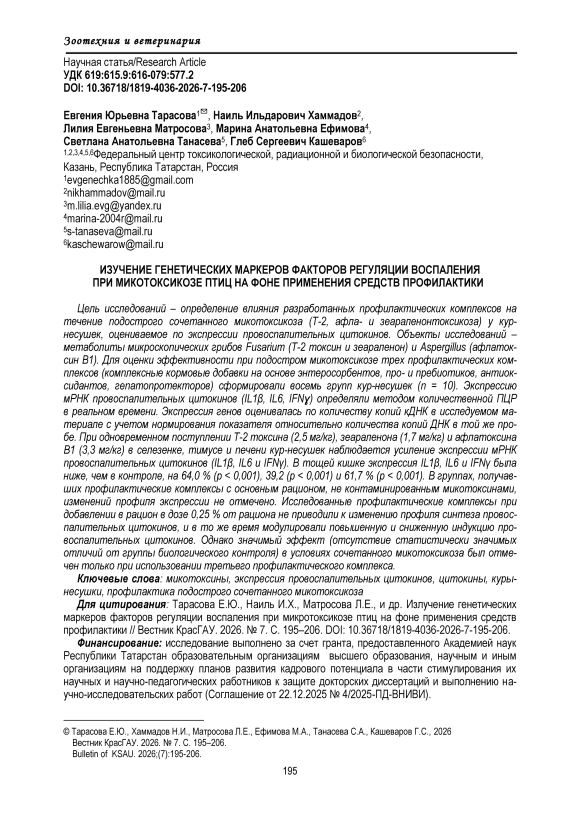
В ходе генетической оценки экспрессии про-воспалительных цитокинов у кур этот эффект был подтвержден нами и в данном опыте: в частности в селезенке кур-несушек группы ТК экспрессия мРНК генов IL1β, IL6 и IFNγ статистически значимо увеличилась (в 2,4 раза, 1,9 и 1,7 раза по сравнению с группой БК) (рис. 1). В то же время в группах ТР + ПК1 и ТР + ПК2 увеличение экспрессии генов IL1β, IL6 и IFNγ происходило на 85,4; 42,0; 29,1 % и 32,3; 29,3; 31,8 % соответственно; это повышение также было статистически значимым. В группе ТР + ПК3 значимое повышение экспрессии провос-палительных цитокинов отмечено только в случае IL1β (на 16,2 %). Экспрессия IL6 и IFNγ у птиц 5 группы увеличивались на 14,7 и 10,9 %. В остальных группах (птицы, получавшие профилактические комплексы в дополнение к основному рациону) уровень экспрессии не отличался от полученного для группы биологического контроля.
* р < 0,05, ** р < 0,01, *** р < 0,001 при сравнении с группой биологического контроля
Рис. 1. Экспрессия мРНК провоспалительных цитокинов в селезенке кур mRNA expression of pro-inflammatory cytokines in the spleen of chickens
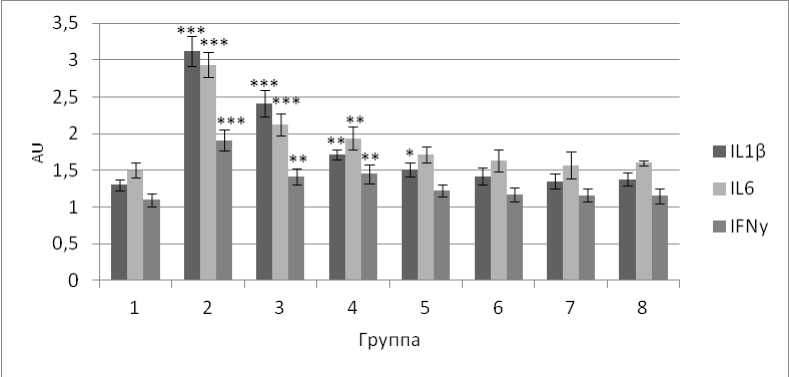
В тимусе кур-несушек группы токсического контроля воздействие микотоксинов также приводило к значительному повышению уровня экспрессии генов провоспалительных цитокинов
(рис. 2), при этом данный эффект был выражен в меньшей степени, чем в селезенке. Повышение экспрессии IL1e, IL6 и IFN y во второй группе составило 55,2; 94,0 и 38,1 % (P < 0,001).
В группах, получавших в дополнение к контаминированному микотоксинами рациону профилактические комплексы (ТР + ПК1, ТР + ПК2 и ТР + ПК3), уровень экспрессии провоспали-тельных цитокинов также был выше, чем в группе биологического контроля, однако в случае IFNγ в группах ТР + ПК2 и ТР + ПК3 повышение не было статистически значимым. У кур-несушек, третьей, четвертой и пятой группах уровень цитокинов был повышен на 37,6 %
(p < 0,001), 57,5 (p < 0,001), 21,9 (р < 0,01); 39,2 (p < 0,001), 36,6 (p < 0,001), 17,2 и 18,4 (p < 0,05), 20,9 (p < 0,05), 12,4 % соответственно в отношении IL1β, IL6 и IFNγ.
В остальных группах (птицы, получавшие профилактические комплексы в дополнение к основному рациону) статистически значимых отличий уровень экспрессии от такового в БК не наблюдалось.
* р < 0,05, ** р < 0,01, *** р < 0,001, при сравнении с группой биологического контроля
Рис. 2. Экспрессия мРНК провоспалительных цитокинов в тимусе кур mRNA expression of pro-inflammatory cytokines in the thymus of chickens
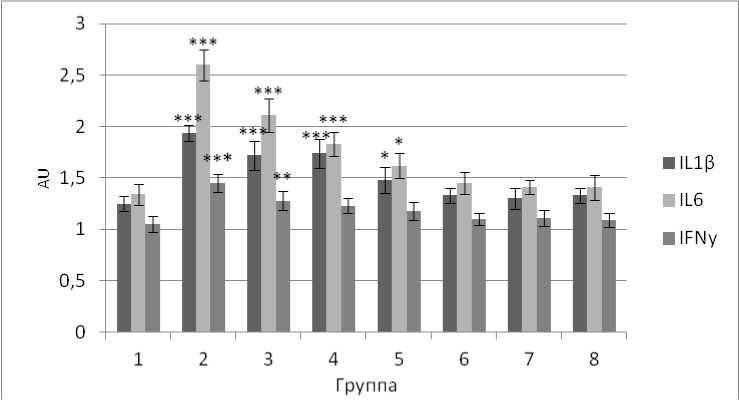
Повреждения печени, как уже было отмечено выше, являются характерным токсическим эффектом микотоксинов, приводя в ряде случаев к тяжелым повреждениям печени, включая острый гепатит и органические поражения тканей на фоне оксидативного стресса [8, 13, 20]. Усиление индукции мРНК провоспалительных цитокинов в группе токсического контроля было отмечено также в печени, что подтверждает данные о гепатотоксическом действии сочетанного поступления в организм микотоксинов и потенцирование начальной индукции в дальнейшую активацию цитокиновой сети [19–21] (рис. 3).
Повышение экспрессии провосполительных цитокинов в группе токсического контроля составило 72,6 % (p < 0,001), 48,7 (p < 0,001) и 46,0 % (p < 0,001) соответственно.
Такие же изменения экспрессии провоспали-тельных цитокинов, хотя и в меньшей степени, были отмечены и для групп ТР + ПК1 и ТР + ПК2; в группе ТР+ПК3 значимо отличался от значений группы биологического контроля только уровень экспрессии IL6. В третьей и четвертой группах птиц увеличение экспрессии генов происходило на 35,6 % (p < 0,001), 29,6 (p < 0,01), 26,0 (p < 0,01) и 30,4 (p < 0,01), 26,1 (p < 0,01), 19,0 % (p < 0,05) соответственно в отношении IL1β, IL6 и IFNγ. Экспрессия IL1β, IL6 и IFNγ в пятой группе птиц увеличивалась на 14,8 %, 15,7 (р < 0,05) и 10,0 %.
У птиц, получавших исследуемые профилактические комплексы с кормом, не содержащим микотоксины, достоверных изменений экспрессии IL1β, IL6 и IFNγ не регистрировали.
р < 0,05, ** р < 0,01, *** р < 0,001 при сравнении с группой биологического контроля
Рис. 3. Экспрессия мРНК провоспалительных цитокинов в печени кур Expression of mRNA of pro-inflammatory cytokines in the liver of chickens
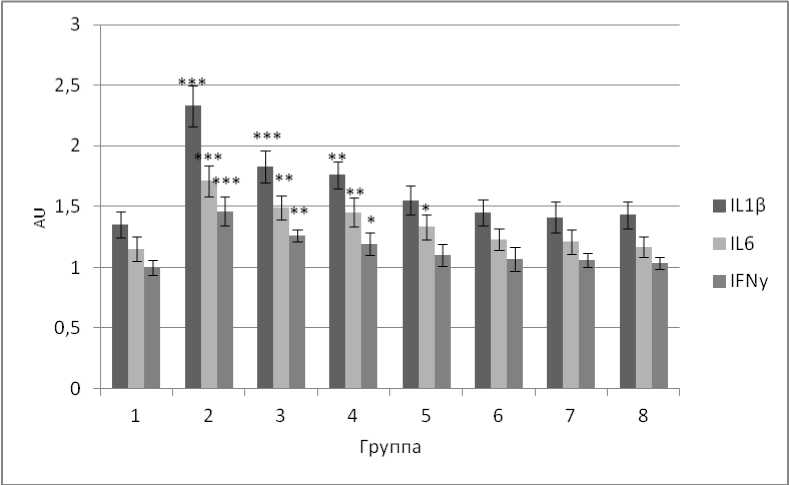
Согласно литературным данным [7], микотоксины способны нарушать целостность кишечного барьера, модулировать состав микробиоты кишечника и вызывать аномальные иммунные и воспалительные реакции, а их негативное влияние на здоровье кишечника включает как цитотоксичность (повреждение клеток кишечника и плотных межклеточных соединений), так и окислительный стресс, изменение электрического потенциала и разрушение барьера слизистой оболочки кишечника. Микотоксины нарушают функцию барьера слизистой оболочки кишечника, модулируя экспрессию некоторых генов, а сочетанное действие нескольких микотоксинов имеет кумулятивный эффект. В тощей кишке на фоне микотоксикоза (группа ТК) профили мРНК цитокинов отличались от эффектов в селезенке, тимусе и печени: происходило снижение их уровней экспрессии по сравнению с группой биологического контроля (рис. 4). Интоксикация микотоксинами вызывала резкое снижение синтеза ILie, IL6 и IFNy на 64,0 % (p < 0,001), 39,2 (p < 0,001) и 61,7 % (p < 0,001) относительно группы биологического контроля.
Это согласуется с литературными данными: при попадании в организм в зависимости от ря- да факторов одни и те же микотоксины могут оказывать разнонаправленный эффект на иммунную систему: например, известно, что низкие дозы могут стимулировать иммунитет и вызывать воспалительные процессы, в то время как высокие дозы могут приводить к супрессии иммунной функции [7].
В случае применения профилактических комплексов на фоне микотоксикоза в группах ТР + ПК1, ТР + ПК2 и ТР + ПК3 также снижался уровень синтеза IL1β, IL6 и IFNγ, однако в меньшей степени: в группах группах ТР + ПК1 и ТР + ПК2 показатели всех трех цитокинов были выше таковых для группы ТК, хотя и значимо отличались от БК, а в группе ТР + ПК3 наблюдается только тенденция к их снижению (отличия от БК не значимы).
В третьей, четвертой и пятах группах уровень цитокинов был повышен на 35,0 % (р < 0,01), 20,0 (р < 0,05), 23,4 (р < 0,01); 19,0 (р < 0,05), 20,8 (р < 0,05), 24,8 (р < 0,01); 9,0, 11,2, 9,9 % соответственно в отношении IL1β, IL6 и IFNy.
В группах, получавших профилактические комплексы с основным рационом, не контаминированным микотоксинами, изменений профиля экспрессии не отмечено.
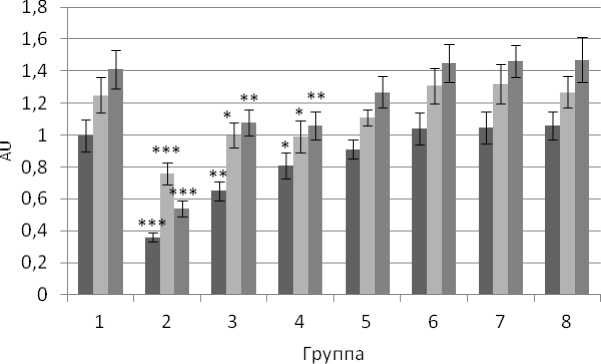
* р < 0,05, ** р < 0,01, *** р < 0,001 при сравнении с группой биологического контроля
Рис. 4. Экспрессия мРНК провоспалительных цитокинов в тощей кишке кур mRNA expression of pro-inflammatory cytokines in the jejunum of chickens
Заключение. Результаты наших исследований показали, что при одновременном поступлении трех микотоксинов (Т-2 токсин, зеарале-нон и афлатоксин В 1 ) в селезенке, тимусе и печени кур-несушек наблюдается усиление экспрессии мРНК провоспалительных цитокинов (IL1β, IL6 и IFNγ). В тощей кишке наблюдается снижение уровня экспрессии цитокинов.
Исследованные профилактические комплексы при добавлении в рацион в дозе 0,25 % от рациона не приводили к изменению профиля синтеза провоспалительных цитокинов и в то же время модулировали повышенную и сниженную индукцию провоспалительных цитокинов. Однако значимый эффект (отсутствие статистически значимых отличий от группы биологического контроля) в условиях сочетанного микотоксикоза был отмечен только при использовании третьего профилактического комплекса.
