Моделирование динамики сообщества «хищник – жертва» с учетом промысла
Журнал: Региональные проблемы @regionalnye-problemy
Рубрика: Математическое моделирование
Статья в выпуске: 3 т.29, 2026 года.
Бесплатный доступ
На основе исследования математической модели локального сообщества хищник-жертва изучено влияние промысла хищника на динамику взаимодействующих популяций. Предложенная модель учитывает насыщение численности хищника, воспроизводство которого ограничивается объемом доступной кормовой базы. Рассматривается задача оптимизации добычи хищника. Показано, что интенсивный промысел приводит к вырождению популяции хищника и значительному увеличению численности жертв.
Короткий адрес: https://sciup.org/143186254
IDS: 143186254 | УДК: 517.925.42:574.34 | DOI: 10.31433/2618-9593-2026-29-3-16-20
Modeling the predator-prey community dynamics accounting the harvest
Based on a local predator-prey community model, it has been investigated the impact of predator harvest on the interacting populations dynamics. The proposed mathematical model takes into account the predator population replenishment and its reproduction, limited by the availability of food. We consider optimizing the predator harvest problem, showing that intense predator harvesting leads to a decrease in its population and, therefore, to a considerable increase in prey population.
Текст научной статьи Моделирование динамики сообщества «хищник – жертва» с учетом промысла
e-mail: , ;
e-mail: ,
Ухудшение состояния окружающей среды в значительной степени обусловлено нерациональным использованием природных ресурсов. В данных условиях научно обоснованное определение оптимальных объёмов их потребления представляется важным для разработки стратегий рационального природопользования [8]. Одним из эффективных инструментов решения данной задачи является математическое моделирование, дающее возможность количественно оценить допустимый объём изъятия, при котором его биомасса сохраняется на устойчивом ненулевом уровне, что минимизирует вероятность его исчерпания в обозримой перспективе [2, 3, 6].
Среди математических методов исследования особое место занимает моделирование динамики сообществ типа «хищник – жертва», позволяющее прогнозировать изменения численности популяций, оценивать устойчивость экосистем и разрабатывать стратегии управления биоресурсами. В условиях растущего давления на биоре
сурсы (рыболовство, охота, добыча диких животных) необходимость учёта промысла в моделях «хищник-жертва» становится особенно острой. Избирательное изъятие особей – по возрастным группам, полу или размеру – может кардинально менять динамические режимы: от стабилизации численности до возникновения колебаний или даже коллапса популяций.
Настоящая работа посвящена исследованию влияния промысла популяции хищников на динамику сообщества, функционирующего по принципу «хищник – жертва» [1, 4]. Баланс популяции жертвы (соотношение рождаемости и смертности) определяется двумя факторами: процессами самолимитирования внутри популяции и уровнем хищничества. В свою очередь, динамика численности хищника зависит от доступности жертв: потреблённая биомасса жертв трансформируется в биомассу хищника. Для описания процесса потребления использованы функции насыщения, соответствующие функциональному отклику Холлинга II типа [5], когда увеличение биомассы хищника не приводит к значительному увеличению потребления жертв. В результате в условиях отсутствия промысла взаимодействие видов приводит к устойчивой динамике [7].
Модель динамики с учетом промысла
Рассматриваемая в работе модель динамики численности локального сообщества «хищник – жертва» является модификацией уравнений, пред- ложенных А.Д. Базыкиным [1], с учетом промыс- ла особей принимает следующий вид:
d x .
77=x (1 - ax ) -
xy
( 1 + hx )
u x ,
dy dt
- c y +
cxy
( 1 + h x )
- v y .
где x и y – плотность популяции жертв и хищников соответственно, h – коэффициент насыщения хищника, a – коэффициент самолимитирования жертвы, c – относительная скорость снижения численности хищников, u, v – относительная скорость изъятия (промысла) жертв и хищников соответственно.
Согласно результатам, представленным в исследовании [3], при отсутствии промысла ( u =0, v =0) модель (1) демонстрирует не только устойчивые стационарные режимы, но и сложные быстро-медленные колебательные процессы. Эти процессы формируют максимальный предельный цикл, характеризующийся резкими скачками численности с последующей фазой её постепенного снижения [2, 6, 9]. Такая динамика напрямую соотносится с экологическим циклом: период интенсивного хищничества и, как следствие, роста их биомассы сменяется длительным этапом восстановления популяции жертв, в ходе которого уровень их потребления снижается до минимума.
В общей системе (1) изъятие осуществляется из обеих популяций, однако на начальном этапе исследования рассмотрим случай, когда промысел особей совершается только в популяции хищников ( u =0) с долей v от текущей численности x ( t ).
Результаты
Проведем анализ областей устойчивости состояний равновесия модели (1) в случае изъятия хищника. Зафиксируем значения параметров: a=0.12, h=0.5, c=0.05, v=0.01, u=0. Далее построим двумерные параметрические портреты системы (1), состоящие из областей устойчивости её особых точек, которые позволяют описать условия перехода от монотонной стационарной динамики к колебательным режимам численности в зависимости от вариации популяционных параметров. На рис. 1б приведены результаты сканирования параметрической плоскости для пары бифуркационных параметров a и v. Для каждой точки на рассматриваемой плоскости численно определим тип устойчивости состояний равновесия системы (1). Полученные результаты соответствуют различным областям на рис. 1б, обозначенным цифрами и цветом.
Система (1) при u =0 имеет три особые точки: тривиальную O (0;0), полутривиальную B (1/ a ; 0), соответствующую нулевой численности хищников, и нетривиальную A ( x 0; y 0), с ненулевыми численностями обеих популяций.
Из рис. 1 б видно, что в системе (1) могут возникать как простые устойчивые режимы (области 1 и 2), так и колебательные режимы динамики с резкими изменениями численностей, соответствующие релаксационному (область 3) или гетероклиническому предельному циклу (область 4). В области 5 происходит обмен устойчивостью между точками А и В , что соответствует вырождению популяции хищников при увеличении доли их изъятия.
На рис. 1 а показано, как изъятие хищников влияет на смену динамики обеих популяций. При низкой его доле ( v ≤0.1) в динамике сообщества «хищник – жертва» наблюдаются устойчивые колебания. С ростом доли изъятия амплитуда колебаний падает ( y max→ y ), средняя численность жертв < x > постепенно возрастает при незначительном изменении средней численности хищников < y >. То есть даже незначительное уменьшение биомассы хищников приводит к значительному увеличению средней численности жертв (снижается трофическое давление хищничества). При увеличении доли промысла ( v >0.1) цикл стягивается к особой точке и в окрестности бифуркации Андронова-Хопфа ( AH ) он переходит в устойчивое состояние равновесия (точка A ). Затем происходит быстрое снижение численности хищника, что приводит к значительному росту числа жертв. Далее в результате транскритической бифуркации ( TC ) популяция хищников полностью вырождается, а биомасса жертв стабилизируется на достаточно высоком уровне. Интересно, что на небольшом промежутке перед достижением системы бифуркации Андронова-Хопфа ( AH ) средняя численность хищников резко возрастает, что приводит к снижению средней численности жертв в результате потребления их хищником.
Рассмотрим динамику сообщества «хищник – жертва» в случае изменения объемов промысла, когда изъятие происходит в зависимости от
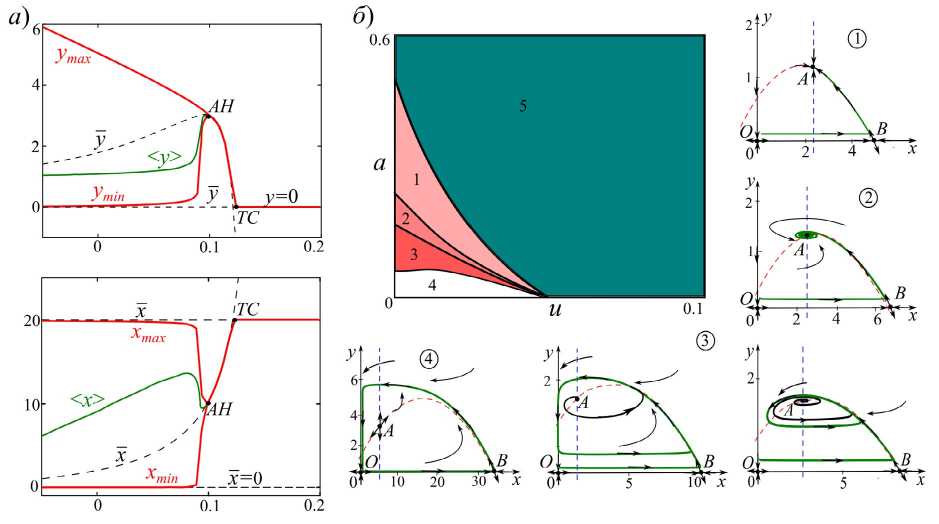
Рис. 1. а ) Бифуркационная диаграмма особых точек ( x – жертвы, y – хищника, TC и AH – транскритическая и бифуркация Андронова-Хопфа) системы (1) в зависимости от доли изъятия v при a =0.12, h =0.5, c =0.05, v =0.01, u =0; б) двумерный параметрический портрет и фазовые портреты системы (1), иллюстрирующие изменение типа устойчивости особых точек: 1 – устойчивый узел, 2 – устойчивый фокус, 3 – предельный цикл и релаксационный предельный цикл, 4 – гетероклинический цикл, 5 – устойчивая точка В (хищник отсутствует)
Fig. 1. a) Bifurcation diagram of singular points ( x – prey, y – predator, TC and AH – transcritical and Andronov–Hopf bifurcations) of system (1) for different values of the harvest rate v, with a=0.12, h=0.5, c=0.05, v=0.01, u=0; b) b) two-dimensional parametric portrait and phase portraits of system (1), illustrating the change in the stability type of singular points: 1 – stable node, 2 – stable focus, 3 – limit cycle and canard cycle, 4 – heteroclinic cycle, 5 – stable point B (no predator)
текущей численности особей. В этом случае функция промысла имеет вид: v(t) = v0/(1 + e-k(t-to)), где k – коэффициент крутизны изъятия, показывает то, как быстро промысловик увеличивает темпы изъятия, v0 – максимальная доля изъятия, t0 – начальное время, с которого начинается промысел.
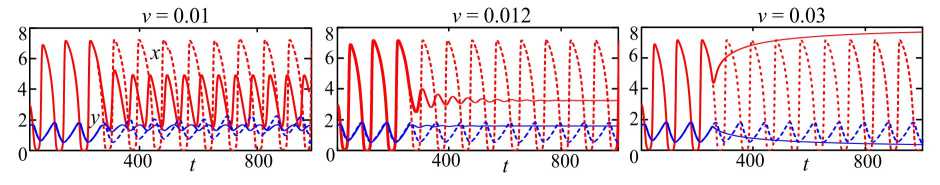
На рис. 2 показано, как изменяется динамика рассматриваемой системы в зависимости от максимальной доли изъятия, стартующей в один и тот же момент времени (t0=255), соответствующей высокой численности хищника. Для наглядной демонстрации происходящих изменений пунктирными линиями показана динамика популяций без промысла. Из рис. 2 видно, что небольшая доля изъятия (v≤0.011) хищника (рис. 2а) приводит к уменьшению амплитуды колебаний и увеличению средней численности особей. Небольшое увеличение объемов промысла стабилизирует динамику рассматриваемого сообщества. В случае небольшой доли изъятия (0.11 Рис. 2. Изменения динамики модели (1) при введении промысла начиная с t0=255 Fig. 2. Changes in the model dynamics (1) when harvesting begins at t0=255 к стационарному состоянию) (рис. 2в). Более высокая скорость изъятия (v>0.031) приводит к падению численности хищников практически до нуля, а численность жертвы без трофического давления резко возрастает, и, за счет самолимитирова-ния, стабилизируется на максимально возможном уровне, ограниченном средой обитания. Следует отметить, что объем биомассы хищника в момент изъятия, даже при минимальной численности особей (t0=210), не влияет на характер общей динамики. Заключение Показано, что небольшая доля изъятия особей из популяции хищников в целом стабилизирует общую динамику рассматриваемого сообщества «хищник – жертва», однако превышение этой доли сверх оптимального значения (промысел более 3% от фактической биомассы хищников) приводит к вырождению хищника на данной территории и бурному росту популяции жертв в отсутствие трофического контроля. Оказалось, что значение численности хищника на момент изъятия не влияет на общий характер динамики системы. Это указывает на доминирующую роль именно интенсивности промысла (v), а не исходного состояния популяции хищников, в формировании долгосрочных тенденций развития сообщества. Полученные результаты подчёркивают необходимость тщательного подбора интенсивности промысла для сохранения баланса в рассматриваемом сообществе «хищник – жертва».