
Роль локального и глобального потоков генов в генетической дивергенции системы миграционно связанных популяций
Журнал: Региональные проблемы @regionalnye-problemy
Рубрика: Математическое моделирование
Статья в выпуске: 3 т.29, 2026 года.
Бесплатный доступ
Исследуются условия пространственной дифференциации признаков (дивергенции) в пределах однородного ареала, когда поток генов между популяциями возможен как для смежных участков, так и для достаточно удалённых. Обнаружено, что вероятность формирования дивергенции, возможной при дизруптивном отборе, снижается с ростом радиуса локальной (близкодействующей) связи. Появление небольшого числа глобальных связей (дальних миграций), сближающих ранее несвязанные субпопуляции, способствует дивергенции.
Короткий адрес: https://sciup.org/143186252
IDS: 143186252 | УДК: 575.174:519.876.5 | DOI: 10.31433/2618-9593-2026-29-3-5-9
Kulakov M.P. Local and global gene flow role in genetic divergence of the populations coupled by migration
This paper explores the conditions for the spatial differentiation of traits (divergence) in a homogeneous area, where gene flow is possible between adjacent populations (local connection) and distant regions (global). It is found that the probability of divergence, which often occurs under disruptive selection, decreases as the radius of local (short-range) coupling increase. Introducing a few long-distance connections, that bring previously isolated subpopulations together, promotes divergence.
Текст научной статьи Роль локального и глобального потоков генов в генетической дивергенции системы миграционно связанных популяций
Институт комплексного анализа региональных проблем ДВО РАН, ул. Шолом-Алейхема 4, г. Биробиджан, 679016, e-mail: ,
Поиск причин генетической дифференциации или дивергенции признаков по ареалу у популяций животных, обитающих на обширных территориях, является одной из ключевых задач современной эволюционной биологии. Её актуальность напрямую связана с изучением механизмов видообразования и репродуктивной изоляции, а также с сохранением биологического разнообразия. Существует множество примеров популяций животных (большая и восточная синицы, чёрная и серая вороны и др.), которые, будучи не полностью изолированными, сохраняют возможность гибридизации, но имеют чёткую дивергенцию признаков с резкими переходами от одних форм к другим [2, 4]. Не до конца ясно, насколько наблюдаемая дивергенция «окончательна» и наступит ли со временем полная репродуктивная изоля- ция. Вместе с тем существует гипотеза об особой роли гибридного потомства от родителей с разными признаками [3], согласно которой гибриды, обладающие пониженной индивидуальной приспособленностью (из-за низкой выживаемости, сниженной фертильности или положительной ассортативности спаривания), способствуют репродуктивной изоляции.
В настоящей работе на основе ранее разработанной математической модели [5] исследуются механизмы генетической дивергенции признаков, определяемые единственным аутосомным локусом, наследуемым кодоминантно. Определены условия формирования и сохранения дивергенции в популяциях диплоидных организмов с кольцевым ареалом и разным характером миграции и потока генов: локальной (близкодействующей) и глобальной (дальние случайные перемещения особей).
Модель динамики численности и частот генотипов
Рассматривается панмиктичная популяция с непересекающимися поколениями, в которой действуют менделеевские правила наследования. Наиболее интенсивному отбору подвержен один признак, кодируемый геном с аллелями A и a . Популяция состоит из n миграционно связанных субпопуляций, образующих метапопуляцию, и расположена на кольцевом ареале. Миграция особей и поток генов возможны как между смежными участками (в пределах некоторого радиуса R ), так и между случайно выбранными субпопуляциями (за пределами радиуса R ).
Уравнения динамики частот генотипов qk ( k=AA , Aa и aa ) и общей численности N ( i ) на участке с номером i ( i =1,2,3,… n ) в дискретный момент времени t ( t= 0,1,2,3,…) имеют вид:
<
n^-i qki)((+1)=S MijN(j)(() qkj) ((), H ( t) j=0
N(i) (t +1) = Sm, W(j)F(N(j) (t))n(j) (t), j=0
где q* (t) = (q,(t) + q2(t)/2)2, q*(t) = 2(q,(t) + q2(t)/ / 2X q з( t)+ q 2( t )/2) и q * (t) = ( q з( t) + q *( t )/2)2 — частоты генотипов после объединения гамет в зиготы, но до действия отбора и миграции;
= £ m , , j N(j ) W(j )
j = 0 ,
H ( i )
– нормировочный множи-
тель; W ( j ) = 1 + 5 1 q 1 ( j ) + s 2 q 2j ) + s 3 q 3j ) - средняя приспособленность j -й субпопуляции до миграции; 1+ sk – приспособленность зиготы с генотипом k .
Функция F описывает действие плотностнозависимых факторов, ограничивающих рост численности, а также эффект Олли (корреляция между средней индивидуальной приспособленностью и плотностью населения):
a e — NK F ( N ) = 1 + e — h ( N — N о ) ,
где параметр h ≥2 задает крутизну кривой в точке N 0. Значение N 0 определяет минимальную эффективную численность, необходимую для простого воспроизводства популяции (1 к 1). Параметр K определяет экологическую емкость среды; a – среднее число потомков, приходящихся на одну особь при единичной средней приспособленности
( W = 1).
Миграция и поток генов описывается матрицей M со случайными коэффициентами mi,j~Exp[m] (экспоненциально распределенная случайная ве- личина с математическим ожиданием m/2). Каждый недиагональный mi,j (i≠j) равен доли особей, переселяющихся из j-го участка на i-й (сила связи между ними). Рассматривается такой способ миграции, при котором после воспроизводства из участка с номером i случайное положительное число особей мигрирует на 2R соседних участка (с номерами i±1, i±2,_, i±R), а также на Gj случайно выбранных, расположенных дальше, чем i ±R. В результате некоторые из субпопуляций связаны только с 2R субпопуляциями, а другие с 2R+Gi. Число эмигрантов нормируется на два этих числа, чтобы их сумма не превосходила общее число эмигрантов mN(i) (0≤m<1). На диагонали матрицы M расположена доля особей, оставшихся после эмиграции на другие участки, т.е. Mi,i = 1 - S (1 - jmj,i - Smj,i “ 1 - m
\ j ' - i | S R |j - i > R
( δij – символ Кронекера), где первая сумма соответствует эмиграции на близкорасположенные участки (локальная связь), второй – на более удаленные (глобальная связь). Общее число глобальных связей обозначим как G= ∑ Gj . Для каждого номера сезона t строится уникальная матрица миграции.
Результаты
Рассмотрим, как меняются режимы динамики системы (1)-(2) при вариации параметров отбора – s 1, s 2 и s 3, – а также связи – m , R и G . Зафиксируем параметры значениями, полученными в результате верификации модели по данным о частотах в эксперименте с 30 связанными в кольцо ящиками, заселенными дрозофилами ( Drosophila melanogaster ) [1], проведенном под руководством Ю.П. Алтухова: n =30, a =3.6, N 0=5, K =90, h =5, s 1=0.46, s 2=0.07, s 3=0.41, m =0.05 [5]. В качестве начальных условий будем использовать случайные начальные численности: N ( i ) (0)~ U [0;37], (∑ N ( i ) (0)≈300), и частоты генотипов: q 1(0)=0.25±0.1, q 2(0)=0.41±0.1, и q 3(0)=0.33±0.16. Эти частоты соответствуют наиболее вероятному результату дрейфа генов при численности ниже эффективной ( Ne ≈50), который имеет место при заселении изначально пустых ящиков.
Для анализа пространственно-временной динамики будем следить за рядом показателей коллективной динамики: параметром порядка, волновым числом, а также средней для всей системы частотой
Генетическая дивергенция в системе (1) выражается в том, что из случайных начальных условий (результат дрейфа генов) регулярно формируются две или более генетически однородные группы субпопуляций (кластеры) и зоны гибридизации между ними. При многократном повторении расчетов (репликах)
размер L этих групп и их расположение неизбежно меняются, но сохраняются некоторые общие черты. Множество вариантов дивергенции задает распределение вероятностей значений показателей коллективной динамики, которые являются случайными величинами. Анализ этих распределений позволяет описать закономерности генетической дивергенции как при фиксированных значениях параметров, так и при их изменении. На рис. 1 показаны результаты анализа функции
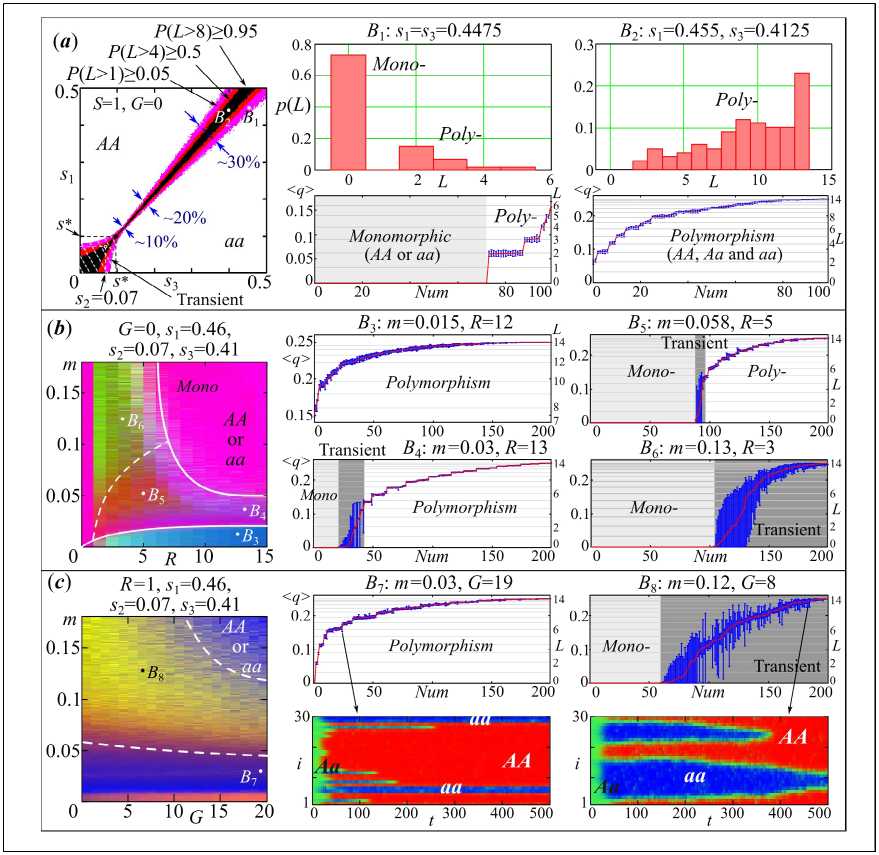
Рис. 1. Слева – области параметров, при которых возникает генетическая дивергенция: (a) при вариации параметров отбора и (b – c) миграции. Посередине и справа – распределения реплик модели (1) по размеру L и величине < q >. Внизу – примеры динамики, в которых дивергенция устойчива ( B 7) или возможна как часть длительного переходного процесса ( B 8)
Fig. 1. On the left – the parameter domains that cause genetic divergence: (a) variation in selection parameters, and (b – c) migration parameters. In the middle and on the right – distributions of model replays (1) by size L and value < q >. Below – examples of dynamics with stable divergence ( B 7) or divergence as part of a long transition process ( B 8)
распределения вероятности возникновения кластеров суммарного размера L , хорошо коррелирующие с величиной < q >=< q A >(1-< q A >).
На рис. 1 a видно, что для возникновения устойчивой генетической дивергенции при диз-руптивном типе отбора недостаточно лишь простой пониженной приспособленности гетерозигот ( s j > s 2 , s 3 > s 3 ). Во-первых, параметры отбора гомозигот должны превосходить не интенсивность отбора гибридов s 2, а некоторое критическое её значение s*>s 2. В противном случае дивергенция возникает только как часть длительного переходного процесса (transient на рис. 1 a ). Во-вторых, существует максимально допустимая разность между параметрами отбора гомозиготных особей. При превышении этого порога в метапопуляции закрепляется наиболее приспособленный генотип ( AA если s j > s 2 , или aa , если s 3 > s 1 ), а прочие генотипы вымываются. В результате, если гомозиготы лишь немного превосходят гетерозиготных особей (гибридов), то дивергенция будет возможной только тогда, когда между противоположными признаками нет существенной разницы в приспособленно-стях ( s 1 ≈s 3 ≳ s* ). При существенном преимуществе гомозигот над гибридами ( s 1 ,s >> s* ) разница в их приспособленностях может быть достаточно высокой (30–40%).
На рис. 1 b и c показано, что с ростом параметров R и G дивергенция оказывается возможной лишь для малых значений параметра миграции m . Переход между устойчивой пространственной дифференциацией признака в этом случае менее четкий, чем при вариации параметров отбора (рис. 1 a ). Это проявляется в двух аспектах. 1) Количество реплик, для которых < q >=0 (закрепляется признак AA или aa ), плавно растет при пересечении некоторых пороговых значений m , R и G . 2) Появляются реплики, у которых размах вариации величины < q > оказывается очень высоким. Такой вариант пространственного распределения частот соответствует ситуации, когда дивергенция формируется, но оказывается нестационарной: размеры кластеров и их расположение меняются во времени, а средняя частота < qA >→0 или 1. Это часто приводит к закреплению лишь одного генотипа (не обязательно наиболее приспособленного).
Заключение
В работе развивается модельный подход, исследующий роль отбора против гибридов в эволюционирующей системе популяций. Показано, что для активно мигрирующих видов диплоидных организмов такой тип отбора – необходимое условие для пространственной дифференциации их признаков в пределах однородного ареала. Уточнены диапазоны параметров отбора, при которых возможна генетическая дивергенция.
Обнаружено, что глобальная связь, т.е. быстрая колонизация достаточно удаленных участков, делает ареал более «тесным» и позволяет признаку распространиться значительно быстрее, чем при локальной связи на коротких дистанциях. Более того, «новый» признак в этом случае может распространиться туда, куда иначе он не смог бы проникнуть, из-за изолирующего действия зон гибридизации. С одной стороны, это может препятствовать дивергенции, особенно при высоких темпах миграции. С другой стороны, такой тип миграции эффективнее поддерживает генетическое разнообразие при невысокой интенсивности миграции по сравнению с ситуацией локальной связи.
Работа выполнена в рамках государственного задания Института комплексного анализа региональных проблем ДВО РАН (FWUG-2024-0005 / № 125011000074-3).
