Система «хищник-жертва» с эффектом Олли и функциональным откликом Холлинга четвертого типа
Журнал: Вестник Бурятского государственного университета. Математика, информатика @vestnik-bsu-maths
Рубрика: Математическое моделирование и обработка данных
Статья в выпуске: 3, 2026 года.
Бесплатный доступ
Модели «хищник-жертва» в математической экологии известны более 100 лет. Они интенсивно исследуются и в настоящее время. Большинство моделей использует простые показатели (коэффициенты) рождаемости (воспроизводства) и смертности, которые связаны различными типами функциональных реакций. Наиболее известны функциональные реакции Холлинга I–IV типов. Функциональный отклик соответствует среднему количеству жертв, которое хищник потребляет за единицу времени. Существует четыре типа функции Холлинга, из которых четвертый тип отличается от остальных своей немонотонностью. Это позволяет более гибко учитывать насыщение хищников при высокой плотности жертв. Важным показателем модели также является зависимость скорости воспроизводства популяции от её плотности, впервые предложенная Олли. В данной работе изучается модель «хищник-жертва» с функциональным откликом Холлинга IV типа и эффектом Олли для жертв. Эффект Олли представлен новой функцией, которая оказывает влияние на динамику системы.
Короткий адрес: https://sciup.org/148334315
IDS: 148334315 | УДК: 51-7, 517.938 | DOI: 10.18101/2304-5728-2026-3-80-90
Predator-Prey System With Allee Effect and Holling IV FunctionalResponse
Predator-prey models in mathematical ecology have been known for over 100 years and are currently being intensively studied. Most models use simple indices (coefficients) of fertility (reproduction) and mortality, which are related by various types of functional responses. The most well-known are Holling functional responses of types I–IV. The functional response corresponds to the average number of prey consumed by a predator per unit of time. There are four types of Holling functions, of which the fourth type differs from the others in its non-monotonicity. This allows for a more flexible accounting of predator satiation at high prey densities. Another important model indicator is the dependence of the population reproduction rate on its density, first proposed by Allee. This paper examines a predator-prey model with Holling functional response of type IV and the Allee effect for prey. The Allee effect is represented by a new function that influences the system dynamics.
Текст научной статьи Система «хищник-жертва» с эффектом Олли и функциональным откликом Холлинга четвертого типа
Модель «хищник-жертва» возникла в исследованиях А. Лотки, а затем В. Вольтерры [1; 2] и включает множество различных функциональных реакций (откликов) и показателей межвидовой конкуренции. Олли [3] в 1931 г. предположил, что скорость воспроизводства популяции зависит от темпа роста биологического вида на душу населения. Это может демонстрироваться в различных явлениях. Эффект Олли для жертв обычно сни- жает эластичность системы, увеличивая риск вымирания жертв [4]. Различают сильный и слабый эффекты Олли. Сильный эффект Олли может нарушить устойчивость равновесия или замедлить переход к устойчивому состоянию. Здесь часто присутствует популяционный порог, который необходимо преодолеть для роста. Слабый эффект Олли в некоторой степени увеличивает риск вымирания, но популяция все еще может выжить при низкой плотности [5].
В исследованиях [6; 7] была построена общая форма эффекта Олли, зависимая от биологических ограничений, и предложена возможная функция, представляющая его. В нашем исследовании рассматривается новая функция [8] и изучается ее влияние на динамику системы «хищник-жертва» для функционального отклика Холлинга IV.
1 Эффект Олли
Рассмотрим общую форму системы «хищник-жертва». Пусть Q и P обозначают популяции жертв и хищников. Тогда систему можно записать в виде dQ = А (Q) Q - g (Q, P), dt
dP = sg (Q, P) - f2( P) P, I dt где f1 (Q) и f 2 (P) обозначают темпы роста популяций жертв и хищников соответственно, g (Q, P) — функция, описывающая рассматриваемую пищевую цепочку, s — коэффициент обработки пищи.
Если эффект Олли для жертв имеет место, то f1 (Q) должна быть вы- ражена в виде произведения fl (Q ) = a( Q) fl (Q), (2)
где a ( Q) — множитель, отвечающий за эффект Олли, f 1 ( Q ) — темп роста популяции жертв без эффекта Олли.
Из практических соображений можно выделить несколько свойств функции a ( Q ) :
-
(1) a ( Q ) ^ 0;
, . da (Q)
-
(2) a ( Q ) = —^ 0; (3)
dQ
-
(3) lim a ( Q ) = 1; Q ЧКИ
-
(4) a ( 0 ) = 0.
Первое условие очевидно. Второе вместе с третьим означает, что влияние эффекта Олли с увеличением популяции ослабевает. Четвертое условие утверждает, что для малых популяций эффект Олли снижает скорость размножения до минимально возможного уровня.
Одна из возможных функций, удовлетворяющих всем четырем условиям, имеет вид
a ( Q ) = 1 - e - aQ . (4)
Эта функция изучалась в [8] с функциональными откликами Холлинга I и II. Мы рассматриваем ее с функциональным откликом Холлинга IV.
2 Постановка задачи
Рассмотрим систему «хищник-жертва» следующего вида ' I = x < r ( 1 - x ) - e ax )- b^ ■ dy = cxy - y
. dt b + x2
Здесь параметры a , b вводятся для регулирования эффекта Олли.
Функциональная реакция задаётся как и соответствует функцио-x2 + b нальному отклику Холлинга IV типа. Параметр r служит для подгонки функции отклика. В нашей системе мы для упрощения вычислений принимаем его за 1. Все параметры, кроме b , положительны, а b может быть и отрицательным.
Система может иметь максимум четыре равновесия, одно из которых находится в начале координат, второе — на оси Ox с абсциссой x0 = 1 -e e^ , которая изменяется от 0 до 1 при а е(1,да). Коор- динаты двух других равновесий задаются формулами:
и
c
x = —+
4 c2 - 4 b
y i = 2 c
( c +л/ c 2 - 4 b )
- e
( c + 4 c 2 - 4 b ) - c2
- c4c2 - 4b + 2b + c + 4c2 - 4b
x 2
4 c2 - 4 b
y 2 = 2 c
a (-c+4 c 2 —4 b e2
(- c + 4 c2 - 4 b)
- c2 + c4c2 - 4b + 2b + c
- 4 c 2 - 4 b
\
Наша цель — исследовать характер равновесных состояний и возможные бифуркации.
3 Результаты исследования
В силу громоздкости выражений для координат равновесных точек исследование их характера с помощью линеаризации, как и другими аналитическими методами, затруднительно. Поэтому мы ограничиваемся здесь лишь численными экспериментами. Все расчеты производились при b = 1, для других допустимых значений b картина принципиально не отличается.
-
1. При a = 0 в системе имеется лишь одна неподвижная точка — (0,0 ) и она устойчива (рис. 1). Обе популяции вымирают.
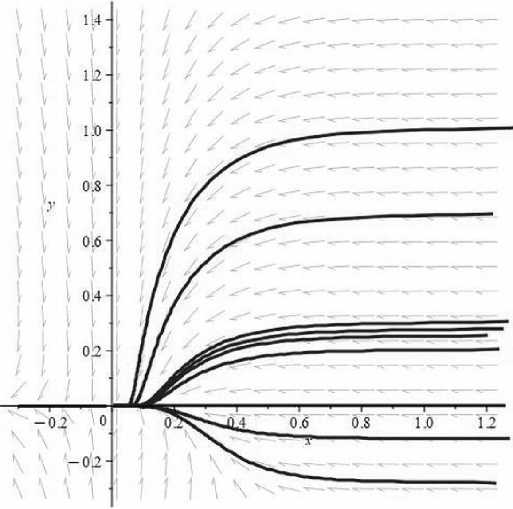
Рис. 1
-
2. При 0 < a < 1, 0 < c < 2 b — две неподвижные точки ( 0,0 ) и точка с отрицательной абсциссой. Начало координат устойчиво только справа (рис. 2). Обе популяции вымирают.
-
3. При a = 1, 0 < c < 2 b — одна неподвижная точка ( 0,0 ) и она устойчива (рис. 3). Вновь полное вымирание популяций.
-
4. При a > 1, 0 < c < 2 b — две неподвижные точки, одна в начале координат, вторая — на положительной полуоси Ox. Первая точка устойчива слева, вторая асимптотически устойчива (рис. 4). Популяция хищников вымирает, а популяция жертв остается на фиксированном уровне.
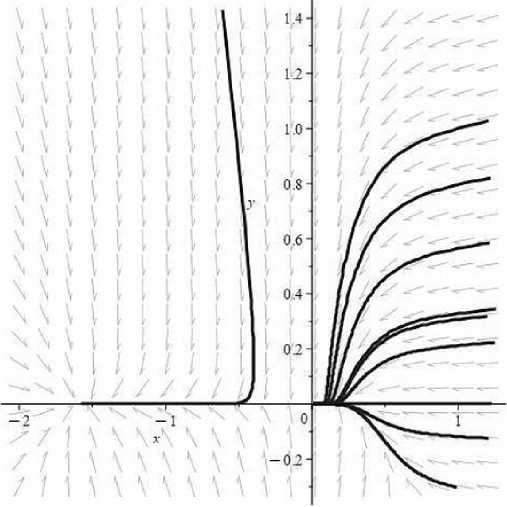
Рис. 2
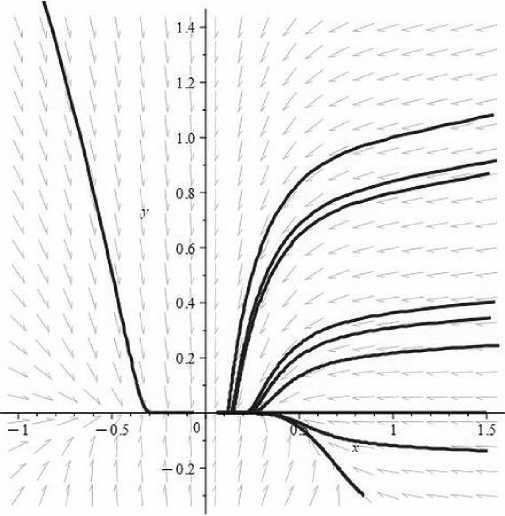
Рис. 3
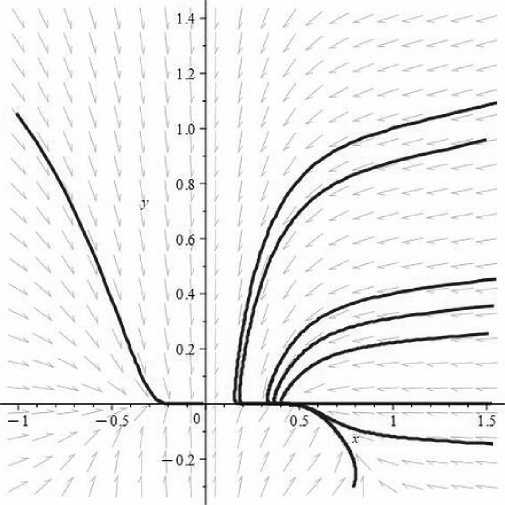
Рис. 4
a > 1, c = 2 b —
5. При
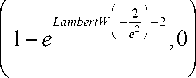
и
1, -
e
три неподвижные точки: ( 0,0 ) ,
Первая и третья точки неустойчивы,
вторая — асимптотически устойчива (рис. 5). Популяция жертв стремится к фиксированному значению, а хищники вымирают.
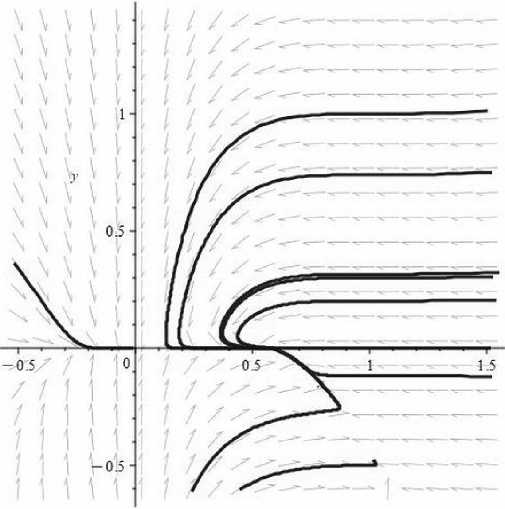
Рис. 5
I 2
6. При a > 1, c > 2 b точка 1, — 2
I e
подвергается бифуркации седло-
узел. Устойчивая ветвь направляется вверх в первую четверть, неустой- чивая — вниз.
Значительная качественная перестройка в системе происходит, когда одновременно присутствует равновесная точка на горизонтальной оси и одна из двух равновесных точек после бифуркации седло-узел переходит в положительную область. Равновесная точка, поднимаясь из отрицательной области в положительную, в определенный момент совпадает с равновесием, лежащим на оси Ox, затем точки вновь расходятся.
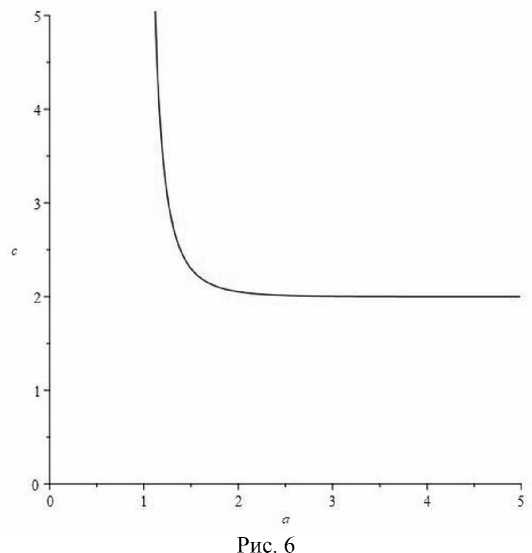
Здесь происходит транскритическая бифуркация и в то же время бифуркация Андронова — Хопфа. При пересечении бифуркационной кривой два равновесия меняются устойчивостями. Точка, лежащая на оси Ox, становится неустойчивой (седло), а точка, пересекающая ось Ox, становится устойчивым фокусом, чтобы вскоре вновь изменить устойчивость на противоположную. В этот момент возникает предельный цикл. Бифуркационная кривая на плоскости aOc задается уравнением c _ LambertW(-ae~a )2 + 2LambertW(-ae~a)a + 2a2
(LambertW (-ae -a) + a) a и имеет следующий вид (рис. 6).
Дальнейшая перестройка приводит к возникновению устойчивого предельного цикла. Фазовый портрет с упомянутыми свойствами представлен на рисунке 7. Значения параметров: a _ 2,5, b _ 1, c _ 2,8.
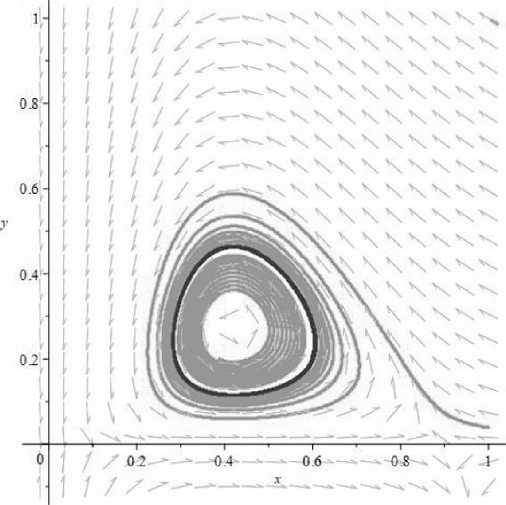
Рис. 7
Устойчивый предельный цикл задает динамику в системе «хищник-жертва», при которой обе популяции сосуществуют.
Заключение
В рассмотренной модели «хищник-жертва» были обнаружены бифуркации седло-узел, транскритическая и Андронова — Хопфа. Имеется область значений параметров, при которых динамика системы сводится к колебаниям плотностей хищников и жертв, то есть к их взаимному сосуществованию. Вне этой области значений популяция хищников вымирает, а популяция жертв иногда может сохраниться. На наш взгляд, слабый эффект Олли здесь проявляется в возможности выживания популяции жертв, несмотря на значительную потерю численности (вариант 6). Если эффект Олли велик, то хищник вымирает, а жертва выживает (варианты 4 и 5).