
Спекл-диагностика высокоскоростных внутриклеточных процессов
Журнал: Российский журнал биомеханики @journal-biomech
Статья в выпуске: 3 т.30, 2026 года.
Бесплатный доступ
Ранее методом динамической спекл-интерферометрии были успешно изучены относительно медленные внутриклеточные процессы, протекающие в течение 10 секунд – нескольких часов. Метод на два порядка по чувствительности и пространственному разрешению превосходит существующие оптические методы определения деформаций газовых, жидких и твердых сред. Целью данной работы являлось изучение указанным методом особенностей процессов, протекающих в течение времени порядка миллисекунд – секунд. Параметром, характеризующим активность клеток, являлось среднеквадратичное отклонение разности оптических путей двух волн, зондирующих клетки на расстоянии 2 мкм. На клеточной линии RD показано, что для числа вводимых кадров, равных 200, при частоте ввода кадров 0,11, 1, 10 и 100 кадров в секунду параметр активности одних и тех же клеток равнялся соответственно 44, 19, 12, 4 нм. Обнаружено, что по мере увеличения скорости регистрации сигналов увеличивается влияние шума, используемого полупроводникового лазерного модуля. Предложен и реализован метод вычленения шума при количественном анализе активности группы клеток. На частоте кадров 1 кГц в клетке обнаружены неактивные участки, а также несколько активных участков, в которых имеются процессы, протекающие с разной скоростью, в том числе импульсные процессы с длительностью порядка 1 мс. Возможным применением результатов исследования является создание метода объективной оперативной оценки предельной концентрации вещества, не вызывающего необратимых явлений в живых клетках.
Короткий адрес: https://sciup.org/146283409
IDS: 146283409 | УДК: 531/534: [57+61] | DOI: 10.15593/RZhBiomeh/2026.3.12
Speckle-diagnostics of high-speed intracellular processes
Previously, relatively slow intracellular processes occurring over a period of 10 seconds to several hours were successfully studied by dynamic speckle interferometry method. This method surpasses existing optical methods for determining deformations in gaseous, liquid, and solid media by two orders of magnitude in terms of sensitivity and spatial resolution. The purpose of this work was to study by this method the features of processes occurring within milliseconds - seconds. The parameter characterizing cell activity was the standard deviation of the difference in the optical paths of two waves probing cells at a distance of 2 μm. Using the RD cell line, it was shown that for a number of input frames equal to 200, at an input frequency of 0.11, 1, 10, and 100 frames per second, the cellular activity parameter of the same cells was equal to 44, 19, 12, and 4 nm, respectively. It was found that as the signal recording rate increases, the noise effect of the semiconductor laser module used increases. A method for noise extraction during quantitative analysis of cell group activity was proposed and implemented. At a frame rate of 1 kHz, inactive regions were detected in the cell, as well as several active regions with processes occurring at different rates, including pulsed processes with a duration of approximately 1 millisecond. A potential application of the research results is the development of a method for objectively and quickly assessing the maximum concentration of a substance that does not cause irreversible effects in living cells.
Текст научной статьи Спекл-диагностика высокоскоростных внутриклеточных процессов
RUSSIAN JOURNAL OF BIOMECHANICS
При освещении когерентным светом шероховатой поверхности или прозрачного объекта через матовое стекло в свободном пространстве и в плоскости изображения объекта возникает в макроскопическом смысле однородное, но в микроскопическом смысле неоднородное распределение интенсивности излучения. Неоднородности, или спеклы случайного размера и яркости, возникают в результате взаимной интерференции многих волн со случайными амплитудами и фазами, распространяющимися от большого числа центров рассеяния. Сразу же после создания лазеров было обнаружено, что при освещении живых объектов картина биоспеклов (спеклов, сформированных биологическими объектами) изменяется во времени [1]. В настоящее время имеется большое число публикаций по биоспеклам, им посвящены монография [2] и обзоры [3; 4], метод контраста лазерных спеклов [5] доведен до практического применения в офтальмологии. С недавними публикациями по применению различных оптических методов изучения внутриклеточных процессов можно ознакомиться в статьях [6–28]. Важное место в области исследования внутриклеточных, а также межклеточных взаимодействий занимает моделирование процессов, происходящих в живых тканях [29; 30]. В статье [31] приведен обзор работ, посвященных математическим моделям многоклеточной ткани живых организмов.
После обнаружения нового механо-оптического эффекта [32] на его основе был разработан новый сдвиговый вариант динамической спекл-интерферометрии (новая ширография), позволяющий изучать внутриклеточные процессы в монослое клеток, культивированных на прозрачной подложке [33]. Суть метода заключается в следующем. Монослой клеток освещается через матовый рассеиватель, поэтому через область диаметром Δ s , равной линейному разрешению линзы, проходят множество волн со случайными амплитудами и фазами. Если в этой области возникнет деформация среды, т.е. линейная зависимость оптических путей волн от координаты, то в точке, сопряженной центру области, возникнет периодическое изменение интенсивности света. Число периодов Δ N и разность оптических путей Δ u двух волн, прошедших на расстоянии Δ s , связаны простым соотношением: Δu = λΔN. Такое изменение интенсивности излучения возникает вследствие интерференции пар волн, прошедших через область, как на расстоянии Δ s , так и на расстояниях, кратных Δ s . Взаимная интерференция других пар волн формирует случайное, практически не изменяющееся во времени значение интенсивности излучения.
Ранее были изучены реакции клеток на изменение температуры [34], на введение в клетки вирусов двух типов [35; 36], и трех химических веществ. С обзором этих исследований можно ознакомиться в главе монографии [37] и в статье [38]. Недостатком проведенных исследований было 1) усреднение данных по толщине клетки и 2) изучение относительно медленных внутриклеточных процессов, протекающих в основном в течение 10 секунд ‒ часов. Для устранения первого недостатка в статье [39] было обосновано создание спекл-томографа функций живой клетки, т.е. устройства, позволяющего послойно определять параметры, характеризующие функционирование клетки во времени. Таковыми параметрами в общем случае являются среднее значение, дисперсия, нормированная временная автокорреляционная функция (время корреляции τm) разности оптических путей Δum двух волн в m-ом слое малого участка клетки размером Δs. Величины Δum являются слагаемыми указанной выше величины Δu. Разработка такого спекл-томографа является предметом наших дальнейших исследований. Настоящая работа посвящена устранению второго недостатка. Целью работы являлось определение вышеуказанных параметров для внутриклеточных процессов, протекающих в течение времени в диапазоне порядка 0,1 миллисекунды ‒ 1 секунды и их сравнение с аналогичными параметрами медленно протекающих процессов.
Методика и техника эксперимента
В статье [39] были получены формулы для среднего по времени цифрового значения интенсивности излучения I в пикселе телекамеры и нормированной временной автокорреляционной функции η( t 1, t 2 ) этой интенсивности. Предполагалось, что величина Δ u равна сумме М независимых случайных величин:
M
A u = ^ A ^ (1) m = 1
Для стационарных по времени процессов Δ u = Δ u ( t ) в отсутствие поступательного перемещения объекта формула для η( t 1 , t 2 ) имеет следующий вид:
M
Z Z - k 2 ( a 2 -а 2 р(т) ) — k 2 П° m "° m p m (т/т m ) ] (2) П ( т ) = e '' = e m = 1 v 7
где т = 1 2 - 1 1 , k = 2п / X - волновое число, ° -среднеквадратичное отклонение величины Δ u , σ m и ρ m (τ / τ m )– соответственно среднеквадратичное отклонение и нормированная временная автокорреляционная функция величины Δ u m , τ m – время корреляции величины Δ u m .
В значение Δu входит показатель преломления среды, который зависит от следующих величин: плотности среды и ее удельной преломляющей способности. В свою очередь, плотность зависит от температуры, следовательно, от поглощенной или выделенной энергии химических реакций. Удельная преломляющая способность среды равна сумме произведений удельных рефракций компонент среды на их относительную концентрацию. Поскольку процессы, связанные с протеканием химических реакций, с изменением состава и концентрации веществ, в клетках проходят с разной скоростью, то зависимость σm(τm) будет характеризовать относительный вклад указанных процессов в активность клеток.
В работе [39] была успешно проверена корректность формулы (2). В эксперименте с монослоем размороженных клеток, изменяя значения σ m и τ m в небольших пределах, теоретическую зависимость η(τ) приближали к экспериментальной. Было получено отличное совпадение теории и эксперимента. Следует отметить, что η в формуле (2) является коэффициентом корреляции случайных значений I , а ее величина, в соответствие с теорией, находится путем усреднения по ансамблю статистически подобных объектов. В качестве объектов такого ансамбля выступают участки клеток с размером, равным линейному размеру разрешения используемого объектива. Для создания такого ансамбля минимальный размер спеклов выбирался равным размеру пикселя используемой телекамеры. В экспериментах величину η определяли как коэффициент корреляции величин I в одном фрагменте спеклового изображения клеток, взятом в начальном и текущем моментах времени.
Из формулы (2) следует, что если время τ превысит время корреляции величины Δu, то величина η выходит на постоянный уровень η*, по значению которого можно определить среднеквадратичное отклонение величины Δu, найденное путем усреднения по большому числу участков размером Δs. В экспериментах величина Δs приблизительно равнялась 2 мкм.
В статье [34] на основе хорошей корреляции между σ и температурой Т было обосновано использование σ в качестве параметра, характеризующего активность группы клеток. В настоящей работе величина σ определялась по большому, насколько это возможно, числу клеток.
Для исключения влияния дрейфа изображения и механических вибраций перед экспериментами проводили контроль стабильности установки: строили зависимости η(t) для пустой кюветы; если величина η за заданное время не опускалась ниже уровня, соответствующего шумам камеры и лазера, установку считали стабильной. Используемая оптическая система располагалась в термостате, в которой поддерживалась температура, равная 34°С. Как было показано нами ранее [34], именно при этой температуре наблюдается максимальная активность большей части монослоя клеток. Оптическая система включала лазерный модуль с длиной волны λ = 0,650 мкм с регулируемой мощностью излучения, микрообъектив для расширения освещающего пучка, матовое стекло, оптическую кювету с помещенной в ней прозрачной подложкой с монослоем клеток, микрообъектив для формирования 8-кратного увеличенного изображения клеток, скоростную камеру типа USB3camera 0_X64 со скоростью регистрации до 3000 кадров в секунду. Более детально с техникой и методикой проведения экспериментов можно ознакомиться в публикациях [33] и [36].
Для проведения исследования по стандартной технологии были подготовлены монослои клеток на прозрачных подложках. Использовались клетки линии RD (получена из злокачественной рабдомиосаркомы таза человека) из Коллекции ФБУН ФНИИВИ «Виром» Роспотребнадзора. Условия культивирования соответствовали паспорту клеточной линии. Перед проведением исследования образцы клеток стабилизировали после декриоконсервации путем проведения трех последовательных пассажей. Так, для RD средой роста являлась Игла МЕМ с добавлением 5% эмбриональной сыворотки. Флаконы с клетками инкубировали в СО 2 -инкубаторе с 5% содержанием углекислого газа и повышенной влажностью при температуре +37 °С. Для регистрации спеклов клетки выращивали на стеклянной подложке размером 7,1 × 23,0 мм (толщина 1,5 мм). Перед выращиванием клеток на стеклянной подложке клетки культивировали и выдерживали в термостате в закрытых флаконах (без фильтра) для подготовки к выращиванию в закрытой атмосфере.
Подготовленную стеклянную подложку помещали в стерильный пенициллиновый флакон, после вносили 3 мл суспензии клеток в концентрации 170–200 тыс. клеток/мл. Культивировали в стандартных условиях до формирования конфлюэнтного монослоя. Далее в стерильных условиях прозрачную подложку с клетками вносили во внутреннюю полость прозрачной кюветы размерами 9 × 25 × 40 мм.
Размер внутренней полости вдоль оптической оси равнялся 3 мм. Затем рядом в полость помещали подложку такого же размера без клеток, осколком стекла обе подложки жестко фиксировали в вертикальном положении, заливали питательный раствор.
Для предотвращения испарения питательной среды кювета была закрыта стеклянной крышкой и герметизирована лабораторной пленкой PARAFILM M . После достижения температуры 34°С с разными скоростями регистрировали кадры спекловых изображений клеток.
Фильмы динамики спеклов были зарегистрированы со следующими временами экспозиции кадров: 0,25 мс, 1 мс, 10 мс, 100 мс, 1 с и 9 с. Число записываемых кадров с заданной частотой ‒ от сотен до нескольких тысяч.
a б
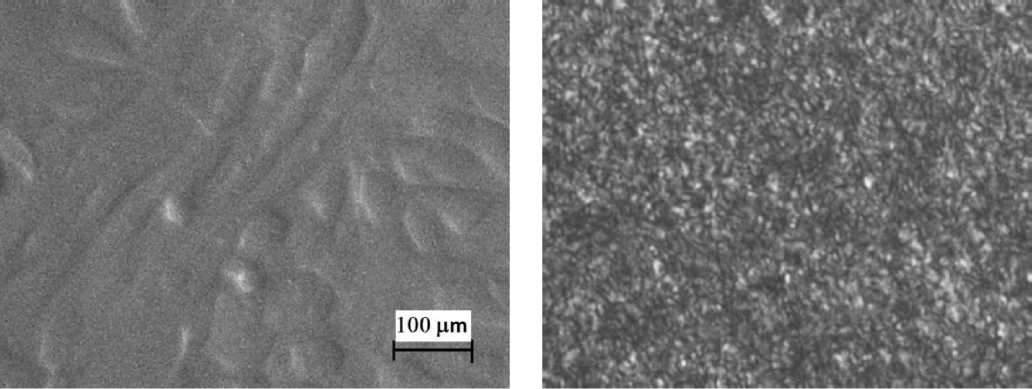
Рис. 1. Фрагмент изображения монослоя клеток RD : а ‒ в белом свете, б ‒ в свете лазера
Результаты
На рис. 1, а приведен типичный фрагмент изображения в белом свете монослоя клеток RD в питательном растворе, а на рис. 1, б – тот же фрагмент при освещении лазерным излучением. По фильмам спекловых изображений, зарегистрированных с разной с частотой кадров, с использованием оригинального программного обеспечения были получены зависимости η(τ). Технические характеристики использованной телекамеры не позволяли при разной частоте кадров регистрировать кадры максимальных размеров. Потому при разных скоростях ввода кадров значения η вычисляли по фрагментам спекловых изображений разных размеров. В частности, при частоте ввода кадров порядка 1 кадра в секунду в поле зрения могли находиться порядка 1000 клеток, при частоте 100 кадров/с – десятки клеток, а при частоте 1000 кадров в секунду – одна небольшая клетка. При максимальной частоте, равной 3000 кадров в секунду, могли наблюдать фрагменты размером в 1/3 размера клетки. При временах экспозиции 9 с, 1 с, 0,1 с и 0,01 с, для клеток в растворе область усреднения содержала изображения одних и тех же клеток и равнялась 480 × 640 пикселям. Для раствора без клеток область усреднения также равнялась 480 × 640 пикселям.
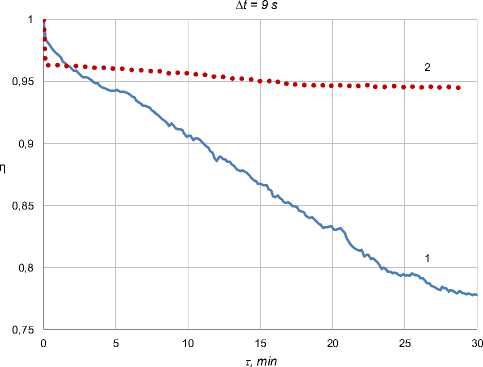
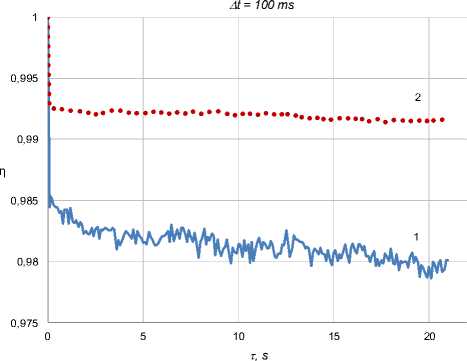
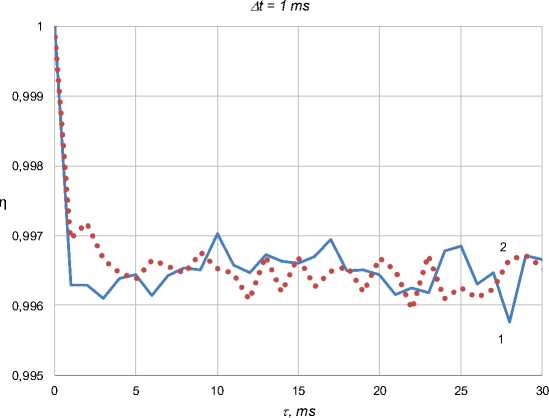
На рис. 2 приведены типичные совмещенные зависимости η(τ) для питательного раствора (кривые 2) и клеток в растворе (кривые 1), построенные по кадрам, зарегистрированным с разной частотой кадров.
Из теории, а также из опыта авторов данной статьи следует, что чем ниже значения η для клеток и чем больше разница между значениями η для раствора и клеток в растворе, тем выше активность клеток. Анализ всех полученных графиков показал, что 1) в условиях настоящего эксперимента, чем выше частота кадров, тем при равных числах кадров активность клеток ниже, 2) на всех графиках имеется скачок значения η в начале координат, относительная доля этого скачка увеличивается по мере роста частоты вводимых кадров.
На рис. 2, в значения η для клеток в растворе и для раствора имеют близкие значения, хотя в конце опыта проглядывается некоторое различие в кривых. Для прояснения ситуации были проанализированы распределения величины η в выбранном фрагменте при разных значениях τ . Для этого изображение клетки размером 64 × 64 пикселов было разбито на участки, на которых определялись значения η. Анализ распределений показал, что в разных участках клетки периодически возникают процессы, уменьшающие η со значения, близкого к единице, вплоть до 0,3. Затем через некоторое время величина η вновь увеличивается до первоначального значения. По-видимому, эти флуктуации η в итоге проявляются на кривой 1, показанной на рис. 2, в . На рис. 3 для иллюстрации вышесказанного приведено типичное распределение η в плоскости изображения клетки для некоторого значения τ. На рис. 4 приведены две зависимости η(τ), соответствующие центру наиболее активной области (кривая 1) и неактивной области (кривая 2) клетки. Значение η находили по фрагментам 5 × 5 пикселей. Качественный анализ кривой 1 показал, что в области одновременно протекают несколько процессов, протекающих с разной скоростью. Так, имеется процесс со временем релаксации величины Δ u порядка 1000 мс, наблюдаются процессы, протекающие в течение времени примерно 300, 40 и 1 мс. Анализ распределений величины η зависимости η(τ) показал, что визуально наблюдаемые периодические изменения величины η совпадают с появлением и исчезновением импульсов длительностью около одной миллисекунды и величиной η до 0,35. Наличие таких импульсов, по-видимому, указывает на существование достаточно активных более быстрых процессов. Отметим, что 1) флуктуации величины η на
а б
в
Рис. 2. Совмещенные зависимости п ( т ) для клеток в растворе (1) и для раствора (2).
Частота кадров: а – 0,11 Гц, б – 10 Гц, в – 1000 Гц
Таблица 1
Таблица значений о m и т m
занимает промежуточное положение между кривыми 1 и 2. Пока неясно, какова воспроизводимость полученных данных на клетках этой и других линий,
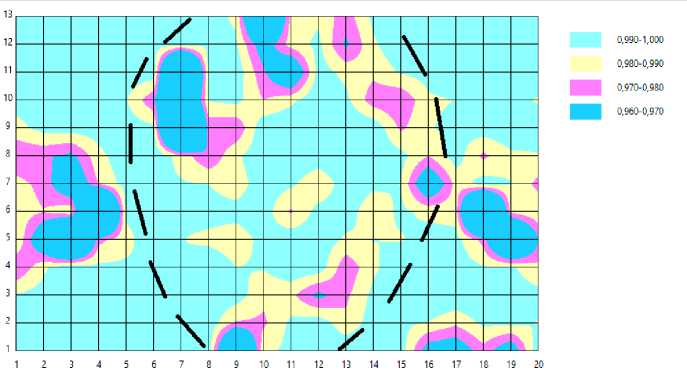
Рис. 3. Распределение величины η в плоскости изображения клеток. Примерная граница клетки обозначена пунктирной линией
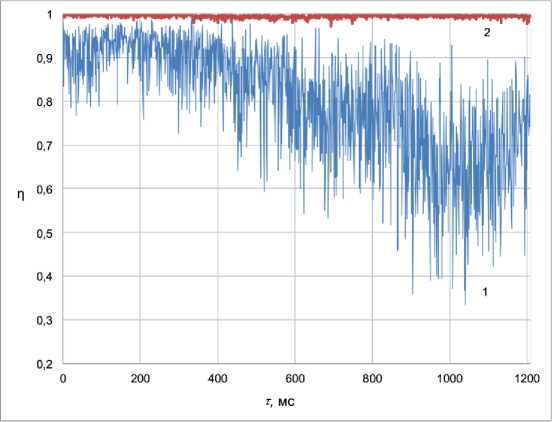
Рис. 4. Зависимости η для центра наиболее активной области (кривая 1) и неактивной области (кривая 2) клетки, показанной на рис. 3
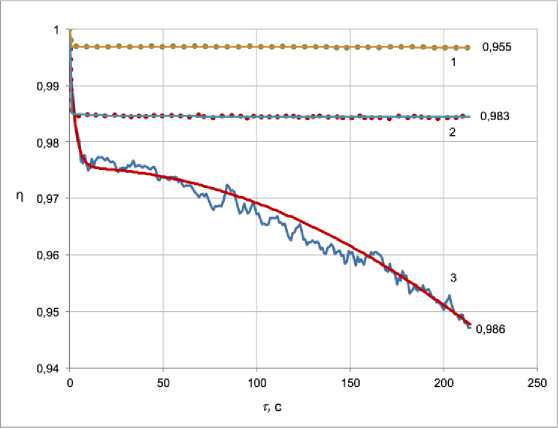
Рис. 5. Совмещенные теоретические и экспериментальные кривые η(τ) для шума лазера и камеры (1), для питательного раствора (2) и для клеток в растворе (3). Рядом с кривыми приведены коэффициенты корреляции массивов теоретических и экспериментальных данных. Для кривой (3) среднеквадратичное отклонение и какова природа этих импульсов.
Было предположено, что наблюдаемые на рис. 2 скачки величины η в начале координат функций η(τ) связаны не с внутриклеточными процессами, а с шумами лазера. Для проверки данного предположения с частотой 1 Гц были зарегистрированы спекловые изображения кюветы без питательного раствора с расположенной внутри кюветы чистой прозрачной подложкой. На рис. 5 приведены кривые η(τ) для пустой кюветы (т.е. в отсутствие раствора и клеток ‒ кривая 1), для питательного раствора (кривая 2) и клеток в растворе (кривая 3). Одновременно были построены и показаны на рисунке теоретические кривые η(τ) для всех трех процессов. Рядом с кривыми помещены коэффициенты корреляции массивов теоретических и экспериментальных данных. Видно очень хорошее совпадение теоретических и экспериментальных данных. Теоретические кривые были построены по изложенной выше методике ‒ путем подбора значений σ m и τ m выбирали либо лоренцевые, либо гауссовы функции ρ m (τ / τ m ). Критерием хорошего приближения служило достижение коэффициента корреляции между теоретическими и экспериментальными массивами более 0,9, что соответствует относительной погрешности определения σ порядка 1%. Значения σ m и τ m приведены в таблице 1. В таблице функция Лоренца – это функция exp (-τ / τ m ), функция Гаусса – exp [-(τ / τ m )2]. Из таблицы 1 следует, что пик в начале координат связан с флуктуациями лазерного излучения со временем корреляции τ m , равном 0,2 секундам, и среднеквадратичным отклонением σ m величины Δu m , равном 5,8 нм.
Удаляя из формул для теоретических кривых значения σ m и τ m , соответствующих шумам лазера и, вероятно, камеры, были построены теоретические кривые η ( t ) только для питательного раствора и клеток в растворе. Кривые плавно начинались с точки (0,1), при увеличении τ выходили на постоянные уровни η*, соответственно равные 0,9990890 и 0,515467. Эти уровни находили по не изменению в значениях η пятого и шестого знаков после запятой при увеличении τ. По значениям постоянных уровней η* по формуле σ2 = -ln(η*) ‧ (λ / 2π)2 были найдены значения дисперсий σ 2 = 7099,2 нм2 и σ 2 = 9,8 нм2 величины Δu соответственно для клеток в растворе и для раствора. Далее, в качестве модельного допущения полагая, что процессы в клетке и в питательном растворе не коррелированы, по формуле σ = ( σ 2 - σ 2 )находили значение параметра, равного 84 нм, характеризующего активность группы клеток.
По графикам зависимостей η(τ) для клеток в растворе и для раствора, приведенных на рис. 2, а – 2 в, а также на рис. 5, для числа кадров, равного 200, по формуле (2) были определены значения о 2 =o2 (1 -р(т)). Затем по формуле с, = ^21 -с22 , где σ2 – значение σ2 для клеток в растворе, σ2 – значение σ2 для раствора, были получены значения σ2 только для клеток. Величину σ также можно рассматривать в качестве параметра, характеризующего активность клеток. Различие между величинами σ и σ заключается в том, что в значение последней вносят вклад наиболее быстрые процессы, времена релаксации τm которых не превышают значение 200/f, где f – частота записи кадров спекловых изображений. Для частот 0,11; 1; 10; 100 Гц рассчитанные значения σ соответственно равны 44,71; 19,13; 11,88; 3,74 нм, что означает уменьшение вышеуказанной активности клеток в процессах, зарегистрированных с разной частотой кадров.
Для демонстрации выхода теоретических зависимостей τm на постоянный уровень на рис. 6 приведены совмещенные экспериментальные и теоретические кривые по данным, полученным с частотой кадров 10 Гц. Кривые (5) и (6) получены путем удаления из теоретической зависимости значений σm и τm, соотвествующих шумам лазера и камеры.
На рис. 7 приведены зависимости σ и σ от частоты вводимых кадров f в диапазоне от 0,1 до 1 кГц. Из приведенных кривых следует, что параметры σ и σ , характеризующие соотвественно суммарную активность клеток и активность наиболее быстрых процессов, с увеличением натурального логарифма частоты f уменьшаются по экспоненте.
Обсуждение
Таким образом, с использованием высокоскоростной камеры методом динамической спекл-интерферометрии исследованы внутриклеточные процессы, протекающие в монослое клеток линии RD в течение времени порядка 10 секунд, 1 секунды, 100, 10 и 1 миллисекунды.
Показано, что значение параметра σ , характеризующего активность клеток, найденного для одних и тех же клеток и для одинакового числа кадров, по мере увеличения частоты кадров уменьшается. Внутри отдельной клетки в ее небольших участках выявлена периодически возникающая активность процессов, протекающих в течение времени порядка 1 мс. Природа этих флуктуаций и их связь с конкретными биофизическими процессами требует дальнейших исследований. Выявленные временные компоненты пока не могут быть однозначно сопоставлены с конкретными внутриклеточными механизмами без привлечения дополнительных методов, однако могут быть связаны с различными классами быстрых клеточных процессов. Пока не ясно, в каких слоях клеток протекают те или иные процессы. Для внесения ясности в данную проблему необходимо использовать спекл-томограф функций живой клетки, предложенный в статье [39]. Для этого необходимо изготовить оптический элемент, позволяющий на одном кадре регистрировать большое число изображения одной клетки под разными ракурсами наблюдения. В публикации [40] проведен расчет такого оптического элемента.
Показано также, что по мере увеличения временного разрешения увеличивается вклад шума, вносимого в основном используемым полупроводниковым лазером. Предложен метод вычленения вклада шума при количественном анализе активности группы клеток.
Отмечено, что при определении по предложенной методике параметра σ, характеризующего активность клеток, происходит автоматическое устранение шума лазера и камеры. Новый предложенный метод вычленения шума лазера может быть полезным для других приложений.
Приведены конкретные значения величины σ. Выше показано, что на интервале 200 с для группы из 50 клеток значение σ при величине Δ s , равном 2 мкм, равно 84 нм.
Показано также, что вклад в эту активность в основном вносят два процесса, со значениями σ1 и σ2, равными 15 и 83 нм, и временами корреляции величин Δu1 и Δu2,
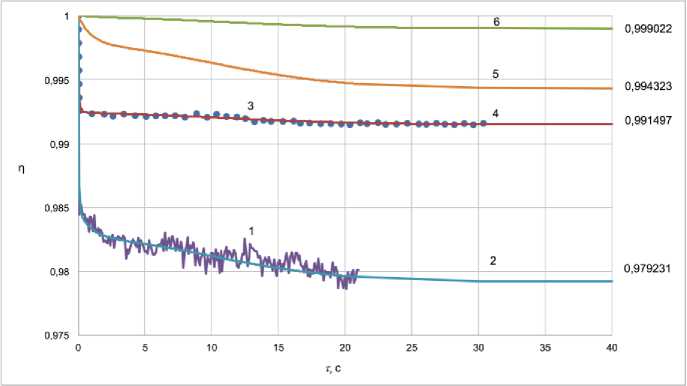
Рис. 6. Совмещенные экспериментальные и теоретические кривые σ m , соответственно, для клеток в растворе с шумами лазера и камеры (1 и 2), для питательного раствора (3 и 4), теоретическая кривая для клеток в растворе без шумов лазера и камеры (5), теоретическая кривая для питательного раствора без шумов лазера и камеры (6). Рядом с кривыми приведены значения постоянных уровней η *
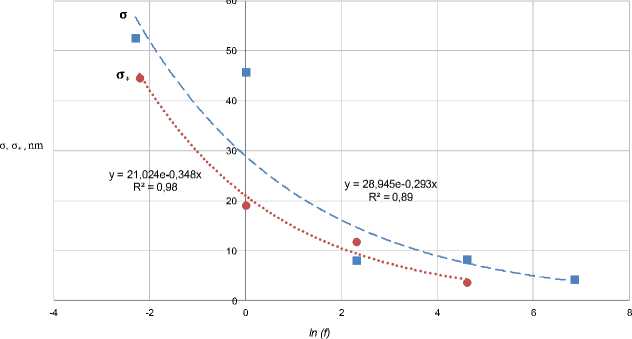
Рис. 7. Зависимости σ и σ * от частоты вводимых кадров f с экспоненциальными линиями тренда. Рядом с кривыми приведены уравнение линии тренда и величина достоверности аппроксимации
равными 3 и 1000 с соответственно.
Заключение
Рассмотренный метод количественного анализа активности группы клеток может быть использован на практике для оперативной объективной оценки предельно допустимой концентрации разных веществ в живых клетках [41, 42]. Действительно, определяя величину σ до и после введения вещества в питательный раствор, а также после замены питательного раствора, можно определить концентрацию вещества, не вызывающего необратимые изменения в клетках. Однако требуется оценка воспроизводимости результатов эксперимента, что является направлением дальнейших исследований. Планируется изучить воспроизводимость результатов для миллисекундных процессов на различных клеточных линиях, а также провести спектральный анализ шумов лазера при частотах до 40 кГц. Для идентификации конкретных биофизических процессов, соответствующих выявленным временным корреляциям, будут использованы фармакологические ингибиторы, блокирующие конкретные процессы.
Представленные в данной статье результаты пробных экспериментов являются начальным этапом дальнейших исследований ‒ изучения реакций клеток на введение токсических (химических) веществ и заражение вирусом. Будет изучена воспроизводимость экспериментов при разных скоростях ввода кадров. Будут определены параметры, количественно характеризующие активность группы клеток, а также малых участков (2 мкм) в отдельно взятой клетке в норме и при вводе в питательный раствор разных концентраций химических веществ и найдены предельно допустимые концентрации токсических веществ, не вызывающие необратимые изменения в клетке. Создание физических моделей функционирования клеток в норме и при внешних воздействиях позволило бы выявить тонкие механизмы развития инфекции в клетках и разработать методики для персонифицированного подхода в медицине.
На основе проведенного исследования можно сделать следующие выводы:
-
1. Впервые новая ширография использована для изучения процессов, протекающих в монослое живых клеток в течение времени порядка 100, 10 и 1 мс;
-
2. Показано, что значение параметра, характеризующего активность группы клеток, найденного при одинаковом числе введенных кадров, уменьшается по мере увеличения скорости записи кадров;
-
3. Чем выше скорость записи спекловых изображений клеток, тем большее влияние шума используемого лазера на регистрируемые цифровые значения интенсивности излучения. Предложен и продемонстрирован метод вычленения шума при количественном анализе активности группы клеток;
-
4. Показано, что в отдельно взятой клетке имеются малые участки, в которых периодически возникают и исчезают процессы, протекающие в течение времени порядка 1 мс. Природа этих процессов требует дальнейшего изучения;
-
5. Перспективным практическим применением метода может быть объективное оперативное определение концентрации веществ, не вызывающих необратимые изменения в клетках, однако это требует отдельной экспериментальной валидации.
