
Верхний второй моляр из Ахштырской пещеры и направления популяционных связей среднепалеолитического населения Кавказа

Журнал: Археология, этнография и антропология Евразии @journal-aeae-ru
Рубрика: Антропология и палеогенетика
Статья в выпуске: 2 т.53, 2025 года.
Бесплатный доступ
Ахштырская пещерная стоянка находится на Северо-Западном Кавказе и датируется преимущественно среднепалеолитическим временем. В 1961 г. при обработке фаунистической коллекции из слоя 3а был обнаружен постоянный верхний второй моляр Homo (AKH 1), первоначально определенный как принадлежащий Homo sapiens fossilis. В данной статье приводятся новые результаты изучения данной находки. Они получены на основании анализа внешней и внутренней морфологии AKH 1, объема эмали и дентина латерального отдела его коронки и сопоставления одонтоскопических и одонтометрических характеристик моляра с таковыми зубов денисовцев, H. ergaster/erectus/georgicus, H. erectus, H. antecessor, H. neanderthalensis, H. sapiens, среднеплейстоценовых Homo Европы и среднеи позднеплейстоценовых Homo Китая, отличающихся от H. erectus. На первом этапе анализа неметрические признаки сопоставлялись методом главных компонент. На втором полученные координаты всех образцов и их метрические характеристики были интегрированы при помощи анализа главных компонент с использованием группирующей переменной. Проведенные исследования показали, что моляр с Ахштырской стоянки определенно не принадлежит H. sapiens и характеризуется очень архаичной морфологией. Специфика внешней морфологии объединяет его с китайскими находками преимущественно среднеплейстоценового времени. Объем латерального дентина отличает АКН 1 от моляров европейских плейстоценовых Homo и H. sapiens, сдвигая его в сторону денисовцев. Вероятнее всего, находка с Ахштырской стоянки относится к архаичной эволюционной линии, одонтологические образцы которой до настоящего времени могли быть не представлены на территории Европы. На данный момент можно предполагать ее азиатское происхождение.
Короткий адрес: https://sciup.org/145147507
IDS: 145147507 | УДК: 572.77 | DOI: 10.17746/1563-0102.2025.53.2.134-143
An Upper Second Molar from Akhshtyrskaya Cave and Population Affinities of the Middle Paleolithic Hominins of the Caucasus
The Akhshtyrskaya cave site in northwestern Caucasus dates mostly to the Middle Paleolithic. In 1961, during the analysis of faunal assemblage from layer 3a, a permanent upper second molar of Homo (AKH 1) was discovered. Initially, it was attributed to fossil Homo sapiens. Here, we present new fi ndings related to this specimen, specifi cally to its external and internal morphology, amount of enamel and dentine in the lateral part of its crown, and a comparison of metric and nonmetric characteristics with those of Denisovans, H. ergaster/erectus/ georgicus, H. erectus, H. antecessor, H. neanderthalensis, H. sapiens, Middle Pleistocene Homo of Europe, and Middle and Late Pleistocene Homo of China, distinct from H. erectus. At the fi rst stage, frequencies of nonmetric traits were subjected to principal component analysis. At the second stage, obtained PCA scores were integrated with measurements of the same specimens using PC analysis with grouping variable. Results suggest that the molar from Akhshtyrskaya by no means belongs to H. sapiens. Its morphology is very archaic, linking it to mostly Middle Pleistocene hominin teeth from China. The volume of lateral dentine opposes AKH 1 to molars of Late Pleistocene Homo of Europe and those of H. sapiens, revealing a shift toward Denisovans. The specimen likely belongs to an evolutionary line that has thus far not been found in Europe. Probably, it is of Asian origin.
Текст научной статьи Верхний второй моляр из Ахштырской пещеры и направления популяционных связей среднепалеолитического населения Кавказа
Кавказский регион с древнейших времен играл роль одного из форпостов заселения человеком Евразии и на протяжении всей человеческой истории являлся коридором, соединяющим Европу, Ближний Восток и Центральную Азию [Любин, 1997, с. 11; Ghasidian et al., 2023]. Положение Кавказа на пересечении нескольких миграционных путей создавало условия для потенциального смешения различных групп древних гомининов. Одновременно сложная структура горных ландшафтов являлась и до сих пор является естественным фактором, обусловливающим периодическое формирование природных рефугиумов, изолирующих отдельные популяции. Теоретически это делает Кавказ идеальным регионом для изучения различных моделей популяционных процессов и факторов накопления эволюционных различий. Тем не менее популяционные связи населения ранне- и среднепалеолитического времени здесь исследованы относительно слабо по причине малого количества палеоантропологических материалов и хронологической ограниченности возможностей применения палеогенетических методов. Антропологические работы, в которых обсуждались находки с Кавказа, по большей части были посвящены определению их видовой принадлежности [Габуния, Тушабрамишвили, Векуа, 1977; Габуния, Векуа, Лордкипанидзе, 2001; Пещера..., 2006, с. 52–53; Hajdinjak et al., 2018; King et al., 2016; Pinhasi et al., 2012; Martinón-Torres et al., 2008]. Геномные данные, позволившие изучить не только таксономический статус, но и популяционную историю, были получены только для неандертальцев из Мезмайской пещеры на Северо-Западном Кавказе [Hajdinjak et al., 2018].
Наша статья посвящена результатам изучения верхнего моляра Homo (далее – AKH 1), обнаруженного в материалах Ахштырской пещерной стоянки на Севе- ро-Западном Кавказе (43°31´ с.ш., 39°59´ в.д.) [Кулаков, Барышников, Левковская, 2007]. Еще в 1960-х гг. была предпринята попытка определить, принадлежал ли он неандертальцу или H. sapiens, но имевшиеся на тот момент методы одонтологического анализа не позволяли однозначно решить этот вопрос. Был сделан вывод о принадлежности зуба ископаемому человеку современного вида Homo sapiens fossilis [Векилова, Зубов, 1972, с. 62]. Однако ряд проведенных нами исследований [Зубова, Моисеев, Хартанович, 2017; Зубова и др., 2018] дал основания усомниться в этом определении. Здесь мы приводим результаты детального анализа внешней и внутренней морфологии AKH 1, а также ее сопоставления с одонтологическими характеристиками различных групп средне- и позднеплейстоценового населения Евразии.
Материалы и методы
Археологический контекст находки. Ахштырская стоянка находится в Адлерском р-не г. Сочи, в Большой Казачебродской пещере, расположенной на правом берегу р. Мзымта (рис. 1). Эта карстовая полость относится к «коррозионно-эрозионным пещерам – по-норам», имеет два входа: южный на высоте 100–102 м над уровнем реки и восточный на высоте 95–97 м. Общая протяженность пещеры более 150 м, ширина от 7 м в устьевой части до 2 м в самых узких местах коридоров. Мощность отложений плейстоценового возраста достигает более 3 м [Кулаков, 2015].
Стоянка была открыта в 1936 г. С.Н. Замятниным и М.З. Паничкиной, раскапывалась ими в 1937–1938 гг., Е.А. Векиловой и М.З. Паничкиной в 1961 г. [Замятнин, 1961, с. 104–117; Векилова и др., 1978]. В 1996–2008 гг. ее изучение было возобновлено Причерноморской экспедицией Института истории материальной культуры
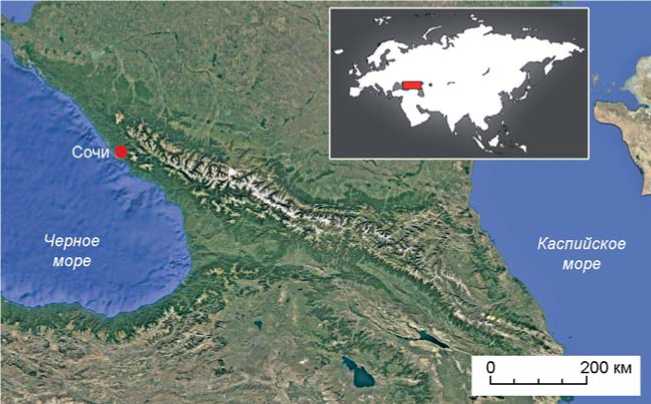
Рис. 1. Расположение Ахштырской пещерной стоянки.
РАН. В стратиграфии памятника выделяются девять слоев. Самые нижние 7–9 в археологическом отношении стерильны. Слои 3–6 содержат среднепалеолитические каменные индустрии. Слой 3 в верхней части (3/1) смешанный, представлен находками среднего и верхнего палеолита [Кулаков, 2005]. Именно при разборке фаунистических коллекций из этого слоя (3а по старой номенклатуре) был найден моляр AKH 1. Для слоя имеется дата 35 000 ± 2 000 л.н. [Чердынцев и др., 1965], но ее происхождение вызывает сомнения.
Моляр AKH 1 (рис. 2). Постоянный верхний правый второй моляр взрослого индивида имеет хорошую сохранность, посмертные повреждения на эмали положение основных межбугорковых фиссур, число и форма корней. Также был измерен мезио-дисталь-ный и вестибуло-лингвальный диаметры коронки. Определить другие признаки невозможно из-за стертости эмали.
При помощи компьютерной микротомографии была выполнена реконструкция эмалево-дентинной границы (ЭДГ). На ней определялось наличие или отсутствие передней и задней ямок, плагиокристы, эпикристы, С5, постпараконулюса, дополнительных мезиальных бугорков, бугорка Карабелли, центрального сдвига и наклона вершин дентиновых рогов у основных бугорков коронки и особенности одонтоглифического узора. Также были произведены измерения объемов эмали и дентина латеральной части коронки. Они выполнялись по стандартному протоколу [Olejniczak, 2006, p. 125–128; Martín-Francés et al., 2018, p. 3, 7] между плоскостью шейки и параллельной ей плоскостью, проведенной через самую нижнюю точку окклюзальной эмали. Все измерения осуществлялись в программе CTAn (Bruker-micro CT).
Томография выполнялась на базе ресурсного центра «Рентгенодифракционные методы исследования» Санкт-Петербургского государственного университета на рентгеновском микротомографе NEOSCAN 80
коронки незначительны, прижизненная стертость соответствует баллу 4 по шкале С. Молнара [Molnar, 1971]. Вестибулярные корни были сломаны и подверглись реставрации в 1960-х гг. Утрачен только небольшой фрагмент эмали в районе шейки, в месте откола корня. Внешний рельеф эмали стерт, но можно определить положение основных фиссур и наличие нескольких дополнительных бороздок, заходящих на поверхность косого гребня в районе центральной ямки.
Методы. Обследование внешней морфологии AKH 1 выполнялось по стандартным протоколам [Зубов, 2006; Turner, Nichol, Scott, 1991; Bailey, 2002; Martinón-Torres et al., 2012]. Учитывались количество основных бугорков, относительные размеры и форма метаконуса и гипоконуса, наличие или отсутствие парастиля,
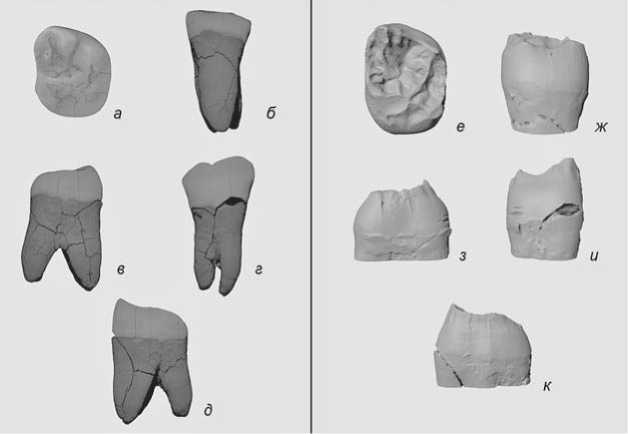
Рис. 2. 3D-модель моляра AKH 1, построенная по результатам компьютерной микротомографии.
а–д – внешняя морфология; е–к – внутренняя. а , е – окклюзальная норма; б , ж – лингвальная; в , з – дистальная; г , и – вестибулярная; д , к – мезиальная норма.
при напряжении на трубке 101 кВ и силе тока 40 мкА с алюминиевым фильтром. Шаг вращения 0,25°, спиральное сканирование, усреднение по четырем кадрам; разрешение 6 мкм/пиксель. Реконструкция данных проводилась при помощи программного обеспечения NRecon (Bruker-microCT). В программе CTAn (Bruker-microCT) была построена цифровая 3D-модель, на которой произведено виртуальное разделение дентина и эмали. Визуализация модели проводилась в программе CTvox (Bruker-microCT).
Морфологические характеристики АКН 1 были сопоставлены с таковыми верхних вторых моляров денисовцев (DEN), Homo ergaster/erectus/georgicus (HE/E) из Дманиси, H. erectus (HE), H. antecessor (HA), H. neanderthalensis (NEA), ранних и поздних H. sapiens (HS), среднеплейстоценовых Homo Европы (EMPH), средне- и позднеплейстоценовых Homo Китая, отличающихся от H. erectus (EAMLPH), и находкой МС 8 со стоянки Манот, для которой допускается гибридное происхождение.
Для сопоставления объемов эмали и дентина использовался метод ящичных диаграмм, отражающих средние значения и пределы вариаций (стандартное отклонение, стандартная ошибка средней) для каждого признака.
Для неметрических данных сопоставление выполнялось на основе индивидуальных характери- стик каждой находки методом главных компонент в программе Statistica for Windows, 8.0 (вкладка «Multivariate Exploratory Techniques»). В качестве базовых признаков использовалось наличие или отсутствие трапециевидной формы коронки, бугорка Карабелли (баллы 2–5), дополнительного дистального бугорка, редукции гипоконуса (баллы 3, 3+), задней ямки, парастиля, эпикристы, плагиокристы, одон-тоглифических борозд третьего порядка. Наличие или отсутствие признака было выражено в бинарной форме.
Для реконструкции положения ахштырского моляра на основании одновременно неметрических характеристик и размеров коронки был проведен интеграционный анализ на базе обеих систем признаков. Он выполнялся также методом главных компонент, но в качестве основных признаков использовались индивидуальные координаты сравниваемых образцов по четырем первым ГК, полученные при одонтоско-пическом анализе главных компонент (см. выше), мезио-дистальные и вестибуло-лингвальные диаметры их коронок. Анализ (Statistica 8.0, вкладка «PLS/PCA Multivariate/Batch SPC») выполнялся с использованием группирующей переменной, в качестве которой выступала принадлежность к одной из классификационных групп (табл. 1). Для моляра AKH 1 указана индивидуальная маркировка.
Таблица 1. Верхние вторые моляры, привлеченные для сравнительного анализа по разным системам признаков
|
Группа |
Находки |
Источник данных |
|
H. ergaster/erectus/georgicus |
Дманиси (2700, 2282) |
[Martinón-Torres et al., 2008; Габуния, Векуа, Лордкипанидзе, 2001] |
|
Homo antecessor |
Атапуэрка, Гран-Долина (TD6 12, TD6 69) |
[Bermúdez de Castro et al., 1999; Martín-Fran-cés et al., 2018] |
|
Homo erectus |
Чжоукоудянь (40, 41); Июань, Хесянь (PA 833, PA 837) |
[Weidenreich, 1937; Xing et al., 2015, 2016] |
|
Азиатские средне- и позднеплейстоценовые Homo |
Хуалундун 6, Чаосянь, Сюйцзяяо (PA 11480-6), Дюшань 1 |
[Bailey, Liu, 2010; Liao et al., 2019; Wu et al., 2019; Xing et al., 2015] |
|
Европейские среднеплейстоценовые Homo |
Атапуэрка, Сима-де-лос-Уэсос (SH) (AT-46, AT-960, AT-824, AT-2179, AT-407, AT-4319, AT-12, AT-2175, AT-815, AT-588, AT-817, AT-821, AT-15, AT-170), Визольяно (Vis 3), Биаш-Сен-Вааст |
[Martinón-Torres et al., 2012; Martín-Francés et al., 2018, 2020, 2022; Zanolli et al., 2018] |
|
Неандертальцы |
Рожок I, Чагырская пещера (CH1141, CH10, CH57), Леука, Ле Мустье, Мула-Герси (M-G2-117 M-F3-215), Крапина (F/H MX M, KRD98, D96, D165, D166, D169), Стайния (S5000) |
[Benazzi, Bailey, Mallegni, 2013; Hlusko et al., 2013; Martín-Francés et al., 2018; Picin et al., 2020; Zubova et al., 2022] |
|
Денисовцы |
Денисова пещера (Денисова 4, 8), Харбин |
[Зубова, Чикишева, Шуньков, 2017; Ni et al., 2021] |
|
Homo sapiens |
Даосянь (PA 1554, PA 1556, PA 1587, PA 1592), Кафзех 11, Сунгирь 2, 3, Костенки 18, Черепаха 13 (МАЭ НВФ 95-2, 95-18, 95-22, 95-27), близкие к современности папуасы (МАЭ 212-11, 20), Боско-Понтини 5, 6, 9, Пигорини |
[Громов, Зубова, Моисеев, 2017; Халдеева, Харламова, Зубов, 2010; Liu et al., 2015; Martín-Francés et al., 2018; Zubova et al., 2022]. Неопубликованные данные А.В. Зубовой и В.Г. Моисеева |
|
Находки с неопределенным статусом |
Манот, МС 8 |
[Sarig et al., 2021] |
Результаты
Морфологическая характеристика AKH 1. Коронка зуба (рис. 2) имеет крупные размеры (мезио-дис-тальный диаметр 11,2 мм, вестибуло-лингвальный – 13 мм), трапециевидную форму, скошенный за счет редукции метаконуса вестибулярный край и умеренно редуцированный гипоконус (4-). На внешней поверхности эмали присутствуют задняя ямка, глубокая фиссура, разделяющая метаконус и параконус, и несколько мелких поперечных бороздок, заходящих на поверхность непрерывного косого гребня.
На ЭДГ мезиальный и дистальный краевые гребни пролегают практически по ребрам коронки, выступание базального отдела за их пределы незначительно. Гипоконус соединяется непрерывными гребнями с протоконусом и метаконусом. Межбугорковые борозды не пересекают краевые гребни. На дистальном краевом гребне присутствуют небольшие выступы дентина, маркирующие наличие двух дополнительных бугорков (С5). От мезиального краевого гребня в направлении центральной ямки отходят два дентиновых сегмента, маркирующие наличие дополнительных мезиальных бугорков. Гребень эпикриста прерван межбугорковой фиссурой.
На протоконусе отмечен бугорок Карабелли размером более балла 2, точнее определить невозможно из-за стертости. В дистальном отделе наблюдается глубокий треугольный бассейн талона. Протоконус и метаконус соединяются непрерывным косым гребнем. Вершина дентинового рога метаконуса несколько наклонена внутрь, для остальных бугорков степень наклона вершин установить невозможно из-за стертости. На параконусе присутствует постпараконулюс. Одонтоглифический узор у АКH 1 специфичен. Все борозды очень глубокие. Бугорковые фиссуры формируют вокруг себя небольшие бассейны на ЭДГ, расширяющиеся по мере удаления от межбугорковых борозд. До настоящего времени такая морфология была зафиксирована только у H. erectus Китая [Bermudez de Castro et al., 2021, tab. 4, fig. 11].
Пропорции эмали и дентина. Объемы эмали и дентина латеральной части коронки у AKH 1 можно было сравнить только с ограниченным числом серий (рис. 3). Объем эмали у него средний для эпохи среднего палеолита и попадает в зону трансгрессии между суммарной серией неандертальцев и среднеплейстоценовыми Homo из Атапуэрки SH, отличаясь в большую сторону от H. sapiens и в меньшую – от де-нисовцев. Объем дентина повышен, выделяет АКН 1 из всех европейских серий, резко отличает его от H. sapiens и сдвигает в сторону денисовцев.
Результаты анализа главных компонент. Результаты первого этапа анализа показали, что индивидуальные неметрические характеристики верхних вторых моляров эффективно дифференцируют почти все таксономические группы, привлеченные для сравнения с AKH 1 (рис. 4). Исключение составляют EMPH, которые демонстрируют исключительно широкую вариабельность. По ГК 1 они трансгрессируют с неандертальцами, EAMLPH, H. antecessor и в наибольшей степени с H. sapiens . Последнее происходит за счет присутствия в этой выборке значительного числа индивидов с редуцированным
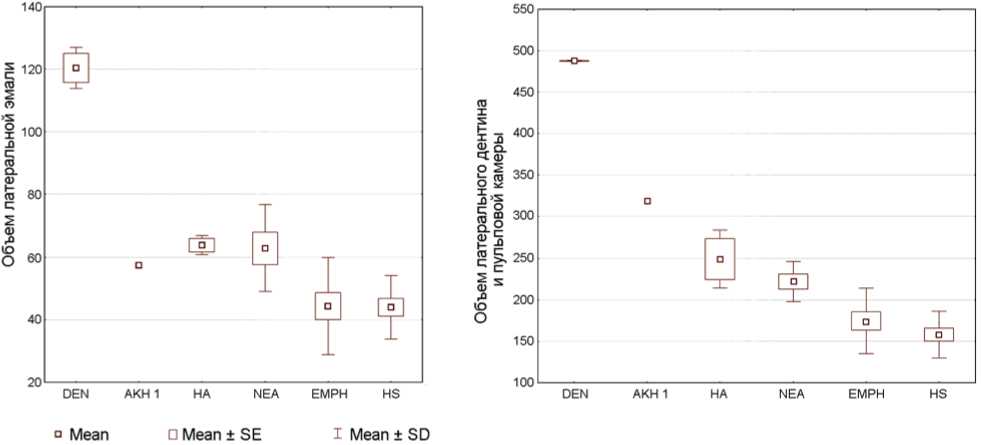
Рис. 3. Объем эмали и дентина AKH 1 и в привлеченных для сравнения сериях.
DEN – денисовцы; HA – Homo antecessor ; NEA – неандертальцы; EMPH – европейские среднеплейстоценовые Homo ; HS – H. sapiens .
гипоконусом (табл. 2). Авторы публикации оригинальных данных из Атапуэрки SH считают существенную редукцию в серии гомопластическим явлением, не указывающим на возможное родство с непосредственными предками H. sapiens [Arsuaga et al., 2014]. Однако наличие такой гомоплазии только в одной группе из всех привлеченных для анализа заставляет задуматься об альтернативных точках зрения.
Для остальных серий, несмотря на наличие в центре графика небольшой зоны трансгрессии между неандертальцами и китайскими гомининами, ситуация в целом не противоречива. Одонтоскопическая ГК 1 противопоставляет H. sapiens и EMPH денисовцам и китайским гомининам (рис. 4) за счет того, что у первых исключительно высока частота сильной редукции гипоконуса, а в двух последних случаях максимально повышена частота всех дополнительных бугорков, борозд и гребней коронки, за исключением эпикристы (табл. 2). Неандертальцы занимают промежуточное положение.
ГК 2 выделяет в отрицательное поле неандертальцев и денисовцев, противопоставляя их остальным группам. Отрицательный полюс компоненты формируют образцы Денисова 8 и Харбин (рис. 4), у которых присутствует парастиль и отсутствует трапециевидная форма коронки, неандертальцы располагаются в области умеренных значений отрицательных координат, поскольку у них нет парастиля, а трапециевидная коронка редко, но встречается. H. sapiens располагаются в нейтральной области вокруг нулевых значений ГК 2, остальные находки занимают положительное поле (рис. 4).
Моляр AKH 1 по обеим неметрическим компонентам попадает в пределы вариабельности азиатских Homo , значительно удаляясь от H. sapiens и в меньшей степени от неандертальцев. Ближайшее сходство с ним демонстрирует находка Денисова 4 и верхний второй моляр со стоянки Манот на Ближнем Востоке
з
-2
□
АКН 1 Маното ‘
DEN4 “
□
□
ж
*
-2
□ ж
□
о
ИГК1
□
° • ° л
НА а НЕ/Е а НЕ О EMPH A NEA
* EAMLPH +DEN • HS о другие
Рис. 4. Распределение индивидуальных находок в пространстве двух первых главных компонент, полученных по неметрическим признакам.
DEN – денисовцы; HA – Homo antecessor ; NEA – неандертальцы; EMPH – европейские среднеплейстоценовые Homo ; HS – H. sapiens ; EALMPH – восточноазиатские средне- и позднеплейстоценовые Homo ; HE – H. erectus ; HE/E – H. ergaster / erectus / georgicus .
(рис. 4). Чуть дальше от него и ближе к европейским располагаются верхние вторые моляры со стоянок Лунтань (Хесянь) и Июянь в Китае и единственный представитель EMPH – Визольяно 3.
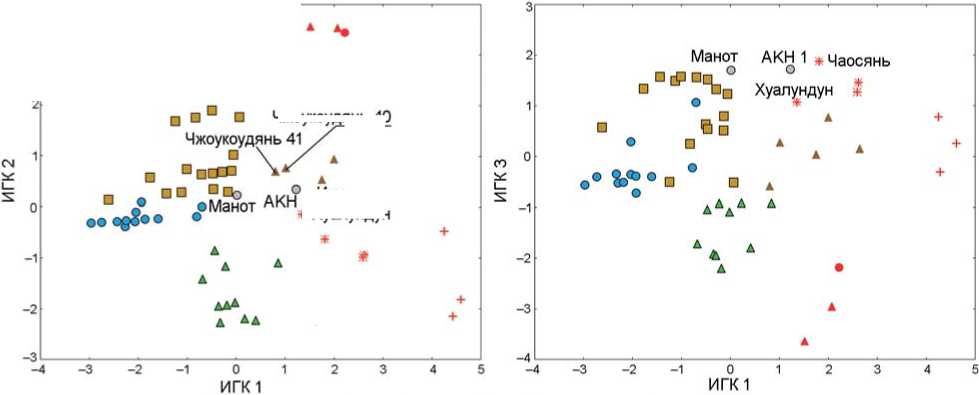
На втором этапе анализа, после интеграции метрических и неметрических признаков, картина распределения серий и индивидуальных находок принципиально не изменилась, хотя уменьшились зоны трансгрессии и поменялась полярность первой ГК (рис. 5). Как и анализ неметрических признаков, интегральный показал, что наиболее важным является направление изменчивости, противопоставляющее образцы H. sapiens совокупности азиатских находок. Проис-
Таблица 2. Нагрузки на признаки в составе первых четырех ГК (неметрические признаки)
|
Признак |
ГК 1 |
ГК 2 |
ГК 3 |
ГК 4 |
|
Трапециевидная форма коронки |
0,37 |
0,74 |
0,05 |
0,09 |
|
Редукция гипоконуса |
0,80 |
–0,11 |
–0,04 |
0,05 |
|
Бугорок Карабелли |
–0,52 |
0,46 |
0,43 |
0,12 |
|
Дополнительный дистальный бугорок |
–0,35 |
0,14 |
–0,44 |
0,78 |
|
Парастиль |
–0,34 |
–0,60 |
–0,42 |
–0,04 |
|
Эпикриста |
0,04 |
0,50 |
–0,56 |
–0,47 |
|
Задняя ямка |
–0,70 |
0,34 |
–0,28 |
–0,08 |
|
Непрерывный косой гребень |
–0,59 |
–0,14 |
0,41 |
–0,04 |
|
Дополнительные борозды |
–0,75 |
–0,05 |
0,00 |
–0,26 |
ходит это за счет как нагрузки на неметрические признаки (ГК 1), так и размеров коронок, на которые приходится исключительно высокая нагрузка в составе ИГК 1 (рис. 5, табл. 3). По данной ИГК, EMPH объединяются с H. sapiens , неандертальцы занимают промежуточное положение, ближе к EMPH и HS.
Второе по значимости направление изменчивости, описываемое ИГК 2, связано с противопоставлением неандертальцев, денисовцев и близких к ним EAMLPH всем остальным группам. Основная на-
• НА а НЕ/Е а НЕ П EMPH a NEA + EAMLPH + DEN • HS о другие
Рис. 5. Распределение индивидуальных находок в пространстве трех первых интегральных главных компонент.
Усл. обозн. см. рис. 4.
Чжоукоу дянь 40
L И юань । Хуалундун
Таблица 3. Нагрузки на метрические признаки и неметрические ГК 1–4 по результатам интегрального анализа главных компонент
|
Переменная |
ИГК 1 |
ИГК 2 |
ИГК 3 |
|
Мезио-дистальный диаметр коронки |
0,92 |
0,04 |
–0,08 |
|
Вестибуло-лингвальный диаметр коронки |
0,82 |
0,03 |
0,22 |
|
Неметрическая ГК 1 |
–0,8 |
0,15 |
0,02 |
|
Неметрическая ГК 2 |
–0,03 |
0,81 |
0,11 |
|
Неметрическая ГК 3 |
–0,26 |
–0,32 |
0,22 |
|
Неметрическая ГК 4 |
–0,02 |
–0,16 |
0,75 |
|
Неандертальцы |
–0,02 |
–0,59 |
–0,53 |
|
Homo sapiens |
–0,57 |
–0,08 |
–0,11 |
|
Восточноазиатские средне- и позднеплей- |
|||
|
стоценовые Homo |
0,46 |
–0,2 |
0,31 |
|
Homo erectus |
0,29 |
0,17 |
0,04 |
|
Денисовцы |
0,46 |
–0,19 |
0,02 |
|
Европейские среднеплейстоценовые Homo |
–0,28 |
0,4 |
0,43 |
|
Homo antecessor |
0,17 |
0,34 |
–0,23 |
|
H. ergaster/erectus/georgicus |
0,09 |
0,04 |
0,18 |
|
AKH 1 |
–0,09 |
–0,17 |
0,12 |
|
Манот |
0 |
0,03 |
0,18 |
|
Собственное число |
3,23 |
1,82 |
1,64 |
|
Процент описываемой изменчивости |
18,97 |
10,73 |
9,62 |
грузка при этом приходится на неметрическую ГК 2. Положение неандертальцев и денисовцев в одном отрицательном поле соответствует сестринскому статусу данных групп. Между собой их дифференцирует ИГК 3, в составе которой основная нагрузка приходится на неметрическую ГК 4.
Моляр AKH 1 во всех комбинациях интегрального анализа попадает в совокупность китайских нахо- док, удаляясь как от H. sapiens, так и от неандертальцев (рис. 5).
Обсуждение
Результаты проведенного исследования показали, что наличие в морфологии AKH 1 ряда архаичных признаков, таких как специфичный одонтоглифиче-ский узор, бассейны талона и тригона, крупные размеры коронки и очень большой объем латерального дентина, однозначно отклоняет гипотезу о его принадлежности H. sapiens . Вместе с тем отсутствие маркеров неандертальской линии не позволяет отнести данный моляр к кругу неандертальских. По результатам двух вариантов статистического анализа AKH 1 попадает в совокупность китайских находок, сближаясь при этом со значительно более древними, чем имеющиеся на данный момент даты для слоя 3/1 (3а) Ахштырской стоянки.
Мы осознаем необходимость большой осторожности при интерпретации полученных результатов, связанную с использованием для определения таксономического статуса индивида только одного зуба из всего зубного ряда. Однако корректность распределения на графиках главных компонент находок с заранее известной таксономической принадлежностью, в т.ч. и изолированных зубов, позволяет предполагать, что и статус AKH 1 на них отражен достаточно адекватно. Положение данно- го моляра среди китайских образцов вряд ли является статистической аберрацией. Оно свидетельствует о том, что популяционные процессы на Кавказе в среднем палеолите были значительно сложнее, чем это предполагалось. Помимо «классических» неандертальцев здесь могли обитать представители еще одной эволюционной линии Homo, отличавшиеся архаичностью строения зубной системы и близкие по морфологии китайским гомининам. Их таксономический статус на данный момент вряд ли можно точно определить, мы можем только обсуждать несколько вариантов их появления на рассматриваемой территории.
Первый вариант – длительное сохранение на Кавказе морфологической специфики популяций, представляющих первые волны заселения Евразии. Теоретически это возможно, поскольку на протяжении последних 2 млн лет помимо неандертальцев и H. sapiens регион населяли представители H. ergaster/erectus/ georgicus и H. heidelbergensis [Martinón-Torres et al., 2008; King et al., 2016]. О продолжительности их существования здесь и потенциальных возможностях смешения с более поздними группами пока говорить сложно, соответственно, нельзя исключать вероятность длительного сохранения их специфики в составе среднепалеолитического населения Кавказа. Не в пользу этой гипотезы говорит то, что по всем имеющимся показателям и по результатам многомерного анализа (см. рис. 4, 5) AKH 1 отличается как от верхних вторых моляров из Дманиси, так и от образцов H. antecessor и EMPH, на данный момент представляющих все архаичные эволюционные линии на территории Европы, с которыми можно было бы соотнести эту находку.
Второй вариант развития событий подразумевает миграцию населения. О ее изначальном источнике и хронологии пока говорить сложно. Как уже неоднократно было сказано выше, морфологически близки ахштырскому зубу верхние вторые моляры H. erectus Китая, но они датируются гораздо более ранним временем (430–160 тыс. л.н.), соответственно, прямая связь между популяциями, к которым относятся рассматриваемые нами образцы, маловероятна. Из всех привлеченных к анализу азиатских находок хронологически близкими являются только Сюйцзяяо и Денисова 4. Они не входят в круг ближайших к АКH 1 по результатам интегрального анализа, хотя стоит еще раз отметить некоторый его сдвиг в сторону денисовцев по объему латерального дентина и сближение с зубом Денисова 4 по неметрическим признакам (см. рис. 4).
Третий вариант предполагает более широкое, чем считалось ранее, распространение на территории Евразии в среднем палеолите популяций, связанных с H. erectus Китая. Есть некоторые основания предполагать, что помимо Кавказа родственный AKH 1 компонент мог присутствовать на Ближнем Востоке.
По неметрическим признакам этот моляр сближается с образцом МС 8 из пещеры Манот в Израиле (см. рис. 4). Сравнение их ЭДГ показало, что, хотя одонтоглифический узор у MC 8 не настолько сложен, ряд дополнительных борозд в мезиальном отделе имеет сходную с AKH 1 архаичную морфологию [Sarig et al., 2021, fig. 7]. По результатам интегрального анализа, моляр из пещеры Манот попадает в группу EMPH, поскольку имеет небольшие размеры. Однако эта стоянка относится к ранней поре верхнего палеолита, и меньшую архаичность МС 8 можно объяснить тем, что родственный AKH 1 компонент мог быть размыт более поздней волной миграции H. sapiens , метисация с которыми для обитателей пещеры Манот не исключается [Ibid., p. 14].
В целом верхние вторые моляры со сходной с AKH 1 морфологией, относящиеся к разному времени, обнаружены в трех географических точках, позволяющих лишь в общих чертах определить круг распространения представителей эволюционной линии, к которой принадлежит эта находка. Они локализованы в Китае, на Ближнем Востоке и Кавказе. Наиболее древние находки – Хесянь, Июянь, Чаосянь, Хуалун-дун – происходят с китайских памятников. Наиболее поздние – AKH 1 и МС 8 – обнаружены на Кавказе и Ближнем Востоке.
Вопрос о соотношении линии АКН 1 с денисов-цами Алтая пока остается открытым. Также нельзя полностью исключать ее связь с неандертальцами, поскольку, во-первых, некоторые неандертальские образцы по данным многомерного анализа смещаются в сторону EAMLPH и H. erectus (см. рис. 4, 5), во-вторых, рассматривается морфология только верхнего второго моляра, тогда как по другим зубам степень сходства неандертальцев с линией AKH 1 может быть выражена сильнее.
Заключение
Проведенный нами анализ показал, что моляр AKH 1 не принадлежит H. sapiens и, вероятнее всего, относится к архаичной эволюционной линии, одонтологические образцы которой до настоящего момента могли быть не представлены на территории Европы. По морфологии AKH 1 сходен в большей степени с молярами поздних H. erectus Китая, чем H. antecessor, EMPH или находками из Дманиси. Соответственно, можно предполагать азиатское происхождение этой линии. Для подтверждения факта ее существования, а также определения таксономического статуса ее представителей и степени их связи с неандертальской линией эволюции необходимо накопление новых данных, которые позволили бы сравнить их с другими палеодемами по более широкому набору признаков.
Статья подготовлена в рамках плановой темы НИР МАЭ РАН «Центры этно- и культурогенеза и контактные зоны в Евразии и Америке в конце плейстоцена и голоцене (по данным физической антропологии, археологии и этнологии)». Исследование моляра AKH 1 выполнено в Ресурсном центре «Рентгенодифракционные методы исследования» Научного парка Санкт-Петербургского государственного университета в рамках проекта № 125021702335-5. Авторы благодарят В.А. Шишкину (Колледж технологий, моделирования и управления, Санкт-Петербург, Россия) за помощь в подготовке иллюстраций.
