
Влияние источника углерода и условий культивирования на синтез ксантана бактериями Xanthomonas campestris ВКПМ В-6720 и его свойства
Журнал: Вестник Мурманского государственного технического университета @vestnik-mstu
Рубрика: Биотехнология пищевых продуктов и биологически активных веществ
Статья в выпуске: 3 т.29, 2026 года.
Бесплатный доступ
В процессе биосинтеза ксантановой камеди использовались штамм бактерий Xanthomonas campestris ВКПМ В-6720, сахароза и глюкоза, содержащиеся в мелассе и гидролизате пшеницы соответственно. Культивирование осуществляли в колбах в шейкере-инкубаторе и на установке с принудительной аэрацией. В процессе культивирования измеряли потребление углеводов, количество образующегося ксантана, рН и вязкость культуральной жидкости. При культивировании на среде, содержащей глюкозу в качестве основного источника углерода, образовалось больше ксантана; вязкость культуральной жидкости была выше, чем при культивировании на средах, содержащих сахарозу. Экономический коэффициент при культивировании на средах, содержащих глюкозу, составил 0,24 (в колбах) и 0,40 (на установке с принудительной аэрацией), на средах на основе сахарозы – 0,18 и 0,28 соответственно. При исследовании определена конечная вязкость сред на основе глюкозы [14,6 (в колбах) и 45,2 мПа•с (на установке с принудительной аэрацией)] и сахарозы (7,25 и 37,4 мПа•с соответственно). Питательные среды на основе мелассы и гидролизата пшеницы в первые двое суток оставались нейтральными, на третьи сутки среда с мелассой закислялась, с гидролизатом пшеницы – защелачивалась, на четвертые сутки значение рН среды с мелассой стало щелочным (вследствие отмирания клеток и автолиза). Ксантан, полученный на мелассе, имел более темную окраску по сравнению с ксантаном, полученным на гидролизате пшеницы. Углеводный состав ксантана, определенный методом газовой хроматографии, аналогичен составу коммерческого продукта. Вязкость 1%-го раствора ксантана, полученного в лаборатории, в три раза ниже вязкости коммерческого образца. Лабораторный ксантан содержал больше примесей, о чем свидетельствовали его высокая зольность и результаты элементного анализа, полученные методом сканирующей электронной микроскопии.
Короткий адрес: https://sciup.org/142248714
IDS: 142248714 | УДК: 663.15 | DOI: 10.21443/1560-9278-2026-29-3-377-392
The influence of carbon source and cultivation conditions on the synthesis of xanthan gum by Xanthomonas campestris bacteria VKPM B-6720 and its properties
Xanthan gum biosynthesis has been performed using the Xanthomonas campestris bacterial strain VKPM B-6720, sucrose, and glucose contained in molasses and wheat hydrolysate respectively. Cultivation has been carried out in flasks in a shaker incubator and in a forced-air aeration system. Carbohydrate consumption, the amount of xanthan formed, pH, and viscosity of the culture fluid have been measured during the cultivation. More xanthan is formed during cultivation in a medium containing glucose as the main carbon source; the viscosity of the culture fluid is higher than during cultivation in media containing sucrose. The economic coefficient for cultivation in glucose-containing media is 0.24 (in flasks) and 0.40 (in a forced-air aeration system), while for sucrose-based media it is 0.18 and 0.28, respectively. The study has determined the final viscosity of glucose-based media [14.6 (in flasks) and 45.2 mPa•s (in a forced-aeration unit)] and sucrose-based media (7.25 and 37.4 mPa•s, respectively). Culture media based on molasses and wheat hydrolysate remained neutral during the first two days.On the third day, the molasses-based media became acidic, while the wheat hydrolysate-based media became alkaline. On the fourth day, the pH of the molasses-based media became alkaline (due to cell death and autolysis). Xanthan gum obtained from molasses is darker in color than that obtained from wheat hydrolysate. The carbohydrate composition of xanthan gum determined by gas chromatography is similar to that of the commercial product. The viscosity of 1 % xanthan gum solution obtained in the laboratory is three times lower than that of the commercial sample. Laboratory xanthan gum contains more impurities as evidenced by its high ash content and the results of elemental analysis obtained by scanning electron microscopy.
Текст научной статьи Влияние источника углерода и условий культивирования на синтез ксантана бактериями Xanthomonas campestris ВКПМ В-6720 и его свойства
DOI:
Ямашев Т. А. и др. Влияние источника углерода и условий культивирования на синтез ксантана бактериями Xanthomonas campestris ВКПМ В-6720 и его свойства. Вестник МГТУ. 2026. Т. 29, № 3. С. 377–392. DOI:
*Kazan National Research Technological University, Kazan, Russia; e-mail: , ORCID:
Yamashev, T. A. et al. 2026. The influence of carbon source and cultivation conditions on the synthesis of xanthan gum by Xanthomonas campestris bacteria VKPM B-6720 and its properties. Vestnik of MSTU, 29(3), pp. 377–392. (In Russ.) DOI:
Ксантановая камедь представляет собой высокомолекулярный разветвленный анионный гетерополисахарид с брутто-формулой (C35H 4 9O29)n и молекулярной массой от 2-106 до 20^10 6 Да ( Song et al., 2015 ). Основная цепь ксантановой камеди состоит из остатков e-D-глюкопиранозы, связанных между собой в-(1^4)-гликозидными связями; ответвлениями являются трисахариды с последовательностью в порядке удаления от основной цепи: e-D-манноза, в-О-глюкуроновая кислота и a -D-манноза ( Layek, 2024 ). Часть гидроксильных групп боковой цепи замещена на ацетильные и пируватные группы ( Layek, 2024 ). Как правило, ацетилировано до 90 % маннозы, находящейся ближе к основной цепи ксантана, а к 30-50 % терминальной маннозы кетальной (ацетальной) связью в положениях С-4 и С-6 присоединены остатки пировиноградной кислоты, но могут быть и другие сочетания ( Wu et al., 2019 ). Так, в одной молекуле ксантана встречаются до шести вариантов структуры боковой цепи, в которых оба остатка маннозы могут быть свободными, или наоборот - оба замещенными, или только один остаток маннозы связан с уксусной или пировиноградной кислотой в различных сочетаниях ( Kool et al., 2013 ). С увеличением количества остатков пировиноградной кислоты в молекуле ксантана увеличивается и его вязкость ( Flores Candia et al., 1999; Wu et al., 2019 ).
Ксантановую камедь получают с помощью бактерий Xanthomonas campestris аэробной ферментацией на питательных средах, содержащих источники усваиваемых углеводов и азота. В процессе ферментации ксантановая камедь выделяется бактериями в среду культивирования. По окончании ферментации среду пастеризуют, осаждают ксантановую камедь этиловым или изопропиловым спиртом, полученный осадок отделяют фильтрацией или центрифугированием и высушивают1 ( Rosalam et al., 2006; PalaniraJ et al., 2011; Bajic et al., 2017) .
Ксантановая камедь хорошо растворяется в воде при любой температуре и даже в незначительных концентрациях (= 1,0 %) заметно повышает вязкость жидкости, в связи с чем она используется в качестве загустителя, гелеобразователя и стабилизатора в пищевой ( Rashidi et al., 2023 ), косметической ( Furtado et al., 2022 ), текстильной ( Cao et al., 2019 ), нефтедобывающей отраслях промышленности ( Магадова и др., 2023; Абаас и др., 2013 ), при производстве стройматериалов для загущения и структурообразования строительных смесей ( Masoumi et al., 2023 ), в медицине для контролируемого высвобождения лекарственных препаратов ( Cortes et al., 2020; Layek, 2024 ), в сельском хозяйстве для повышения влагоудерживающих свойств почвы ( PalaniraJ et al., 2011; Berninger et al., 2021 ), а также для повышения прочности песчаных и глинистых грунтов и замедления эрозии почв ( Аржакова и др., 2022; Kwon et al., 2023; Kumar et al., 2024 ). Вязкость растворов ксантановой камеди мало зависит от рН и ионной силы раствора ( Rosalam et al., 2006 ). Для растворов ксантановой камеди характерна псевдопластичность, т. е. они становятся менее вязкими при увеличении сдвигового воздействия, что облегчает их перекачивание, и снова густеют при переходе в состояние покоя ( Garcia-Ochoa et al., 2000 ).
Производство ксантановой камеди, основанное на культивировании бактерий X. campestris на синтетических питательных средах, является дорогостоящим, поэтому мировым трендом в исследованиях, посвященных получению ксантана, является изучение возможности использования питательных сред, приготовленных из вторичных ресурсов, образующихся при переработке сельскохозяйственного сырья ( PalaniraJ et al., 2011; Rashidi et al., 2023 ). В качестве источников углерода для биосинтеза ксантана предлагалось использование свекловичной мелассы ( Moosavi et al., 2010; Богатырева и др., 2016 ) и мелассы из сахарного тростника ( Abd El-Salam et al., 1994 ), крахмала ( Krishna Leela et al., 2000 ), гидролизатов крахмала ( Niknezhad et al., 2014 ), гидролизата жмыха маниоки ( Woiciechowski et al., 2004; SuJithra et al., 2019 ), молочной сыворотки ( Silva et al., 2009; Savvides et al., 2012 ), отходов сахарной свеклы ( Yoo et al., 1999 ), отходов производства соевого молока ( Асасе и др., 2024 ), сточных вод кондитерских производств ( BaJic et al., 2017 ), панцирей ракообразных ( de Sousa Costa et al., 2014 ), гидролизатов древесины ( Илалова и др., 2024; Способ получения..., 2025 ), кокосовой скорлупы и шелухи какао ( da Silva et al., 2018 ).
На биосинтез ксантана существенное влияние оказывает также источник азота; его вносят в органической и неорганической форме ( Хисаметдинов и др., 2009 ).
Однако в рекомендациях по использованию источников углерода и азота при микробиологическом синтезе ксантана встречаются противоречия. В ряде источников утверждается, что наибольший выход ксантана наблюдается на глюкозе (Krishna Leela et al., 2000), в других - на сахарозе (Souw et al., 1979; Kumara Swamy et al., 2012). То же и с источниками азота: в публикациях содержатся указания о предпочтительном использовании азота в форме органических молекул (Ozdal et al., 2018) [дрожжевой экстракт (Kumara Swamy et al., 2012), пептон, аминокислоты, например глутаминовая кислота (Souw et al., 1979)], но также есть рекомендации по применению неорганических соединений азота [нитраты калия (Woiciechowski et al., 2004), натрия или аммония (Souw et al., 1979; Shamala et al., 2001), диаммоний фосфат (Carignatto et al., 2011), хлорид аммония (Abd El-Salam et al., 1994; Flores Candia et al., 1999), мочевина (SuJithra et al., 2019) и др.]. Частично данные противоречия могут быть связаны с культуральными различиями штаммов бактерий, использованных в исследованиях, частично с особенностями самого процесса культивирования.
Кроме источника азота на процесс биосинтеза ксантана оказывает влияние и соотношение углерода и азота. Высокое соотношение C : N благоприятно для образования ксантана, а с повышением количества азота усиливается накопление биомассы ( Garcı́a-Ochoa et al., 2000; Palaniraj et al., 2011 ).
Необходимо также отметить, что многие исследования в области получения ксантана акцентированы только на выходе продукта как единственном показателе эффективности культивирования. Между тем основным технологическим параметром считается вязкость полученного продукта, так как именно способность связывать воду ксантаном, образовывать трехмерную сетку и загущать жидкости является ключевым фактором, определяющим его ценность. Для управления процессом биосинтеза ксантана важно также понимать, как меняются его показатели во времени, чтобы проводить корректирующие воздействия. Например, с увеличением вязкости культуральной жидкости ухудшается перенос кислорода к клеткам бактерий ( Bangalore et al., 2006; Seviour et al., 2011; Rashidi et al., 2023 ), что может затормозить или даже полностью остановить их жизнедеятельность. Корректирующим воздействием в этом случае являются интенсификация перемешивания или усиление подачи воздуха в ферментер. При этом очевидно, что любые подобные воздействия имеют и ограничения (технические, биологические и др., требующие разрешения новых возникающих противоречий).
Целью данной работы являлось определение изменения показателей синтеза ксантана штаммом Хanthomonas campestris ВКПМ В-6720 в процессе культивирования в зависимости от источников углерода (свекловичная меласса или гидролизат пшеницы) и параметров технологического режима.
Материалы и методы исследования
В качестве продуцента ксантана в работе использовали штамм Хanthomonas campestris ВКПМ В-6720 (обозначения в других коллекциях NRRL B 1459, ATCC 13951, DSM 19000 и BKM B-611), полученный из Всероссийской коллекции промышленных микроорганизмов НИЦ "Курчатовский институт" (Москва).
В качестве источника углерода применяли свекловичную мелассу по ГОСТ 30561-20172 и гидролизат пшеницы.
Для приготовления гидролизата использовали мягкую яровую краснозерную пшеницу 3-го класса по ГОСТ 9353-20163. Двухстадийный ферментативный гидролиз проводили согласно работе ( Саляхова и др., 2014 ) до стабилизации содержания глюкозы.
После окончания гидролиза зерновой замес разделяли на твердую и жидкую фракции с помощью механического пресс-фильтра. Для снижения потерь глюкозы с твердой фракцией последнюю смешивали с водой при температуре 60 °С в соотношении твердой фракции к воде 1 : 0,8 и перемешивали в течение 15 мин. Промывную воду также отделяли при помощи механического пресс-фильтра и объединяли с жидкой фракцией.
Содержание сухих веществ в жидкой фракции определяли с помощью рефрактометра Atago Pal-3 (Япония), содержание глюкозы – глюкозооксидазным методом со спектрофотометрическим детектированием с использованием набора реагентов "Глюкоза Агат" (по ТУ 9398-233-11498242-01, "Агат-Мед", г. Балашиха). Содержание сахарозы в мелассе и продуктах ферментации устанавливали спектрофотометрическим методом с резорцином4. Значение рН определяли рН-метром-кондуктометром Extech EC 600 (США).
Для приготовления питательной среды гидролизат пшеницы и мелассу разбавляли водопроводной водой так, чтобы концентрация основного углевода (глюкозы и сахарозы соответственно) лежала в пределах 1,5–2,0 %. В качестве источников азота и ростовых веществ в среду добавляли пептон (по ГОСТ 13805-765, НПО "Порт-Петровск", г. Курск), дрожжевой экстракт (по ТУ 9385-007-39484474-2003, ЗАО "Научно-исследовательский центр фармакотерапии", Санкт-Петербург). Составы питательных сред представлены в табл. 1. При необходимости корректировали рН среды до значения 7,0 с помощью 10%-го раствора NaOH или 5%-го раствора H 2 SO 4 .
Таблица 1. Состав питательных сред Table 1. Composition of nutrient media
|
Среда |
Начальная вязкость, мПа·с |
Глюкоза, г/л |
Сахароза, г/л |
Пептон, г/л |
Дрожжевой экстракт, г/л |
|
– на гидролизате пшеницы |
0,99 ± 0,03 |
16,6 ± 0,1 |
– |
5,0 |
3,0 |
|
– мелассе |
0,82 ± 0,03 |
0,2 ± 0,1 |
19,6 ± 0,1 |
5,0 |
3,0 |
2 ГОСТ 30561-2017. Меласса свекловичная. Технические условия. М. : Стандартинформ, 2017. 25 с.
3 ГОСТ 9353-2016. Пшеница. Технические условия. М. : Стандартинформ, 2019. 16 с.
4 Бойко Л. М. Физико-химические методы контроля бродильных производств : справочник. Киев : Технiка, 1986. 200 с .
5 ГОСТ 13805-76. Пептон сухой ферментативный для бактериологических целей. Технические условия. М. : Изд-во стандартов, 1976. 7 с.
Культивирование осуществляли в колбах Эрленмейера объемом 250 мл, в которые наливали 50 мл среды, закрывали ватно-марлевыми пробками и стерилизовали при 0,5 атм в течение 20 мин. После стерилизации и охлаждения питательной среды до комнатной температуры в колбы в стерильных условиях вносили при помощи микробиологической петли посевной материал – штамм Xanthomonas campestris ВКПМ В-6720 [трехсуточная культура, предварительно выращенная в чашке Петри на плотной питательной среде № 353: глюкоза (1 %), пептон (0,5 %), дрожжевой экстракт (0,3 %), агар-агар (2 %)]. Для обеспечения аэрации колбы устанавливали на перемешивающее устройство с подогревом ЭКРОС ПЭ-6410М (Россия). Культивирование в колбах осуществляли в течение 72 ч при 28 °С; ставили по три колбы с каждым вариантом среды и через каждые 24 ч содержимое одной из колб использовали для определения параметров культивирования.
На следующем этапе исследований осуществляли культивирование бактерий Xanthomonas campestris ВКПМ В-6720 в стеклянном сосуде объемом 2 000 мл, в который наливали 500 мл среды. Сосуд со средой подвергали стерилизации при 0,5 атм в течение 30 мин, посевной материал, выращенный на двух чашках Петри, вносили указанным выше способом. Для интенсификации процесса и равномерного распределения кислорода сосуд устанавливали на перемешивающее устройство ЭКРОС ПЭ-6410М. Для обеспечения интенсивной аэрации в емкость нагнетали воздух, применяя компрессор Eheim 200 (Германия) производительностью 200 л/ч. Подаваемый воздух очищали от микроорганизмов с помощью PTFE-фильтра Midisart® BV 0,2 мкм Sartorius AG (Германия), который был простерилизован вместе с сосудом. Распределение воздуха в среде выполняли с помощью аквариумного аэратора. Отработанный воздух и газообразные продукты метаболизма удалялись через отдельный патрубок. Каждые 24 ч в процессе культивирования осуществляли забор проб через трубку с запорным клапаном. Для предотвращения вспенивания в среду вносили пеногаситель – 10 капель олеиновой кислоты (ГОСТ 29039-916).
Вязкость культуральной жидкости и 1%-го раствора ксантана в 1%-м растворе хлорида калия устанавливали с помощью синусоидального вибровискозиметра AND Vibro Viscosimeter SV-10A (Япония) согласно методике, основанной на измерении величины электрического тока, необходимой для того, чтобы поддерживать постоянную амплитуду вибрации сенсорных пластин вискозиметра в жидкой среде.
Для определения количества ксантановой камеди отбирали аликвоту культуральной жидкости и центрифугировали при 6 600 g на центрифуге ОПН-8УХЛ (Кыргызстан) в течение 20 мин с целью отделения клеточной биомассы. Для определения количества абсолютно сухой биомассы ее навеску помещали в предварительно высушенный и взвешенный пакет из фильтровальной бумаги и высушивали при 160° в течение 3 мин между плитами контактного влагомера Кварц-21М33-1 (Россия), затем пакет охлаждали в эксикаторе в течение 20 мин и взвешивали. Ксантановую камедь переводили в нерастворимое состояние, добавляя к надосадочной жидкости 3 объемных части изопропилового спирта (ГОСТ 9805-847). Выделившийся ксантан отделяли фильтрацией через нейлоновый фильтр и высушивали в сушильном шкафу при 40 °С до постоянной массы.
Влажность ксантана определяли по ГОСТ Р 57682-20178, зольность – по ОФС.1.2.2.2.00139.
Для установления углеводного состава образцов ксантана пробы подвергали гидролизу 2 М трифторуксусной кислотой в течение 3 ч при 121 °С. Полученные моносахариды определяли методом газовой хроматографии в виде триметилсилильных (ТМС-) производных после дериватизации ( Мухутдтинов и др., 2019 ). Условия анализа: хроматограф Shimadzu GC-2010 с автоматическим пробозадатчиком AOC-20i, колонка SBP5-25 (25 м × 0,25 мм × 0,2 мкм); газ-носитель N 2 , 20,0 см/с; программа температур – 1 мин при 70 °С, подъем 4 °С/мин до 320 °С, 5 мин при 320 °С; температура ввода пробы 280 °С, делитель потока 1 : 20, объем пробы 2 мкл; детектор пламенно-ионизационный, температура 325 °С.
Для исследования морфологии поверхности и элементного анализа использовали автоэмиссионный сканирующий электронный микроскоп Merlin компании Carl Zeiss (Германия), оснащенный детектором элементного анализа Aztec X-MAX; разрешение 127 эВ.
Полученные данные были обработаны методами статистики с использованием программного обеспечения Microsoft Excel. Результаты представлены как среднее значение и стандартное отклонение (mean ± SD).
Результаты и обсуждение
Целью первого этапа исследований было определение изменения во времени содержания усваиваемого углевода, количества образующегося ксантана и вязкости культуральной жидкости при проведении процесса в колбах.
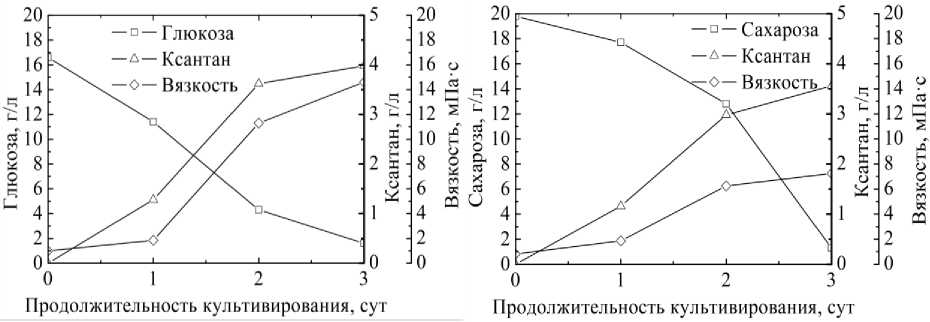
Изменение показателей культивирования на средах с гидролизатом пшеницы и мелассой представлено на рис. 1, а и б.
б
а
Рис. 1. Показатели процесса культивирования (в колбах) бактерий Xanthomonas campestris ВКПМ В-6720 на средах с гидролизатом пшеницы ( а ) и мелассой ( б ) Fig. 1. Parameters of the cultivation process (in flasks) of Xanthomonas campestris VKPM B-6720 bacteria on media with wheat hydrolysate ( a ) and molasse ( б )
Представленные на рис. 1, а данные свидетельствуют о наибольшем увеличении вязкости и приросте содержания ксантана во вторые сутки культивирования. Глюкоза в первые двое суток расходовалась относительно равномерно, и лишь в последние сутки ее потребление замедлилось.
Как видно из графика (рис. 1, б ), максимальное потребление сахарозы наблюдалось в третьи сутки, однако наибольший прирост вязкости и содержания ксантана так же, как в случае с глюкозой, происходил в первые двое суток.
Вязкость среды, содержащей пшеничный гидролизат, после двух суток культивирования возрастала значительно интенсивнее по сравнению со средой на мелассе. Мы считаем, это связано с тем, что среда на пшеничном гидролизате содержит глюкозу, которая быстрее усваивается, тогда как в среде на мелассе необходимо протекание дополнительной ферментативной реакции по гидролизу сахарозы, что приводит к замедлению процесса образования ксантана.
Вместе с тем по количеству образовавшегося ксантана обе среды не сильно различались; таким образом, различия в вязкости двух сред, вероятно, объясняются различной структурой образовавшегося ксантана и/или его молекулярной массой.
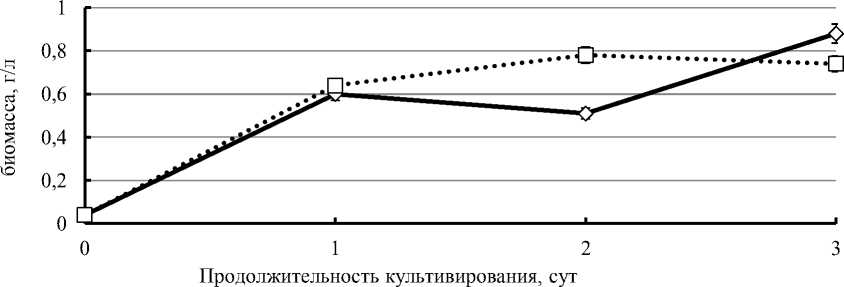
Накопление биомассы в процессе культивирования представлено на рис. 2.
меласса • •a.- гидролизат пшеницы
Рис. 2. Накопление биомассы в среде в процессе культивирования (в колбах) Xanthomonas campestris ВКПМ В-6720 на средах с мелассой и гидролизатом пшеницы Fig. 2. Biomass accumulation in the medium during fermentation (in flasks) of Xanthomonas campestris VKPM B-6720 on media with molasses and wheat hydrolysate
Из рис. 2 видно, что основной прирост биомассы происходил в первые сутки культивирования; в дальнейшем ее количество стабилизировалось. Прирост биомассы на гидролизате пшеницы, т. е. при использовании глюкозы в качестве источника углерода, шел более интенсивно, чем прирост на мелассе.
На следующем этапе исследований осуществляли культивирование бактерий Xanthomonas campestris
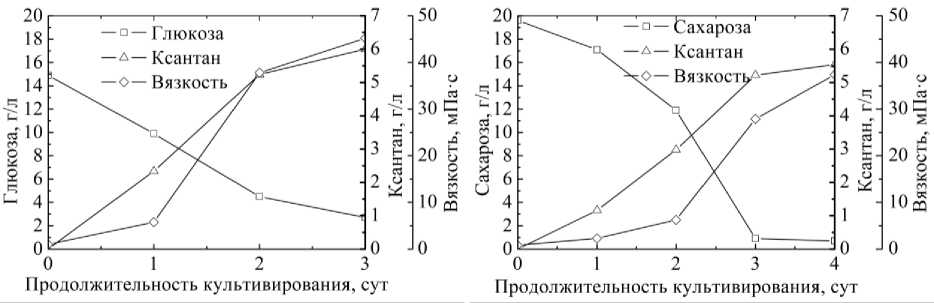
ВКПМ В-6720 в сосуде объемом 2 000 мл, содержащем 500 мл среды, и с интенсивной аэрацией. Изменение показателей процесса культивирования (на установке) на питательных средах с гидролизатом и мелассой представлено на рис. 3, а и б.
пшеницы
б
а
Рис. 3. Показатели процесса культивирования (в сосуде с интенсивной аэрацией) бактерий Xanthomonas campestris ВКПМ В-6720 на питательных средах с гидролизатом пшеницы ( а ) и мелассой ( б ) Fig. 3. Parameters of the fermentation process (in the intensively aerated vessel) of Xanthomonas campestris VKPM B-6720 bacteria on media with wheat hydrolysate ( а ) and molasse ( б )
Снижение содержания глюкозы и нарастание количества ксантана в среде с гидролизатом пшеницы были практически линейными в первые двое суток и замедлялись на третьи сутки культивирования, в то время как наибольший прирост вязкости наблюдался на вторые сутки. Конечные показатели выхода ксантана и вязкости среды на установке существенно возросли по сравнению с культивированием в колбах вследствие лучшей аэрации среды. Выход увеличился в полтора раза, а вязкость – в три раза.
Значительное увеличение вязкости культуральной жидкости при культивировании в сосуде с интенсивной аэрацией по сравнению с культуральными жидкостями из колб свидетельствует о большей степени полимеризации образовавшегося ксантана и/или увеличении количества связей с пировиноградной кислотой.
Приняв во внимание тот факт, что при росте на среде с мелассой метаболизм бактерий включает дополнительную реакцию по гидролизу сахарозы, было решено осуществлять процесс ферментации на мелассе в течение 4 суток.
При культивировании бактерий на мелассе в сосуде с интенсивной аэрацией наиболее активное потребление сахарозы наблюдалось на вторые и третьи сутки, количество образующегося ксантана равномерно росло в течение первых трех суток и замедлялось на четвертые, а вязкость среды интенсивнее всего росла на третьи сутки, но и в течение четвертых суток также был заметен прирост по сравнению с первыми двумя сутками культивирования. Также отмечалось существенное повышение выхода ксантана (в 1,5 раза) и вязкости среды (в 3–5 раз) по сравнению с этими показателями, полученными при выращивании в колбах на том же источнике углеводов. По нашему мнению, ключевую роль здесь сыграло усиление аэрации среды.
Более низкая скорость усвоения субстрата при культивировании на среде, содержащей сахарозу, по сравнению с глюкозосодержащей средой, возможно, обусловлена необходимостью перестройки метаболизма бактерий с одного источника углерода на другой, так как культура для инокуляции выращивалась на агаризованной среде с глюкозой, либо ингибирующим действием компонентов мелассы, либо совместным действием обоих вышеперечисленных факторов.
Замедление биосинтеза ксантана, наблюдаемое на четвертые сутки, обусловлено истощением питательных веществ в среде и накоплением продуктов метаболизма.
Сравнение изменения вязкости двух сред наглядно демонстрирует отставание процессов биосинтеза полисахарида на среде с мелассой по сравнению с богатой глюкозой средой. Даже дополнительные сутки культивирования не позволили вязкости среды с мелассой достигнуть уровня среды на пшеничном гидролизате. Наиболее интенсивно возрастание вязкости на среде с пшеничным гидролизатом происходило во вторые сутки, а на среде с мелассой – в течение третьих и четвертых суток.
Процесс биосинтеза ксантана на среде с глюкозой шел более интенсивно, и конечное его содержание в ней было на 0,5 г/л больше, чем на среде с мелассой.
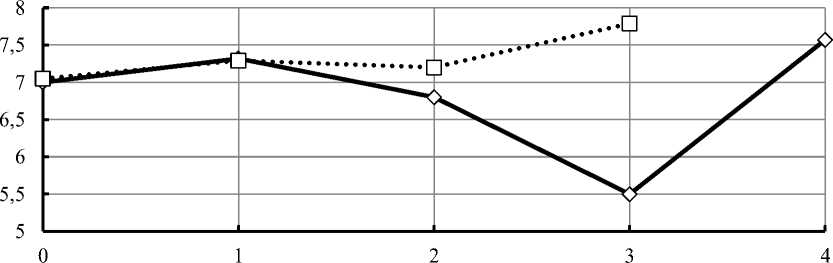
Динамика изменения активной кислотности среды в процессе культивирования бактерий Xanthomonas campestris ВКПМ В-6720 (на установке) на обеих средах представлена на рис. 4.
Продолжительность культивирования, сут меласса • •С.. гидролизат пшеницы
Рис. 4. рН среды в процессе культивирования (на установке) бактерий Xanthomonas campestris ВКПМ В-6720 на средах с мелассой и гидролизатом пшеницы
Fig. 4. pH of the media during the fermentation (in the system) of Xanthomonas campestris VKPM B-6720 bacteria on media with molasses and wheat hydrolysate
В первые двое суток культивирования значение рН изменялось мало и было близко к нейтральному независимо от типа среды. Конечные значения рН указывали на защелачивание обоих типов сред, что свидетельствует о начавшемся автолизе биомассы бактерий, который сопровождается выделением аммиака, повышающего рН.
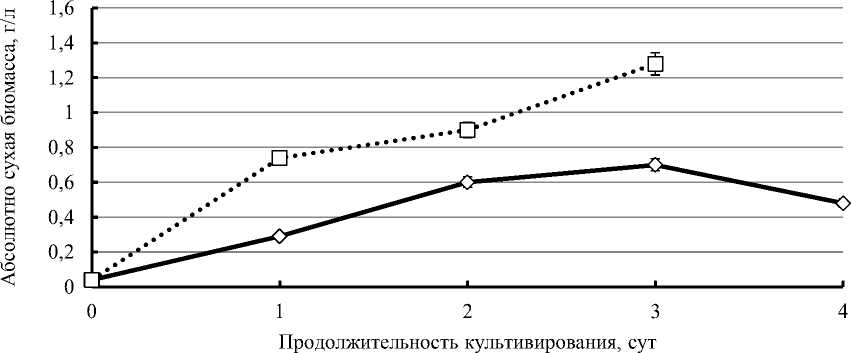
Накопление биомассы в процессе культивирования бактерий Xanthomonas campestris ВКПМ В-6720 в сосуде с интенсивной аэрацией представлено на рис. 5.
меласса
••{]•• гидролизат пшеницы
Рис. 5. Накопление биомассы в среде в процессе культивирования (на установке) Xanthomonas campestris ВКПМ В-6720 на средах с мелассой и гидролизатом пшеницы Fig. 5. Biomass accumulation in the medium during the fermentation process (in the system) of Xanthomonas campestris VKPM B-6720 on media with molasses and wheat hydrolysate
Из рис. 5 видно, что практически в течение всего периода культивирования на установке количество биомассы возрастало, исключение составили только четвертые сутки при росте бактерий на мелассе, в течение которого количество биомассы начало уменьшаться. Уменьшение биомассы связано с нехваткой питательных веществ в последние сутки, из-за чего начался автолиз клеток с выделением аммиака в результате дезаминирования аминокислот, что привело к росту рН с 5,5 до 7,5 в этот же период времени (рис. 4).
При сравнении количества образовавшейся биомассы в колбах и на установке видно, что на мелассе образование биомассы шло с одинаковой интенсивностью независимо от объема среды и условий культивирования, а при росте на гидролизате пшеницы количество биомассы при выращивании на установке было в 1,5 раза больше, чем при росте в колбах, вследствие лучшей аэрации.
Максимальная концентрация биомассы наблюдалась при росте культуры Xanthomonas campestris ВКПМ В-6720 на среде, приготовленной на основе гидролизата пшеницы, т. е. на глюкозе как источнике углерода, но при условии хорошей аэрации. При слабой аэрации существенных различий по количеству биомассы между субстратом, содержащим сахарозу, и субстратом с глюкозой нет. Больше ксантана также образовывалось на средах с глюкозой при всех условиях культивирования.
При культивировании бактерий в сосуде с интенсивной аэрацией синтезировалось заметно больше полисахарида по сравнению с ростом в колбах. Экономический коэффициент биосинтеза ксантана Yp/s при росте на гидролизате пшеницы составил 0,24 в колбах и 0,40 на установке, а при росте на мелассе 0,18 и 0,28 соответственно.
Полученный продукт после выделения и высушивания представлял собой порошок коричневого цвета, если культивирование шло на мелассе, и светло-желтого, если на гидролизате пшеницы (рис. 6).
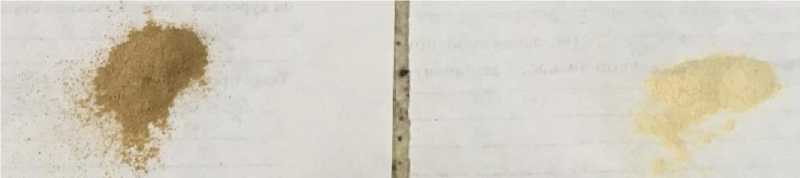
Рис. 6. Внешний вид ксантана, полученного на мелассе (слева) и на гидролизате пшеницы (справа) Fig. 6. Appearance of the xanthan produced on molasses (left) and on wheat hydrolysate (right)
Физико-химические свойства полученного ксантана и промышленного ксантана, взятого для сравнения, представлены в табл. 2. В качестве образца для сравнения использовался ксантан фирмы Shendung Fufeng Biotechnologies Co. (Китай).
Таблица 2. Физико-химические свойства образцов ксантана Table 2. Physicochemical properties of xanthan gum samples
|
Показатель |
Среда |
Промышленный ксантан Shendung Fufeng Biotechnologies Co. |
|
|
на мелассе |
пшеничном гидролизате |
||
|
Влажность, % |
11,1 ± 0,1 |
12,5 ± 0,1 |
11,5 ± 0,1 |
|
Зольность, % на сухое вещество |
9,8 ± 0,1 |
10,5 ± 0,1 |
6,0 ± 0,1 |
|
рН 1%-го раствора |
6,78 ± 0,03 |
7,90 ± 0,03 |
7,05 ± 0,03 |
|
Вязкость 1%-го раствора при 25 °С, мПа·с |
71,7 ± 0,2 |
75,0 ± 0,2 |
246 ± 0,3 |
Зольность ксантана, полученного в лабораторных условиях, была выше по сравнению с промышленным образом вследствие недостаточно эффективной очистки от примесей культуральной жидкости.
Ключевой характеристикой ксантана является его вязкость. Вязкость лабораторных образцов была более чем в три раза ниже, чем у китайского аналога. Это может быть обусловлено особенностями штамма, взятого для исследований, несбалансированным составом питательной среды и неоптимальными условиями культивирования.
Для установления соответствия состава ксантана, полученного в лаборатории, промышленному образцу проводили хроматографическое определение содержащихся в нем моносахаридов. Результаты представлены в табл. 3.
Таблица 3. Углеводный состав образцов ксантана Table 3. Carbohydrate composition of xanthan gum samples
|
Вещество |
Ксантан |
|
|
лабораторный |
промышленный |
|
|
Глюкоза, % |
39,85 |
39,94 |
|
Манноза, % |
39,44 |
39,75 |
|
Глюкуроновая кислота, % |
18,83 |
19,55 |
|
Рамноза, % |
1,10 |
0,24 |
|
Арабиноза, % |
0,25 |
0,21 |
|
Ксилоза, % |
0,53 |
0,31 |
Как видно из табл. 3, углеводный состав обоих образцов ксантана был сходным, особенно по содержанию глюкозы и маннозы, что согласуется с литературными данными по соотношению глюкозы, маннозы и глюкуроновой кислоты (2 : 2 : 1 соответственно) ( Rosalam et al., 2006 ). Заметные различия между промышленным и лабораторным образцами ксантана выявлены в содержании примесных рамнозы и ксилозы, количество которых в лабораторном образце было несколько выше.
Для сравнения морфологии поверхности лабораторного и промышленного образцов ксантана и элементного состава их золы использовали автоэмиссионный сканирующий электронный микроскоп Merlin компании Carl Zeiss (Германия), оснащенный детектором элементного анализа Aztec X-MAX. Изображения поверхности лабораторного и промышленного образцов ксантана представлены на рис. 7, элементный состав – в табл. 4.
Таблица 4. Элементный состав образцов золы ксантана Table 4. Elemental composition of xanthan gum ashes
|
Элемент |
Тип линии |
Ксантан лабораторный |
Ксантан промышленный |
Эталон |
||
|
Мас.% |
Ат.% |
Мас.% |
Ат.% |
|||
|
Na |
K серия |
0,46 |
0,30 |
1,71 |
1,04 |
Albite |
|
Mg |
K серия |
0,20 |
0,12 |
– |
– |
MgO |
|
Al |
K серия |
0,24 |
0,13 |
0,06 |
0,03 |
Al 2 O 3 |
|
Si |
K серия |
0,40 |
0,21 |
– |
– |
SiO 2 |
|
P |
K серия |
0,79 |
0,38 |
– |
– |
GaP |
|
S |
K серия |
0,38 |
0,18 |
– |
– |
FeS 2 |
|
Cl |
K серия |
4,00 |
1,68 |
1,31 |
0,52 |
NaCl |
|
K |
K серия |
12,10 |
4,62 |
0,06 |
0,02 |
KBr |
|
Ca |
K серия |
0,34 |
0,13 |
2,41 |
0,84 |
Wollastonite |
|
Cu |
K серия |
0,24 |
0,06 |
0,39 |
0,08 |
Cu |
|
Sn |
L серия |
0,17 |
0,02 |
– |
– |
Sn |
Промышленный образец ксантана имел волокнистую структуру, что особенно заметно на фотографиях (рис. 7) с большим увеличением (200 нм и 1 мкм). Это обусловлено тем, что основная полисахаридная цепь ксантана по структуре аналогична целлюлозе. О волокнистой морфологии ксантана, наблюдаемой на фотографиях, полученных при помощи сканирующего электронного микроскопа, сообщается в исследовании ( Nejadmansouri et al., 2020 ). Структура лабораторного ксантана была чешуйчатая, что может быть связано с недостаточной полимеризацией ксантана и большим количеством примесей.
Промышленный образец ксантана имел в своем составе меньше элементов, что согласуется с данными о его меньшей зольности (табл. 2). Однако доля натрия, кальция и меди у промышленного образца была выше. Большое разнообразие примесей в лабораторном ксантане обусловлено недостаточно эффективной очисткой образца в процессе выделения. Следует отметить, что очистка ксантана является отдельной задачей, требующей комплексного научного подхода для своего решения и лежащей пока за рамками данного исследования.
Выводы
По результатам проведенных исследований можно сформулировать следующие положения:
-
– исследованные источники углерода целесообразно использовать для получения ксантана штаммом ВКПМ В-6720; гидролизат пшеницы предпочтителен, так как эффективность конверсии глюкозы в ксантан выше, чем сахарозы;
-
– интенсификация аэрации повышает степень конверсии углевода в продукт в 1,6 раза, увеличивает выход ксантана на 2 г/л; при этом вязкость культуральной жидкости возрастает в 3–5 раз;
-
– ксантан, получаемый на гидролизате пшеницы, содержит меньше окрашивающих веществ, чем ксантан, полученный на мелассе.
Таким образом, выбранный штамм Xanthomonas campestris ВКПМ В-6720 эффективно конвертирует глюкозу и сахарозу в полисахарид ксантан; повышение качественных показателей и выхода ксантана осуществляется посредством интенсификации аэрации питательной среды.
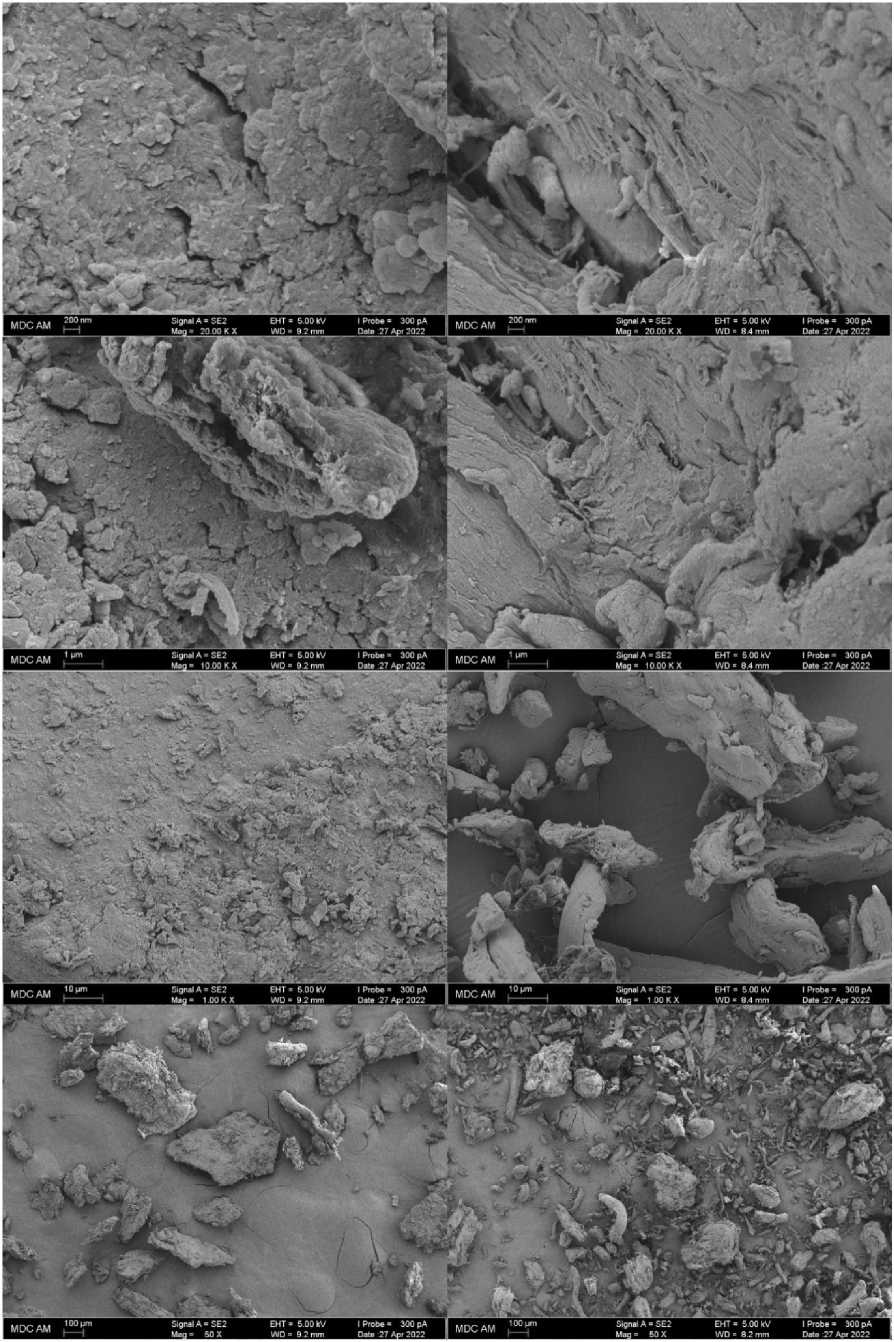
Рис. 7. Морфология поверхности ксантана, произведенного в лаборатории на гидролизате пшеницы (слева) и промышленного образца (справа)
Fig. 7. Surface morphology of laboratory and industrial xanthan gum; on the left is xanthan gum produced in the laboratory using wheat hydrolysate; on the right it is the industrial sample
