
Масштабно-зависимая регуляция и мозаичность режимов формирования метасообщества птиц в тундре на северо-востоке Ямала
Журнал: Принципы экологии @ecopri
Рубрика: Оригинальные исследования
Статья в выпуске: 3 (61), 2026 года.
Бесплатный доступ
Масштабно-зависимая организация и механизмы формирования тундровых метасообществ птиц остаются слабо изученными. Цель работы — выявление основных паттернов формирования метасообщества птиц в тундре на северо-востоке Ямала с учетом пространственного масштаба, роли редких видов и нелинейности экологических откликов. На основе сети из 708 учетных точек была построена матрица присутствия-отсутствия для 54 видов птиц. Структура метасообщества изучалась с помощью метода EMS с применением многоуровневого подхода: анализ полного метасообщества и вдоль экологических градиентов, разбиение градиентов на интервалы и последующий EMS-анализ каждого интервала, пошаговое удаление редких видов и анализ для четырех пространственных разрешений (100 м, 1 км, 2 км и 5 км). Регуляция видового состава была детерминированной только для пространственного разрешения 2 км, где был выявлен градиент Глисона. Для остальных пространственных разрешений наблюдаемая случайность отражала фрагментацию видовых диапазонов из-за большого числа редких видов или их перекрытие и высокую заполненность матрицы. Изучаемое метасообщество организовано иерархически и представляет собой мозаику из детерминированных и случайных паттернов. Каждое пространственное разрешение имеет свой набор механизмов формирования метасообщества. Пространственное разрешение 2 км является критическим порогом, на котором происходит смена доминирующих процессов: регуляция видового богатства сменяется регуляцией видового состава. При увеличении пространственного разрешения число значимых корреляций с градиентами среды снижалось, а сила корреляции возрастала, т. е. внутренняя структура метасообщества с увеличением пространственного разрешения все больше определяется уменьшающимся числом сильных экологических факторов. Большая часть градиентов для пространственного разрешения 100 м содержит детерминированные EMS-паттерны, срытые нелинейностью на уровне полных градиентов. Видимая стохастичность может маскировать детерминированную структуру в сообществах с высокой долей редких видов. Для понимания сложной природы механизмов формирования реальных метасообществ необходимы иерархические мультимасштабные подходы.
Короткий адрес: https://sciup.org/147255162
IDS: 147255162 | УДК: 591.9(4-013); 597.6/.9 | DOI: 10.15393/j1.art.2026.16422
Scale‑dependent regulation and the mosaic nature of the modes of bird metacommunity formation in the tundra of northeastern Yamal.
The scale-dependent organization and mechanisms of formation of tundra bird meta-communities remain poorly studied. The aim of this study is to identify the main patterns of meta-community formation among birds in the tundra in the northeast of Yamal, taking into account the spatial scale, the role of rare species, and the nonlinearity of ecological responses. Based on a network of 708 survey points, a presence-absence matrix was constructed for 54 bird species. The structure of meta-community was studied using the EMS method with a multilevel approach. It included an analysis of the complete meta-community and along ecological gradients, division of gradients into intervals and subsequent EMS analysis of each interval, step-by-step removal of rare species, and analysis for four spatial resolutions (100 m, 1 km, 2 km, and 5 km). Regulation of species composition was determined only at a spatial resolution of 2 km, where the Gleason gradient was detected. For other spatial resolutions, the observed randomness reflected the fragmentation of species ranges due to a large number of rare species or their overlap and high density of the matrix. The studied meta-community is organized hierarchically and represents a mosaic of deterministic and random patterns. Each spatial resolution has its own set of mechanisms for meta-community formation. A spatial resolution of 2 km is a critical threshold at which the dominant processes change: the regulation of species richness is replaced by the regulation of species composition. As spatial resolution increased, the number of significant correlations with environmental gradients decreased, while the strength of the correlations increased. It means that, with increasing spatial resolution, the internal structure of the meta-community is increasingly determined by a decreasing number of strong environmental factors. Most of the gradients for a spatial resolution of 100 m contain deterministic EMS patterns hidden by nonlinearity at the level of full gradients. Apparent stochasticity can mask the deterministic structure in communities with a high proportion of rare species. To understand the complex nature of the mechanisms underlying the formation of real meta-communities, hierarchical multiscale approaches are required.
Текст научной статьи Масштабно-зависимая регуляция и мозаичность режимов формирования метасообщества птиц в тундре на северо-востоке Ямала
Локальное многовидовое население птиц формируется вследствие колонизации и вымирания в пределах какого-либо региона. Ранее ключевая роль в формировании такого многовидового населения отводилась нишевым процессам (Grinnell, 1917). С появлением нейтральной теории (Hubbell, 2001) акцент был смещен на расселение видов, тогда как различиям в экологических нишах не придавалось значения (Ozkan et al., 2013). В теории метасообщества была предпринята попытка интегрировать экологическую сортировку видов вдоль градиентов и процессы расселения в единую систему, где нишевые процессы и нейтральное расселение заняли разные полюса, между которыми возможны промежуточные варианты (Leibold et al., 2004). В настоящей работе интегрируются ключевые концепции экологии сообществ, чтобы выявить базовые процессы, определяющие формирование тундровых сообществ птиц с учетом антропогенной трансформации местообитаний.
Цель работы – выявление механизмов формирования метасообщества птиц на северо-востоке Ямала под влиянием естественных и антропогенных экологических градиентов, а также оценка роли редких видов и нелинейности экологических откликов с учетом пространственного масштаба. В основе работы лежит пространственно явный подход, а также оценен вклад стохастических и детерминированных процессов в формировании сообществ птиц.
Материалы
Исследования проводились на Ямале в окрестностях пос. Сабетта (рис. 1) в переходной зоне между арктическими и типичными тундрами. Район – морская аккумулятивная равнина с многочисленными озерами и повсеместной вечной мерзлотой (Раковская, Давыдова, 2001а, б).
Исследования проводились в первой половине лета (вторая половина июня – первая половина июля) 2017 и 2023 гг. Основа исследований – сеть из 708 учетных точек с буфером 100 метров. В 2017 г. учетные точки располагались вдоль кольцевых маршрутов, в 2023 г. использовалась регулярная сеть точек с шагом 300 метров. На основе учетов составлена матрица присутствия-отсутствия, содержащая 54 вида птиц. Общее число присутствий – 2318. Каждый вид в точке учитывался только один раз (присутствие)
независимо от числа регистраций особей в данной точке. В пределах одной точки встречается от 0 до 12 видов птиц. Медиана – 3 вида в одной точке.
Абсолютное большинство видов (63 %) имеют низкую распространенность и встречены в пределах менее чем 5 % учетных точек. Лишь три вида: чернозобик Calidris alpina, краснозобый конек Anthus cervinus и лапландский подорожник Calcarius lapponicus встречаются в более чем 30 % учетных точек.
Методы
В QGIS для каждой учетной точки (участка) рассчитывались: среднемноголетний NDVI, суммарный NDVI и NDVI без учета водоемов за первую половину июля, среднемноголетний индекс MNDWI, средняя высота местности на основе ArcticDEM (Porter et al., 2022), средняя многолетняя среднесуточная температура первой половины июля (Karger et al., 2023), площадь, занимаемая различными типами угодий, расстояния до природных и антропогенных объектов, мозаичность ландшафта (Patch Density), рассчитанная на основе классификации растров NDVI, MNDWI, NDSI, индекса пересеченности рельефа и ArcticDEM (всего 28 градиентов).
Для снижения размерности использован метод главных компонент с вращением Promax. Для учета нелинейного влияния градиентов на видовое богатство (число видов в пределах учетной точки или одного участка) использовалась полиномиальная регрессия с включением квадратичных и кубических членов. Для расчетов использовались программы JASP (JASP Team, 2024) и Jamovi (The jamovi project, 2025).
Основа исследований – это анализ элементов структуры метасообщества (Leibold, Mikkelson, 2002), позволяющий тестировать распределения видов для определения соответствия ряду идеализированных образцов (Presley et al., 2010; Попов, 2018).
Метасообщество – это сеть из нескольких экологических сообществ в пределах различных участков, потенциально, но не обязательно связанных между собой за счет расселения видов. Сообщество – это группа видов в данном месте (Leibold, Mikkelson, 2002) и в данное время, масштаб которых определяется задачами исследования. Этот подход фиксирует лишь сам факт присутствия видов в заданном месте и времени, т. к. любые попытки придать сообществу статус объективно существующей природной
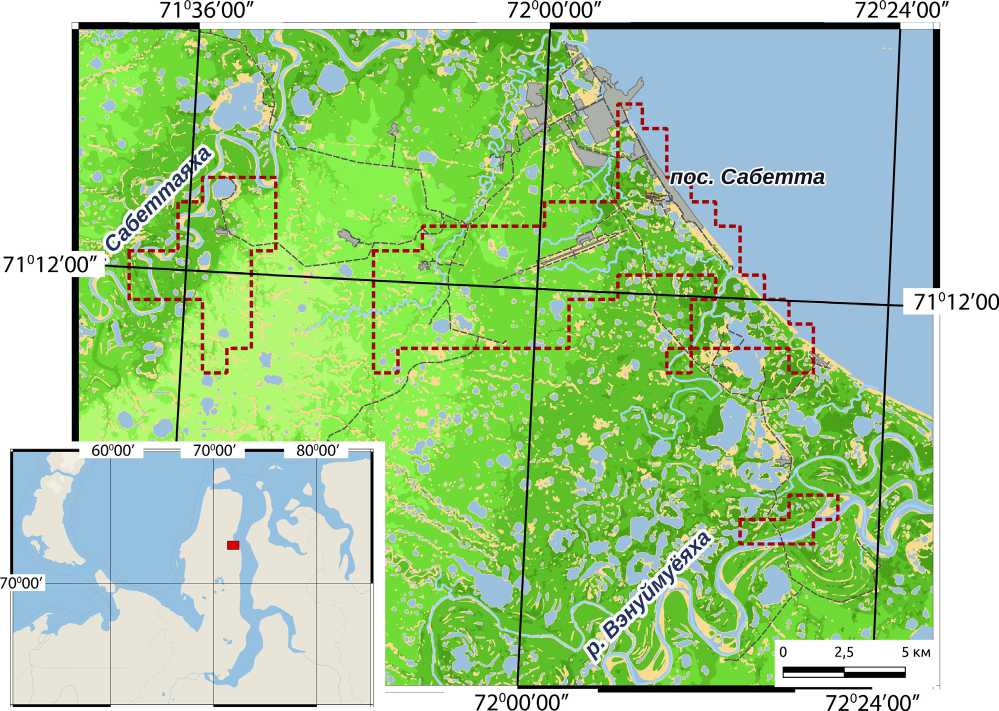
Рис. 1. Район исследований. Разными тонами зеленого цвета показаны сырые (темный) низинные и сухие возвышенные участки (светлый). Красный пунктир – граница областей точечных учетов. Бежевый цвет - участки с оголенным грунтом или с разреженной растительностью. Серый цвет - промышленные площадки. Черная штриховая линия – автомобильные дороги. Красный прямоугольник на врезке – район исследований
Fig. 1. Study area. Different shades of green indicate damp (dark) lowlands and dry elevated areas (light). The red dotted line indicates the boundary of the areas subject to point-based monitoring. Beige indicates areas with bare soil or sparse vegetation. Gray indicates industrial sites. The black dashed line indicates roads. The red rectangle in the inset indicates the study area
единицы сталкиваются с неразрешимыми проблемами границ, гетерогенности и неоднозначности (Looijen, Andel, 1999).
Для характеристики параметров метасообщества использовались традиционные для EMS-анализа индексы: NODF (Ulrich et al., 2009), C-Score, C-Turn, Morisita, EmbAbs (Embedded absences) и Together, расчет которых производился в программе Turnover (Ulrich, 2012). Для оценки значимости данных индексов применялись фиксированные нулевые модели Fixed–Fixed, FF null model, которые также рассчитывались в программе Turnover (Ulrich, 2012).
EMS-анализ выполнялся в трех вариантах:
-
1) ординация матрицы присутствия-отсутствия за счет взаимного усреднения (reciprocal averaging) (Leibold, Mikkelson, 2002);
-
2) ординация матрицы вдоль экологических градиентов (Presley et al., 2010);
-
3) для учета нелинейности каждый градиент разбивался на интервалы, границы которых принимались по точкам перегиба loess-кривой, а затем EMS-анализ выполнялся отдельно для каждого такого интервала внутри градиента.
Программа Turnover также вычисляет индекс Score для каждой учетной точки и для каждого вида, означающий координату данной точки по первой оси взаимного усреднения.
Для оценки роли видов с низкой распространенностью проводилось пошаговое удаление самых редких видов. Все 54 вида были ранжированы по числу занятых точек, а затем последовательно исключалось по 5 видов с наименьшей встречаемостью. Для каждого полученного подмножества выполнялся полный EMS-анализ с ординацией матрицы методом взаимного усреднения.
В работе использован пространственно явный подход. Под «пространственным масштабом» понимается размер зерна (grain size). Экстент оставался постоянным на всех этапах анализа. Для сравнительного анализа экологического пространства в нескольких пространственных масштабах из 28 исходных переменных использовались только 15, вычисленных для зерна размером 100 м, 1 км, 2 км и 5 км. Сокращение числа переменных связано с невозможностью выделения некоторых градиентов на всех пространственных масштабах.
Латинские названия птиц приводятся в соответствии с IOC World Bird List Version 15.1 (2025).
Результаты
Основные экологические градиенты
Выделено 9 главных компонент, на долю которых приходится 79.4 % объясненной дисперсии. Наибольший вклад вносят: ин- декс увлажнения MNDWI, мозаичность (Patch Density), высота местности над уровнем моря, индекс NDVI, площадь промпло-щадок, длина дорог и длина побережья Обской губы в пределах буфера 100 м. Значимый вклад вносит также среднесуточная температура в первой половине июля. Переменная «расстояние до озер» не попала ни в одну из главных компонент и имеет очень высокую уникальность.
Организация экологического пространства в зависимости от пространственного разрешения
Кросс-масштабный анализ с помощью метода главных компонент выявил монотонное снижение размерности экологического пространства: от 5 главных компонент для зерна 100 м до 1 компоненты для зерна 5 км. При этом происходит также незначительное снижение кумулятивной объясненной дисперсии. Вместе с этим при переходе от зерна 100 м к зерну 5 км возрастает доля объясненной дисперсии, приходящейся на первую главную компоненту (табл. 1).
Таблица 1. Снижение размерности экологического пространства с увеличением пространственного масштаба. Для пространственного разрешения 100 м, 1 км и 2 км использованы 15 экологических переменных, но для пространственного разрешения 5 км использованы только 9 экологических переменных, т. к. добавление остальных градиентов в модель приводит к резкому снижению качества модели, что связано с потерей ковариации локальных градиентов, конфликтом градиентов и преобладанием статистического шума
|
Главные компоненты |
Объясненная дисперсия |
|||
|
Сетка точек с буфером 100 м |
Сетка со стороной ячейки 1 км |
Сетка со стороной ячейки 2 км |
Сетка со стороной ячейки 5 км |
|
|
PC1 |
0.221 |
0.281 |
0.326 |
0.651 |
|
PC2 |
0.183 |
0.198 |
0.214 |
– |
|
PC3 |
0.176 |
0.180 |
0.183 |
– |
|
PC4 |
0.101 |
0.104 |
– |
– |
|
PC5 |
0.087 |
– |
– |
– |
|
Кумулятивная объясненная дисперсия |
0.767 |
0.763 |
0.724 |
0.651 |
На уровне зерна 5 км происходит разрушение ковариации между градиентами среды: природные градиенты объединяются в одну главную компоненту, связанную с осью «внутренняя часть полуострова Ямал – побережье Обской губы», а антропогенные градиенты выпадают из модели, т. к. представляют собой небольшие независимо распределенные точечные объекты. Также из модели выпадают «длина рек» и «площадь сырых тундр».
Связь видового богатства птиц и основных экологических градиентов с учетом пространственного масштаба
С увеличением пространственного разрешения наблюдается нелинейное уменьшение числа статистически значимых градиентов, определяющих видовое богатство: от 12 для зерна 100 м до 3 для зерна 5 км. При пространственном разрешении 2 км число значимых градиентов снижается до нуля. Сходным образом изменяется число значимых градиентов, имеющих нелинейные отклики для видового богатства. Средняя объясненная дисперсия для значимых градиентов возрастает от зерна 100 м к зерну 5 км, но с падением до нуля на уровне зерна 2 км (рис. 2).
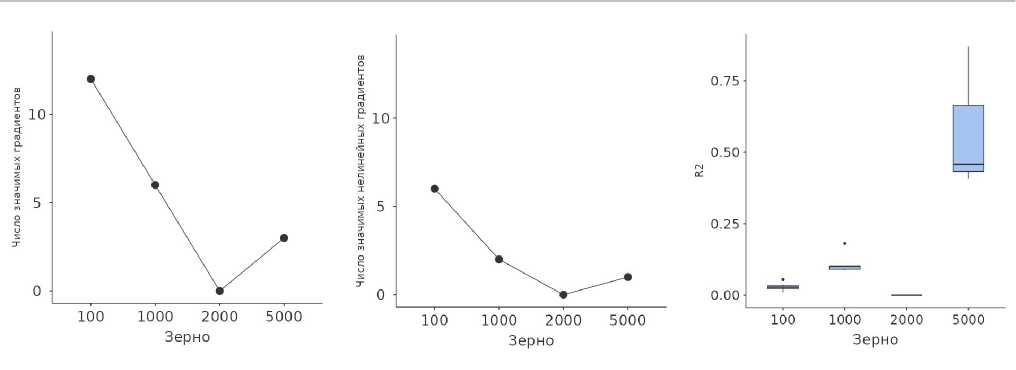
Рис. 2. Связь видового богатства и градиентов среды (всего 15 градиентов). Слева – число значимых градиентов, определяющих видовое богатство, по центру – число значимых нелинейных градиентов, справа – значения R2 для значимых градиентов
Fig. 2. Relationship between species richness and environmental gradients (15 gradients in total). On the left is the number of significant gradients determining species richness; in the center is the number of significant nonlinear gradients; on theright is R2 values for significant gradients
Стохастичность структуры метасообщества птиц на северо-востоке Ямала
EMS-анализ для зерна 100 м, 1 км и 5 км при ординации матрицы присутствия-отсутствия за счет взаимного усреднения показывает, что когерентность (индекс EmbAbs) отсутствует, а индекс C-Turn статистически не значим. Это соответствует случайному паттерну, но это не означает, что метасообщество собрано наугад.
Для зерна 2 км выявлена значимая положительная когерентность, индекс C-Turn статистически значим, но индекс Мориситы не значим, что соответствуют градиенту Глисона, при котором виды постепенно замещают друг друга вдоль экологических градиентов. Тенденция к отрицательной значимости индекса Мориситы указывает на то, что вдоль основной оси метасообщества виды хоть и распределены независимо друг от друга, но наблюдается тенденция к равномерному градиенту.
EMS-анализ, выполненный только для антропогенных объектов и 500-метровой буферной зоны вокруг них, показывает, что антропогенная нагрузка создает структуры, соответствующие квази-глисоновскому градиенту. Индекс C-Turn выше случайного и практически достигает значимости, что говорит о заметном вкладе оборота видов (turnover) в структуру метасообщества. Индекс Мориситы незначим, что указывает на отсутствие группировки видов в блоки, которые в пространстве замещают друг друга. EMS-анализ, выполненный только для точек, расположенных за пределами буферной зоны в 500 метров от антропогенных объек- тов, показал аналогичные результаты, что и для полного метасообщества, – случайный паттерн.
Роль редких видов в формировании метасообщества птиц
Анализ рассчитанных индексов для зерна 100 м показывает хорошо выраженный фазовый переход в структуре метасообщества (рис. 3):
Фаза 1. Стохастичность, управляемая редкими видами (0–5 удаленных видов). В составе полного метасообщества присутствует большое число редких видов, случайным образом выбирающих подходящие местообитания, что создает разрывы в видовых диапазонах. Это разрушает когерентность, маскируя детерминированную структуру, что генерирует паттерн, статистически не отличимый от случайного.
Фаза 2. Проявление детерминированного ядра метасообщества (10–30 удаленных видов). При удалении уже 10 редких видов остаются виды с более широкими и сплошными видовыми диапазонами, что приводит к появлению положительной когерентности и соответствует градиенту Глисона.
Фаза 3. Упорядоченная смена видов без когерентности (удаление 35 видов). Когда в составе метасообщества остается менее 20 видов, их видовые диапазоны перекрываются, а когерентность статистически исчезает. Формально, следуя логике EMS-анализа, такой паттерн можно отнести к случайному, но статистическая значимость индекса C-Turn свидетельствует о хорошо выраженном обороте видов без значимой группировки видо- вых диапазонов в блоки, что соответствует градиенту Глисона. Отсутствие значимой когерентности еще не означает истинную случайность.
Фаза 4. Проявление градиента Клементса (удаление 40 видов). При удалении 40 самых редких видов остается ядро с широкими видовыми диапазонами, которые формируют выраженные блоки, сменяющие друг друга в пространстве.
Фаза 5. Возврат к градиенту Глисона (удаление 45 видов). При значительном сокращении числа редких видов метасообщество вновь соответствует градиенту Глисона. Это указывает на то, что оставшиеся виды имеют широкие, но упорядоченные диапазоны без блоковой структуры. Диапазоны этих видов хоть и широки, выстраиваются в четкую последовательность, восстанавливая статистически значимый градиент Глисона.
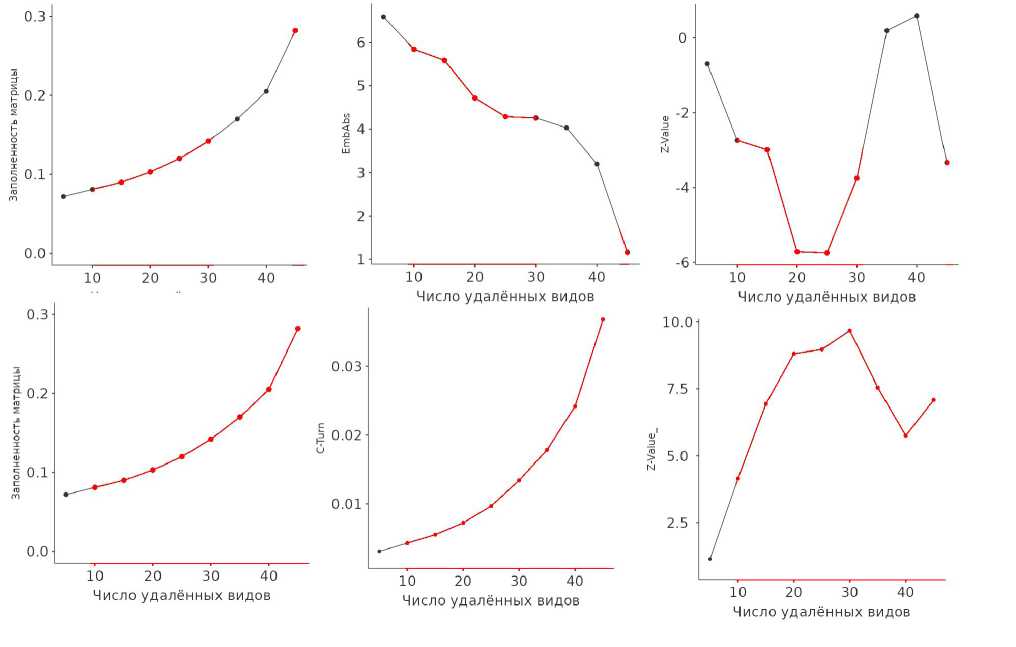
Рис. 3. Параметры метасообщества при пошаговом удалении редких видов на уровне точек с буфером 100 м. Красным цветом на графиках оказаны значимые значения индексов EmbAbs и C-Turn
Fig. 3. Metacommunity parameters with step-by-step removal of rare species at the point level with a 100 m buffer. Significant values of the EmbAbs and C-Turn indices are shown in red on the graphs
Для пространственного масштаба 1 км значимая когерентность, значимый оборот видов при незначимом индексе Мориситы (градиент Глисона) проявляется только при удалении 30 и 35 самых редких видов. Для индекса C-Turn характерна тенденция роста от полного метасообщества (0 удаленных видов) до метасообщества с 35 удаленными видами. По мере дальнейшего удаления видов значения индекса C-Turn снижаются.
Для пространственного масштабе 2 км также наблюдается рост значений индекса C-Turn от полного метасообщества до метасообщества с 30 удаленными видами, но, в отличие от зерна 1 км, для зерна 2 км значимая когерентность выявлена только для пол- ного метасообщества. При удалении 30 самых редких видов наблюдается тенденция к значимой положительной когерентности, но индекс EmbAbs не достигает статистической значимости.
Связь заполненности матриц присутствия-отсутствия и когерентности
Заполненность матрицы присутствия-отсутствия – это функция от ширины видовых диапазонов отдельных видов и размера самой матрицы. Для зерна 100 м значимые значения индекса EmbAbs находятся в диапазоне заполненности от 8 до 14 %, а также на уровне 28 %. Для зерна 1 км значимые значения индекса EmbAbs находятся в диапазоне заполненности от 52.9 до 59.1 %, для зерна 2 км значимые значения индекса EmbAbs выявлены только для значения заполненности 31 %.
Роль экологических градиентов в структуре метасообщества птиц на северо-востоке Ямала
Анализ структуры метасообщества, выполненный с помощью EMS при ординации матрицы присутствия-отсутствия вдоль основных экологических градиентов при разном пространственном разрешении, выявил сложную и неоднородную картину. Глобальный паттерн, доминирующий в большинстве случаев, соответствует случайному: для 7 из 15 выделенных экологических градиентов структура метасообщества соответствует случайному типу для всех размеров зерна. Только для двух градиентов из 15 неслучайные паттерны отмечены для трех пространственных разрешений: NDVI и высота местности над уровнем моря.
Для зерна 100 м детерминированные паттерны (градиент Глисона и квази-вложенность) характерны для 4 из 15 градиентов. Для зерна 1 км выделено 3 из 15 градиентов, для которых выявлены градиент Глисона, квази-глисоновский градиент и квази-вложенность. Для зерна 2 км выявлено
7 из 15 градиентов с детерминированными паттернами (квази-вложенность и квази-глисон). Для зерна 5 км ни один из паттернов не достигал значимости (случайный паттерн).
Для внутренней структуры метасообщества (ось Score) сила корреляции с основными экологическими градиентами зависит от пространственного разрешения (рис. 4). Так, для зерна 100 м выявлено 10 случаев корреляции из 15 градиентов, однако сила этих корреляций слаба и модули значений коэффициентов корреляции Спирмена находятся в диапазоне 0.080–0.243. Для зерна 1 км число значимых коэффициентов корреляции сохраняется (10 из 15), но сила корреляции значительно возрастает и модули коэффициентов корреляции находятся в диапазоне 0.290–0.743. Для зерна 2 км число статистически значимых коэффициентов корреляции снижается и составляет 8 из 15, но сила корреляции возрастает, а модули коэффициентов корреляции Спирмена находятся в диапазоне 0.421–0.769. Для зерна 5 км число значимых корреляций между внутренней осью Score метасообщества и градиентами среды снижается до 4 из 15, тогда как модули значений коэффициентов корреляции Спирмена достигают максимальных значений и находятся в диапазоне 0.709–0.806.
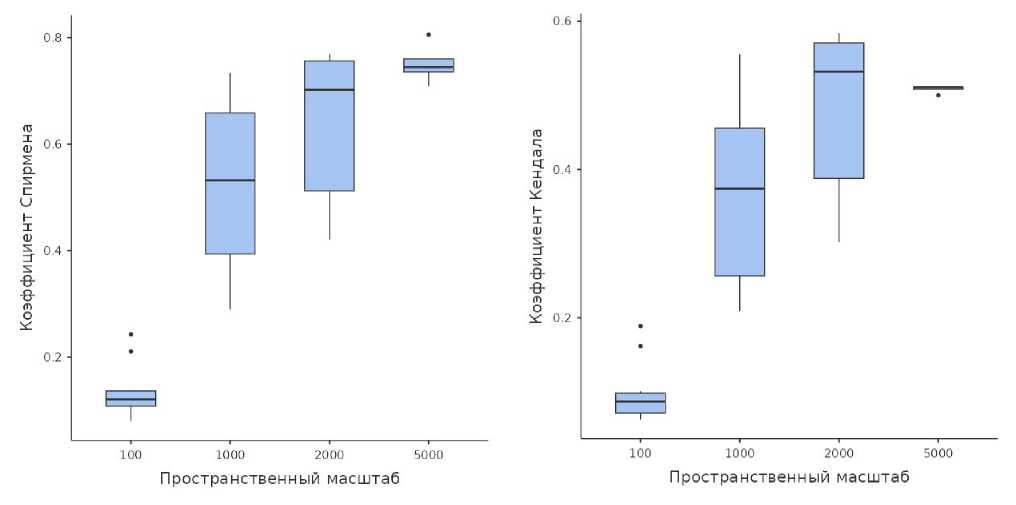
Рис. 4. Масштабная зависимость значимых коэффициентов корреляции между внутренней структурой метасообщества (ось Score) и градиентами среды. Значения коэффициентов корреляции Спирмена и Кендала показана в виде «ящиков с усами». По оси «х» цифрами 100, 1000, 2000 и 5000 показан размер зерна, соответственно 100 м, 1 км, 2 км и 5 км
Fig. 4. Large-scale relationship of significant correlation coefficients between the internal structure of the metacommunity (Score axis) and environmental gradients. The values of the Spearman and Kendall correlation coefficients are shown in the form of "boxes with whiskers". On the x - axis, the numbers 100 , 1000 , 2000 , and 5000 indicate the grain size , corresponding to 100 m , 1 km , 2 km, and 5 km, respectively
Наиболее важные градиенты, влияние которых проявляется для всех пространственных разрешений, связаны с водным режимом местности: высота местности над уровнем моря, MNDWI и площадь водоемов. Также важными градиентами, сохраняющими свое влияние на 3 из 4 пространственных разрешений, являются: площадь промпло-щадок, площадь сухих тундр, расстояние до вахтового поселка, расстояние до побережья Обской губы, а также NDVI. Вместе с тем градиенты длина рек, площадь песчаных площадок и карьеров, расстояние до аэропорта не влияют на внутреннюю структуру метасообщества (ось Score) ни на одном из пространственных масштабов (корреляция не значима).
Для проверки гипотезы о том, что нелинейность откликов видового богатства на градиенты среды маскирует детерминированную структуру, некоторые градиенты были разбиты на интервалы, выделенные на основе точек перегиба loess-кривой. Затем выполнялся EMS-анализ отдельно для интервалов внутри этих экологических градиентов. Общая закономерность заключается в смене доминирующих паттернов при переходе от одного интервала градиента к другому, причем эта смена, как правило, соответствует направлению изменения видового богатства вдоль градиента. В целом для зерна 100 м детерминированные паттерны (градиент Глисона, квази-глисоновский градиент, квази-вложенность) в пределах отдельных интервалов были выявлены для 14 из 20 (70 %) проанализированных градиентов.
В абсолютном выражении стохастические паттерны (табл. 2) в пределах интервалов градиентов встречаются чаще, чем детерминированные, но детерминированные паттерны локализованы в конкретных типах трендов: в интервалах «роста» или «падения» видового богатства, что отражает процесс последовательного вселения или последовательного выпадения видов при изменении условий среды от экстремальных к оптимальным или от оптимальных к экстремальным. Так, для интервалов «роста видового богатства вдоль градиента» характерен градиент Глисона (7 случаев) или его квазиформа (1 случай). Для интервалов «падение видового богатства вдоль градиента» градиент Глисона встречается значительно реже (1 случай), а квази-глисоновский градиент чаще, чем для интервалов «роста» (4 случая). В пределах интервала «плато» ква- зи-глисоновский градиент отмечен всего 1 раз. Квази-вложенность встречается редко и также может наблюдаться в пределах интервалов «роста» (2 случая) или в интервалах «падение» (1 случай). Случайность же может наблюдаться как для интервалов «роста» (18 случаев), так и для интервалов «падение» (13 случаев), а также для интервалов «плато» (4 случая).
Отдельно стоит отметить градиент «расстояние до промплощадок». Анализ полного градиента выявляет стохастический паттерн, что может быть интерпретировано как отсутствие структуры. Однако разбиение этого градиента на три интервала (плавный рост – плавное падение – плавный рост) раскрывает иную картину: в каждом из этих трех интервалов проявляется хорошо выраженный и статистически значимый градиент Глисона. Это служит подтверждением того, что кажущаяся стохастичность на уровне полного градиента является артефактом усреднения нескольких локальных детерминированных процессов, действующих в разных частях одного и того же экологического градиента.
Для зерна 1 км для градиентов «длина дорог», «расстояние до вахтового поселка», «расстояние до дорог» и «расстояние до побережья» на уровне полного градиента выявлена случайность, но для отдельных интервалов этих градиентов наблюдались детерминированные паттерны – градиент Глисона или его квази-форма. Вложенность и квази-вложенность в пределах интервалов градиентов для зерна 1 км не встречалась. Обсуждение
Полученные результаты показывают, что метасообщество птиц на северо-востоке Ямала функционирует как иерархически организованный пространственный механизм, где на каждом пространственном масштабе реализуется специфичный набор процессов, определяющих наблюдаемую структуру.
Иерархическая организация экологического пространства и его связь с видовым богатством
Начальным функциональным модулем такого механизма является экологическое пространство, представляющее собой входной фильтр для местного пула видов. На уровне зерна 100 м этот экологический фильтр многомерен: выделено 5 главных компонент, отражающих конкурирующее влияние множества слабых градиентов, создающих многомерное поле для экологических ниш, которое сортирует виды. Вместе с
Таблица 2. Основные паттерны формирования структуры метасообщества в пределах интервалов отдельных градиентов среды. Интервалы выделены на основе точек перегиба loess-кривых. У разных градиентов может быть выделено от 2 до 4 интервалов. Интервалы выделялись только для зерна 100 и и 1 км. Для более крупных пространственных разрешений (2 км и 5 км) выделение интервалов не проводилось из-за уменьшения числа площадок для анализа. В таблице показаны только градиенты, для которых выявлены значимые детерминированные паттерны структуры метасообщества
|
Градиент |
Число интервалов в пределах градиента |
Полный градиент |
Наличие детерминированных паттернов в пределах интервалов |
Интервал 1, паттерн и тренд кривой LOESS для интервала градиента |
Интервал 2, паттерн и тренд кривой LOESS для интервала градиента |
Интервал 3, паттерн и тренд кривой LOESS для интервала градиента |
Интервал 4, паттерн и тренд кривой LOESS для интервала градиента |
|
Пространственное разрешение 100 м |
|||||||
|
Площадь озер |
2 |
Случайный |
Да |
Случайный, рост |
Квази-глисон, падение |
– |
– |
|
MNDWImean |
2 |
Случайный |
Да |
Квази-вложенность, |
Квази-глисон, паде- |
– |
– |
|
рост |
ние |
||||||
|
Случайный, |
|||||||
|
падение |
|||||||
|
NDVI mean |
2 |
Глисон |
Да |
Глисон, рост |
с последующим |
– |
– |
|
ростом, но коротким |
|||||||
|
Случайный, |
|||||||
|
падение с |
|||||||
|
Глисон, |
выходом на |
||||||
|
NDVI summa |
2 |
Глисон |
Да |
длинный |
плато и по- |
– |
– |
|
рост |
следующим слабым ро- |
||||||
|
стом |
|||||||
|
Patch Density (PD) |
3 |
Случайный |
Да |
Случайный, рост |
Глисон, рост |
Случайный, рост |
– |
|
Квази-гли- |
|||||||
|
Площадь сырых участков |
3 |
Случайный |
Да |
сон, плавное паде- |
Случайный, Случайный, плавный плавное па- |
– |
|
|
тундр |
ние почти |
рост |
дение |
||||
|
плато |
|||||||
|
Расстояние до |
4 |
Случай- |
Да |
Глисон, |
Квази-глисон, падение |
Случайный, плавный рост |
Случайный, плав- |
|
аэропорта |
ный |
рост |
ное падение |
||||
|
Расстояние до ИВПП и перрона |
2 |
Квазиглисон |
Да |
Случайный, падение |
Квази-вложенность, рост |
– |
– |
|
Расстояние до озер |
2 |
Случайный |
Да |
Случайный, падение |
Квази-глисон, плато |
– |
– |
|
Расстояние до песчаных площадок и карьеров |
3 |
Случайный |
Да |
Случайный, падение |
Квази-глисон, плавный рост |
Квази-глисон, плавное падение |
– |
|
Расстояние до побережья |
3 |
Случайный |
Да |
Случайный, рост |
Квазиглисон, падение |
Случайный, рост |
– |
При переходе к зерну 5 км происходит агрегация локальной гетерогенности и экологическое пространство сворачивается до 1 доминирующей компоненты, что отражает иерархическую организацию ландшафта (Wu, David, 2002), а вариации среды концентрируются в региональном градиенте «побережье – внутренняя часть полуострова
Ямал». Одновременно с этим происходит распад ковариационной структуры, при котором антропогенные и локальные градиенты выпадают из единой модели и становятся статистически независимыми от этого доминирующего регионального градиента. Таким образом, увеличение пространственного разрешения от 100 м до 5 км сопровождается переключением с многомерной локальной фильтрации на одномерную региональ- ную сортировку, где дискретные объекты выступают как фоновый шум относительно доминирующего природного градиента.
Такое пространственно-зависимое изменение экологического пространства определяет инверсионную динамику регуляции видового богатства: множество слабых влияний на уровне зерна 100 м >>> отбор интегральных градиентов на уровне 1 км >>> полное исчезновение связи видового богатства и градиентов на уровне 2 км >>> восстановление связи видового богатства с несколькими сильными градиентами на уровне 5 км.
Вместе с этим происходит консолидация внутренней структуры метасообщества и переход от множества слабых связей на уровне пространственного разрешения 100 м к немногим сильным связям на уровне пространственного разрешения 5 км. Кроме того, на уровне зерна 5 км нелинейные паттерны усредняются, а зависимости приближаются к линейным, что математически также усиливает силу корреляции.
Масштабно-зависимая роль редких видов
Вторым функциональным модулем выступают редкие виды птиц, выполняющие роль динамического регулятора заполнения матрицы присутствия-отсутствия. Причем функция редких видов меняется в зависимости от пространственного разрешения (зерна):
– на уровне зерна 100 м высокая доля редких видов генерирует разорванные видовые диапазоны, т. е. редкие виды из-за низкой численности не могут заселить все подходящие местообитания. Это создает эффект «фрагментационного шума», который маскирует детерминированную структуру и формирует кажущуюся стохастичность. Внешне это соответствует нейтральной теории: виды кажутся эквивалентными, а их распределение случайным. Однако более глубокий анализ показывает, что эта нейтральность может быть иллюзорной, т. к. каждый редкий вид сам по себе структурирован вдоль экологических градиентов в соответствии со своей нишей. Последовательное удаление редких видов срезает локальные пики видового богатства и обнажает хорошо выраженный градиент Глисона. Таким образом, редкие виды выступают как переключатели режимов формирования метасообщества и позволяют прояснить механизм, связывающий нишевую теорию и нейтральную модель Хаббела. Подобный же меха- низм реализуется и на уровне зерна 1 км.
– при пространственном разрешении 2 км агрегация данных выравнивает локальные пики видового богатства и обеспечивает плавную смену видового состава вдоль градиента, что и приводит к проявлению градиента Глисона уже на уровне полного метасообщества. Удаление редких видов в этом случае разрушает когерентность, и теряется последовательная смена видов вдоль градиента.
– при пространственном разрешении 5 км редкие виды практически отсутствуют, а широкие видовые диапазоны определяют переход метасообщества в режим «гомогенизации».
Таким образом, механизм формирования метасообщества переключается между режимами в зависимости от доли редких видов.
Нишевая теория и теория нейтральности – две стороны одного и того же процесса
Полученные данные также показывают, что нишевая и нейтральная (Hubbell, 2001) теории не являются альтернативными концепциями, а представляют собой два предельных случая одного и того же процесса, различающиеся соотношением между численностью особей в регионе и числом подходящих и доступных для них местообитаний. В обоих случаях виды распределены по местообитаниям в соответствии с их нишами, определяемыми телесно-поведенческой организацией видов. Различие заключается не в механизме выбора местообитаний, а в степени заполненности ландшафта особями.
Когда число особей сопоставимо с числом подходящих местообитаний, почти все пригодные участки оказываются заселенными. В этом случае видовые диапазоны становятся сплошными и наблюдается классический градиент Глисона – упорядоченная смена видов вдоль градиента. Когда число особей меньше, чем число подходящих для них местообитаний, особи выбирают одно подходящее место из множества равнопригодных. Внешне это выглядит как случайный выбор (стохастическое распределение), соответствующий нейтральной теории, но в любом случае виды выбирают местообитания в соответствии со своими нишами на основе своей телесно-поведенческой организации. Ниша вида при этом остается неизменной, но меняется лишь степень ее реализации в пространстве.
Таким образом, нейтральность – это не отсутствие нишевой сортировки, а статистический артефакт, возникающий при недо-заселенности ландшафта особями. Редкие виды создают разрывы в видовых диапазонах, которые маскируют детерминированную структуру и порождают кажущуюся случайность. С этой точки зрения нишевая и нейтральная теории описывают одну и ту же реальность, но на разных участках континуума, а переход между ними определяется размерами и заполненностью матрицы присутствия-отсутствия.
Режимы стохастичности: фрагментация и гомогенизация
Третий функциональный модуль отвечает за генерацию наблюдаемых паттернов совместного распределения видов. Стандартная процедура EMS-анализа предполагает, что при незначимой когерентности анализ останавливается и метасообщество классифицируется как случайное. Полученные данные показывают, что такой подход может приводить к ошибочным выводам, особенно в сообществах с высокой долей редких видов с узкими видовыми диапазонами, т. к. эмпирические данные указывают на три качественно различных режима стохастич-ности:
– Фрагментационная стохастичность наблюдается при размере зерна 100 м и возникает при низкой заполненности матрицы присутствия-отсутствия (6.6 %) и узких видовых диаазонах. В этом случае виды детерминированы локальными градиентами, но демографические ограничения и мозаичное распределение подходящих микроместообитаний создают разрывы в видовых диапазонах. Однако индексы совместной встречаемости Together и C-Score являются значимыми, что указывает на неслучайное распределение видов: одни виды тяготеют друг к другу, другие избегают друг друга. Кроме того, анализ интервалов градиентов показывает, что внутри полных градиентов имеются участки с детерминированными паттернами. В таких случаях EMS-анализ может давать ложный вывод о случайном паттерне формирования метасообщества, тогда как на самом деле существует детерминированная структура, маскированная фрагментацией или узостью видовых диапазонов.
– Гомогенизационная стохастичность наблюдается при размере зерна 5 км и возникает при высокой заполненности матрицы присутствия-отсутствия (49.2 %), когда боль- шинство видов присутствуют в большинстве ячеек, а видовые диапазоны становятся широкими и перекрывающимися. В этих условиях индексы EMS-анализа не могут выявить когерентность или оборот видов и метасообщество вновь классифицируется как случайное. При этом видовое богатство регулируется тремя сильными градиентами, а внутренняя структура метасообщества (ось Score) очень сильно коррелирует с этими градиентами. Случайными в таком случае являются только видовой состав и его смена вдоль градиента, но это следствие гомогенности, а не истинного отсутствия структуры.
– Истинная случайность для полного метасообщества не выявлена ни для одного из исследованных пространственных масштабов. Истинная стохастичность может быть диагностирована при одновременной не-значимости всех индексов (EmbAbs, C-Turn, Together, C-Score, Morisita, NODF), при отсутствии корреляции внутренней оси метасообщества (Score) с градиентами среды, а также при отсутствии связи видового богатства с градиентами среды.
Проведенный анализ показывает, что метасообщество птиц на северо-востоке Ямала в условиях антропогенного воздействия всегда структурировано, но характер этой структуры может меняться с масштабом и зависит от заполненности матрицы присутствия-отсутствия, соотношения ширины и степени перекрытия видовых диапазонов.
Антропогенные объекты включают локальную сортировку видов
Четвертый функциональный модуль связан с техногенной инфраструктурой, которая функционирует как локальный усилитель детерминизма. В ненарушенной тундре градиенты плавные, а редкость видов способствует маскировке структуры метасообщества. Расположенные на песчаных отсыпках антропогенные объекты создают резкие экологические контрасты на коротких дистанциях, что приводит к нишевому разделению и экологической фильтрации. Это проявляется в динамике индексов совместной встречаемости. Значимые индексы Together и C-Score при зерне 100 м отражают формирование функциональных групп видов вокруг объектов инфраструктуры и связанного с ними изменения гидрологического режима. При зерне 5 км локальные контрасты усредняются, а антропогенные объекты становятся точечными элементами, распределенными по большим территориям. В результате этого различия между такими крупными квадратами нивелируются и индексы агрегации и сегрегации становятся незначимыми.
Таким образом, антропогенные объекты не только нарушают естественную структуру метасообщества, но и выступают в качестве «детерминирующих островов» в стохастическом ландшафте, создавая мозаику из различных режимов формирования метасообщества. Кроме того, антропогенные объекты создают положительную когерентность и инициируют оборот видов, выявляющийся вблизи таких объектов, что может служить чувствительным индикатором начальных стадий трансформации метасообщества, опережающим изменения в видовом составе или богатстве.
Критический порог при пространственном разрешении 2 км: компенсаторная динамика и пик мозаичности
Пятым модулем выступает пространственное разрешение 2 км, функционирующее как иерархический порог переключения доминирующих процессов. На этом масштабе наблюдается несколько синхронизированных состояний:
– Ни один из 15 градиентов не предсказывает видовое богатство, что указывает на компенсаторную динамику. В этом случае при изменении условий среды вдоль градиента одни виды постепенно выпадают, тогда как другие появляются, что приводит к сохранению постоянства видового богатства.
– Значимый оборот и градиент Глисона. На уровне зерна 2 км видовые диапазоны становятся непрерывными, но еще не перекрываются в значительной степени, что обеспечивает статистически различимую последовательную смену видового состава.
– Максимальная структурная сложность метасообщества. Одновременная значимость индексов C-Turn, Together, C-Score свидетельствует о балансе разнонаправленных процессов: последовательной смены видов, функциональной агрегации, сегрегации и блоковой организации видов метасообщества.
В целом пространственное разрешение 2 км можно охарактеризовать как переходную зону между локальными и региональными процессами. На микроуровне (зерно 100 м) доминируют локальные процессы (микроградиенты, сортировка вдоль интервалов градиентов, случайное заселение подходящих микроместообитаний редкими видами), а на макроуровне (зерно 5 км) преоб- ладают региональные процессы (например, климат). На уровне зерна 2 км проявляются оба типа таких процессов, что приводит к ситуации, когда видовое богатство не зависит от градиентов, тогда как видовой состав де-терминированно меняется.
Предложения по расширению типологии EMS-анализа
На основе полученных данных предлагается расширить диагностическую схему для EMS-анализа, которая не останавливается при незначимости когерентности, а дополнительно анализирует индексы совместной встречаемости, корреляцию видового богатства и экологических градиентов, корреляцию внутренней оси метасообщества и градиентов, а также учитывает заполненность матрицы.
Предлагаемые паттерны формирования метасообщества имеют следующий вид:
-
1) Фрагментированный градиент Глисона – в этом случае детерминированная структура и оборот видов есть и значимы, но индекс когерентности не значим, т. е. видовые диапазоны независимо выстроены вдоль градиента, но сами эти диапазоны имеют разрывы или же они являются очень узкими, что связано с большой долей редких видов.
-
2) Фрагментационная стохастичность – для этого типа стохастичности характерны узкие и разорванные видовые диапазоны при низкой заполненности матрицы присутствия-отсутствия.
-
3) Гомогенная стохастичность – для этого типа стохастичности характерна высокая заполненность матрицы и перекрывающиеся видовые диапазоны, при которых когерентность не значима.
-
4) Истинная стохастичность (истинная случайность) – для этого типа случайного паттерна характерны незначимость всех индексов, незначимость коэффициентов корреляции видового богатства и внутренней оси метасообщества с градиентами среды.
Дополнительно необходимо анализировать отдельные интервалы градиентов с целью выявления детерминированных паттернов, которые при их объединении на уровне полного градиента могут давать случайный паттерн. В этом случае выявленная случайность может быть артефактом нелинейности, а не результатом отсутствия структуры.
Заключение
Полученные результаты показывают, что метасообщество птиц на северо-востоке Ямала представляет собой вложенные пространственные иерархии, где каждый пространственный масштаб характеризуется специфическим сочетанием механизмов регуляции видового богатства и видового состава.
Функционирование метасообщества птиц на северо-востоке Ямала определяется взаимодействием нескольких ключевых элементов (иерархическая организация экологического фильтра, доля редких видов, раз- личные режимы стохастичности и антропогенное усиление детерминированных процессов) с критическим порогом на уровне пространственного разрешения 2 км.
Видимая стохастичность может быть не результатом отсутствия структуры метасообщества, а следствием фрагментации или гомогенизации видовых диапазонов. Понимание этой сложной механики функционирования реального метасообщества требует отказа от поиска универсальных паттернов в пользу масштабно-зависимого подхода.
