
Влияние на промеры экстерьера, характеризующие мясную продуктивность мериносовых овец, полиморфизмов нового гена-кандидата FRY
Журнал: Вестник Красноярского государственного аграрного университета @vestnik-kgau
Рубрика: Зоотехния и ветеринария
Статья в выпуске: 7, 2026 года.
Бесплатный доступ
Цель исследования – определение влияния полиморфизмов гена FRY на живую массу и другие прижизненные показатели мясной продуктивности для выявления новых молекулярно-генетических маркеров, применимых при селекции овец мериносовых пород на повышение выхода баранины. Объект исследования – 9-месячные баранчики породы манычский меринос в количестве 30 голов. Для генетического анализа у баранчиков отбирали пробы крови из яремной вены (перед утренним кормлением) с использованием вакуумных систем Vacutainer® с ЭДТА. Выделение геномной ДНК (100 мкл крови) проводили набором «МагноПраймВЕТ» («НекстБио», Россия) согласно инструкции производителя. Качество ДНК контролировали спектрофотометри-чески (NanoDrop OneC, A260/A280), концентрацию измеряли на Qubit 4.0 (Invitrogen/Life Technologies, США). Получены образцы с массой ДНК 3–5 мкг. Полногеномное секвенирование баранчиков породы манычский меринос выполнено на NovaSeq 6000 (Illumina, США) с покрытием > 50×; объем данных – 54–75 Гб на парное прочтение, средняя длина рида – 153 н. п. Риды картировали на референсный геном Ovis aries (сборка ARS‑UI_Ramb_v2.0, NCBI). Однонуклеотидные полиморфизмы описали в номенклатуре HGVS. Последовательности гена FRY извлекали из полных геномов с помощью плагинов в среде R. Проанализирована структура гена FRY, расположенного на хромосоме 10. Данный ген кодирует белок, который участвует в формировании микротрубочек цитоскелета и веретена деления. В ходе анализа выявлено 214 полиморфизмов, ассоциированных с живой массой животных в возрасте 9 месяцев. Для дальнейшего изучения отобраны два однонуклеотидных полиморфизма в интронах гена: rs402517549 (позиция 29040877, ближе к 3′‑концу гена) и rs429507742 (позиция 29358679, ближе к 5′‑концу гена). При анализе выявлено, что по полиморфизму rs402517549 гомозиготы (дикие и мутантные) различались по живой массе на 22 %. Кроме того, данный полиморфизм оказался ассоциирован с высотой в холке и глубиной груди. Полиморфизм rs429507742 продемонстрировал связь с шириной зада и обхватом предплечья.
Короткий адрес: https://sciup.org/140316552
IDS: 140316552 | УДК: 636.082 | DOI: 10.36718/1819-4036-2026-7-167-179
Influence of polymorphisms of the new candidate gene FRY on the exterior measurements that characterize the meat productivity of Merino sheep
The objective of the study is to determine the effect of FRY gene polymorphisms on live weight and other lifetime meat productivity parameters in order to identify new molecular genetic markers applicable in breeding Merino sheep for increased mutton yield. The subjects of the study were 30 9-month-old Manych Merino rams. For genetic analysis, blood samples were collected from the jugular vein of the rams (before morning feeding) using Vacutainer® vacuum systems with EDTA. Genomic DNA (100 μl of blood) was isolated using the MagnoPrimeVET kit (NextBio, Russia) according to the manufacturer's instructions. DNA quality was monitored spectrophotometrically (NanoDrop OneC, A₂₆₀/A₂₈₀), and the concentration was measured on a Qubit4.0 (Invitrogen/Life Technologies, USA). Samples with a DNA mass of 3–5 μg were obtained. Whole-genome sequencing of Manych Merino rams was performed on a NovaSeq6000 (Illumina, USA) with >50× coverage; the data volume was 54–75 Gb per paired read, the average read length was 153 bp. Reads were mapped to the Ovis aries reference genome (ARS-UI_Ramb_v2.0 as-sembly, NCBI). Single-nucleotide polymorphisms were described using the HGVS nomenclature. FRY gene sequences were extracted from complete genomes using R plugins. The structure of the FRY gene, located on chromosome 10, was analyzed. This gene encodes a protein that is involved in the formation of cytoskeletal microtubules and the mitotic spindle. The analysis identified 214 polymorphisms associated with live weight in animals at 9 months of age. Two single-nucleotide polymorphisms in gene introns were selected for further study: rs402517549 (position 29040877, closer to the 3′ end of the gene) and rs429507742 (position 29358679, closer to the 5' end of the gene). The analysis revealed that for the rs402517549 polymorphism, homozygotes (wild and mutant) differed in live weight by 22 %. Furthermore, this polymorphism was associated with withers height and chest depth. The rs429507742 polymorphism demonstrated a link with rump width and forearm girth.
Текст научной статьи Влияние на промеры экстерьера, характеризующие мясную продуктивность мериносовых овец, полиморфизмов нового гена-кандидата FRY
Funding: the work was carried out with the financial support of grant No. 25-16-20051 dated 04/17/2025 at the expense of the Russian Science Foundation.
Введение. Повышение продуктивности сельскохозяйственных животных с использованием последних достижений генетики является определяющим трендом в современном животноводстве. Исследования последних лет позволили выявить ряд молекулярно-генетических маркеров, успешное использование которых в селекции привело к увеличению выхода мяса, молока, шерсти и других продуктов [1]. Селекцион- ный отбор животных с положительными аллелями некоторых генов привел к улучшению продуктивных качеств у свиней, крупного рогатого скота, птицы, овец. Для этого использовалась оценка полиморфизма таких генов, как миостатин [2], MyOD1 [3], ген гормона роста [4], полиморфизм локуса Каллипиги [5] и ряда других. Высокая эффективность применения генетических методов диктует необходимость поиска новых молекулярных маркеров для продолжения селекционного процесса, так как большинство продуктивных признаков, например выход баранины, определяются взаимодействием большого количества генов. Кроме того, ряд перечисленных генов за счет использования в селекционной работе присутствует в породах в моноаллельном варианте, что не позволят дальше использовать их в маркерной селекции [6]. Однако, чем больше генов будут вовлечены в селекционный процесс, тем больший эффект по увеличению мясной продуктивности можно ожидать в ближайшем будущем.
Для поиска новых генов-кандидатов, связанных с мясной продуктивностью у овец, мы использовали метод полногеномной оценки ассоциаций однонуклеотидных полиморфизмов с применением Illumina BeadChip 600K. В результате проведенных исследований наше внимание привлек ген FRY (Furry), расположенный на хромосоме 10 и кодирующий белок, имеющий отношение к формированию микротрубочек цитоскелета. Четыре полиморфизма в области расположения этого гена показали достоверную связь с несколькими прижизненными показателями мясной продуктивности у мериносовых овец, что стало основанием для предположения непосредственного влияния особенностей структуры гена FRY на изучаемые признаки [7]. Продуктом гена является крупный протеин, мало отличающийся по структуре у большинства животных. Его функция является ключевой в ряде внутриклеточных процессов, особенно важно участие в формировании веретена деления и обеспечении правильного расхождения хромосом в митозе [8].
Имеются и другие исследования, показывающие большую вероятность связи гена FRY с особенностями роста и развития животных. Он был предложен как ген-кандидат, связанный с отложениями жира и особенностями адаптации к климату у овец в Эфиопии [9]. Ассоциативные исследования генома в связи с шерстной продуктивностью и особенностями роста и развития овец пород Рамбулье и Суффолк обнаружили присутствие двух однонуклеотидных замен с достоверной ассоциацией в области гена FRY [10]. В работах исследователей [11] ген FRY был предложен среди генов-кандидатов, связанных с рядом продуктивных признаков у овец. Иранскими исследователями была проведена работа по поиску генов- кандидатов, связанных с выходом баранины у овец местных пород. Одним из таких генов был также признан FRY [12]. Сравнение продуктивных признаков нескольких пород овец, включая Рамбулье и Дорпер, позволило предположить связь гена FRY с ними и обосновать необходимость дальнейшего изучения его структуры [13]. Два гена - FRY и RXFP2 были определены кандидатами при оценке подписей селекции, связанных с минеральным обменом у овец [14]. Опыты по нокауту гена FRY у мышей показали существенное изменение веса особей с инактивированной копией гена [15].
Перспективной породой для использования в производстве баранины на Северном Кавказе является манычский меринос. Несмотря на то, что порода относится к тонкорунным, животные имеют крепкое телосложение с хорошо выраженными мясными формами. Бараны могут достигать живой массы 115–120 кг к зрелому возрасту, ярки тоже отличаются хорошими показателями живой массы, доходящей до 55 кг. Важным фактором использования манычских мериносов в мясном овцеводстве является их приспособленность к контрастным климатическим условиям засушливых степей, с высоким содержанием минеральных солей в воде и пище. Также животные достаточно устойчивы к различного рода заболеваниям и не требуют сложного ухода [16].
Цель исследования - изучение влияния полиморфизмов гена FRY на живую массу и другие прижизненные показатели мясной продуктивности для выявления новых молекулярногенетических маркеров, применимых при селекции овец мериносовых пород на повышение выхода баранины.
Задачи : Провести генотипирование овец мериносовых пород по полиморфным локусам гена FRY и определить частоты аллелей и генотипов в исследуемой популяции. Оценить прижизненные показатели мясной продуктивности у особей с разными генотипами по гену FRY , включая живую массу и промеры тела (косая длина туловища, обхват груди и др.). Выявить генотипы гена FRY , достоверно ассоциированные с повышенной живой массой и лучшими показателями мясности, и оценить величину эффекта этих генотипов на целевые признаки.
Объекты и методы. Работы по выделению ДНК и анализу генома выполнены в лабораториях Геномного центра Северо-Кавказского фе- дерального университета и Всероссийского научно-исследовательского института овцеводства и козоводства (ВНИИОК), являющегося филиалом Федеральной государственной бюджетной научной организации «Северо-Кавказский федеральный научный аграрный центр».
В качестве объекта исследования были выбраны 30 девятимесячных баранчиков породы манычский меринос, которые содержались в СПК им. Ленина Апанасенковского района Ставропольского края. Животных выбирали случайным методом, все они были клинически здоровы и получали смешанный рацион питания. У животных проводили оценку прижизненных параметров мясной продуктивности по промерам экстерьера. Для определения живой массы каждого баранчика перед началом дневного кормления использовали платформенные весы с точностью до 10 г. Промеры экстерьера определялись с использованием линейки и измерительной ленты. У баранчиков измеряли высоту в холке и крестце, ширину и глубину груди, ширину в плечах, ширину зада, обхват груди, пясти, плеча, предплечья и бедра. Данные сохранялись в электронных таблицах Excel для Windows (Microsoft, США).
Для выделения геномной ДНК использовали пробы крови, взятые у баранчиков перед утренним кормлением из яремной вены с соблюдением правил асептики и антисептики. Для взятия и хранения проб крови использовались вакуумные системы Vacutainer®, кровь стабилизировалась с помощью ЭДТА (Becton Dickinson International, США). Для выделения ДНК в условиях лаборатории отбирали 0,1 мл крови и дальнейший процесс осуществляли с применением коммерческого набора реактивов для экстракции нуклеиновых кислот «МагноПрайм ВЕТ» (НекстБио, Россия). Условия соблюдали согласно приложенной инструкции производителя. Контроль качества выделения нуклеиновых кислот по соотношению оптических плотностей при длинах волн 260/280 нм проводили на спектрофотометре NanoDrop OneC (ThermoFisher Scientific, Inc., США). Концентрацию выделенной ДНК в растворе буфера оценивали с использованием оборудования Qubit 4.0 (Invitrogen/Life Technologies, США). В результате для последующего анализа были получены образцы ДНК с массой от 3 до 5 мкг.
Полногеномное секвенирование образцов ДНК манычских мериносов проводили с исполь- зованием геномного секвенатора NovaSeq 6000 (Illumina, Inc., США). Были получены данные секвенирования в размере 54–75 Гб на прямое и обратное прочтение, что соответствовало покрытию больше 50х. Средняя длина прочтенного фрагмента (рида) составила 153 нуклеотида. Для картирования ридов на референсный геном Ovis aries использована последняя на момент исследования сборка ARS-UI_Ramb_v2.0 NCBI (National Center for Biotechnology Information). Выявленные однонуклеотидные полиморфизмы описаны с применением номенклатурной терминологии HGVS (Human Genome Variation Society). Для изучения структуры ДНК выбранного гена FRY его последовательности для всех исследуемых баранчиков извлекались из полных сборок геномов при помощи плагинов в среде программирования «R». Статистическую обработку после оценки нормальности распределения данных по тесту Шапиро-Уилка выполняли с использованием t-критерия Стьюдента для разных групповых дисперсий в Excel для Windows (Microsoft, США). Различия между группами считали достоверными при p < 0,05.
Результаты и их обсуждение. На первом этапе исследования проводился анализ структуры участков ДНК, соответствующих локализации гена FRY и фланкирующих его областей размером 500 п. н., извлеченных из полученных данных полногеномного секвенирования. В изучаемом локусе выявлено 4 806 полиморфизмов, представленных как однонуклеотидными заменами, так и различными по длине инсерциями и делециями. Транслокаций и инверсий не выявлено. К обнаруженным полиморфизмам применялся фильтр для отсеивания имеющих низкую частоту встречаемости минорного аллеля (меньше 0,05). В результате для дальнейшего исследования был использован 2 701 локус.
Вторым этапом исследования выполнен поиск ассоциаций полиморфизмов в составе гена FRY c живой массой баранчиков породы манычский меринос. Для этого по каждому изучаемому полиморфизму животные разбивались на три группы: носители дикого гомозиготного генотипа, гетерозиготы и имеющие мутантный гомозиготный генотип. Мутантными обозначались аллели, альтернативные референсному геному из базы данных NCBI. Аллели, совпадающие с референсом, обозначались как «дикие». Показатели живой массы сравнивались между группами и выбирались полиморфизмы, носители разных генотипов по которым достоверно различались между собой. Всего в гене FRY у манычских мериносов обнаружено 214 таких полиморфизмов. Для дальнейшей оценки связи с другими показателями мясной продуктивности, кроме живой массы, мы выбрали два полиморфизма, расположенных в начале и в конце последовательности нуклеотидов гена FRY с учетом того, что кодирующая последова- тельность расположена на обратной цепи ДНК и позиция в гене отсчитывается от большей к меньшей. Это были две однонуклеотидные замены в позициях 29358679 и 29040877 на хромосоме (рис.).
Результаты исследования ассоциаций с показателями мясной продуктивности манычских мериносов, имеющих разные генотипы по замене в позиции 29040877, приведены в таблице 1.
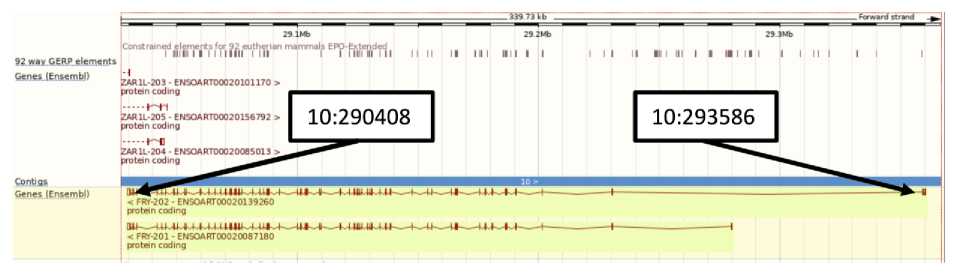
Расположение исследуемых однонуклеотидных полиморфизмов в гене FRY у овец породы манычский меринос (геномный браузер Ensembl) The location of the studied single-nucleotide polymorphisms in the FRY gene in Manych merino sheep (Ensembl genomic browser)
Таблица 1
Показатели мясной продуктивности овец породы манычский меринос с разными генотипами по полиморфизму гена FRY в позиции 29040877
Indicators of meat productivity of Manchurian Merino sheep with different genotypes based on the polymorphism of the FRY gene at position 29040877
|
Показатель |
Дикие гомозиготы, n = 9 |
Гетерозиготы, n = 16 |
Мутантные гомозиготы, n = 5 |
|||
|
M ± m |
Cv, % |
M ± m |
Cv, % |
M ± m |
Cv, % |
|
|
1 |
2 |
3 |
4 |
5 |
6 |
7 |
|
Живая масса, кг |
55,2 ± 2,55 |
13,05 |
49,39 ± 2,20 |
17,29 |
42,91 ± 2,05**# |
9,54 |
|
Высота в холке, см |
65,51 ± 0,69 |
2,96 |
63,88 ± 0,29* |
1,76 |
62,62 ± 0,31**## |
1,02 |
|
Высота в крестце, см |
67,56 ± 0,69 |
2,88 |
66,38 ± 0,39 |
2,26 |
64,60 ± 0,91* |
2,81 |
|
Ширина груди, см |
24,22 ± 0,29 |
3,41 |
23,48 ± 0,22* |
3,66 |
23,10 ± 0,36* |
3,17 |
|
Глубина груди, см |
29,31 ± 0,50 |
4,84 |
28,45 ± 0,38 |
5,18 |
26,88 ± 0,42**# |
3,12 |
|
Ширина в плечах, см |
22,78 ± 0,47 |
5,82 |
21,56 ± 0,28* |
5,10 |
20,90 ± 0,37* |
3,55 |
|
Ширина зада, см |
16,03 ± 0,34 |
6,06 |
15,48 ± 0,24 |
5,91 |
15,11 ± 0,33 |
4,32 |
|
Обхват груди, см |
94,12 ± 1,65 |
4,97 |
91,68 ± 1,39 |
5,86 |
89,15 ± 1,41* |
3,17 |
|
Обхват пясти, см |
8,78 ± 0,29 |
9,49 |
8,38 ± 0,23 |
10,57 |
8,12 ± 0,02* |
1,22 |
Окончание табл. 1
|
1 |
2 |
3 |
4 |
5 |
6 |
7 |
|
Обхват предплечья, см |
13,94 ± 0,55 |
11,15 |
13,03 ± 0,36 |
10,64 |
11,25 ± 0,67* |
11,97 |
|
Обхват плеча, см |
23,72 ± 0,73 |
8,75 |
22,62 ± 0,40 |
6,87 |
21,48 ± 0,56* |
5,21 |
|
Обхват бедра, см |
38,99 ± 0,76 |
5,55 |
38,15 ± 0,60 |
6,06 |
39,11 ± 0,92 |
4,68 |
|
Косая длина туловища, см |
62,67 ± 1,36 |
6,14 |
60,72 ± 1,03 |
6,55 |
58,31 ± 2,13 |
7,32 |
Здесь и далее : Cv – коэффициент вариации. Достоверность различий с группой носителей дикого гомозиготного генотипа обозначена: * – р < 0,05, ** – p < 0,01; достоверность различий с группой носителей гетерозиготного генотипа обозначена: # – p < 0,05, ## – p < 0,01.
Живая масса баранчиков породы манычский меринос в возрасте девяти месяцев достоверно не различалась между носителями диких гомозиготных и гетерозиготных генотипов. При этом вариабельность показателя обоих группах была умеренной. Животные с мутантным гомозиготным генотипом по изучаемой замене имели достоверно меньшую живую массу по сравнению с двумя другими группами. Вариабельность параметра у них была низкой, а разница в средних показателях с группой диких гомозигот составила 22,4 %, что является существенным изменением.
Высота в холке оказалась достаточно стабильным показателем в каждой группе, коэффициенты вариации характеризовались очень низкими значениями, доходя до 1 % у мутантных гомозигот. По этому параметру наибольшая величина обнаруживалась у диких гомозигот, наименьшая – у мутантных. При этом все три группы достоверно различались между собой, хотя абсолютная величина различий была небольшой, составив 4,4 % между дикими и мутантными гомозиготами.
Показатель высоты в крестце не имел достоверных различий между животными из группы диких гомозигот и гетерозигот. Мутантные гомозиготы имели достоверно меньшую высоту в крестце, чем дикие гомозиготы, на 4 %. Для этого показателя также отмечена низкая вариабельность внутри групп, которая между группами практически не отличалась.
Ширина груди также оказалась наибольшей у носителей дикого гомозиготного генотипа, почти на 5 % превышая показатели в группе мутантных гомозигот. По этому параметру гетерозиготы от мутантных гомозигот достоверно не различались. Вариабельность признака внутри групп оставалась низкой, почти не отличаясь от группы к группе.
По глубине груди не выявлено достоверных различий между животными с диким гомозиготным и гетерозиготным генотипами по изучаемым полиморфизмам. Мутантные гомозиготы показали достоверно меньшую величину этого параметра, различие с дикими гомозиготами достигало 8,4 %. Коэффициенты вариации превышали таковые для двух ранее описанных признаков, но между группами отличались мало и относились к категории низких.
Достоверно наибольшая ширина в плечах обнаружена у животных с диким гомозиготным генотипом. Разница с носителями мутантного гомозиготного генотипа составила 8,14 %. Животные с гетерозиготным генотипом достоверно не отличались от мутантных гомозигот. Вариабельность признака во всех трех группах находилась практически на одном уровне и не превышала 6 %.
Показатели ширины зада у баранчиков породы манычский меринос достоверно не отличались между группами, при этом вариабельность признака во всех группах оставалась низкой.
Носители мутантного гомозиготного генотипа характеризовались достоверно наименьшим обхватом груди. Разница с дикими гомозиготами составила 5,22 %. Дикие гомозиготы по этому показателю достоверно не отличались от гетерозигот. Вариабельность признака оказалась низкой во всех трех группах.
Обхват пясти также был достоверно наименьшим у носителей мутантного гомозиготного генотипа. При этом мутантные гомозиготы имели этот параметр на 8,67 % меньше, чем дикие гомозиготы. Коэффициенты вариации у диких гомозигот и гетерозигот можно оценить как средние по величине, а у мутантных гомозигот вариабельность признака была низкой, чуть больше 1 %.
Размер окружности предплечья имел среднюю вариабельность во всех трех группах обследованных животных. Дикие гомозиготы достоверно не отличались от гетерозигот по обхвату предплечья. Носители мутантного гомозиготного генотипа имели достоверно меньший обхват, на 19,27 % меньше, чем у диких гомозигот.
Похожая тенденция выявлена и для обхвата плеча. Этот показатель характеризовался достоверно наименьшим значением у носителей мутантного гомозиготного генотипа, составив разницу в 9,46 % по сравнению с дикими гомозиготами. Вариабельность признака в группах можно охарактеризовать как низкую. Дикие гомозиготы достоверно не отличались от гетерозигот по обхвату плеча.
Показатели обхвата бедра и косой длины туловища имели низкую вариабельность во всех трех группах манычских мериносов. Средние значения показателей достоверно не различались между носителями всех трех вариантов генотипа.
Таким образом, во всех параметрах наблюдается тенденция уменьшения средних значений от диких гомозигот к мутантным, что подтверждается статистическими данными и снижением коэффициентов вариации у мутантных групп. Особенно выражено снижение в таких измерениях, как обхват предплечья и пясти, живая масса и высота, а также параметры, связанные с шириной и длиной тела. Значимость этих различий варьируется от высокой (например, живая масса и длина тела) до отсутствия достоверных различий (обхват бедра, косая длина туловища).
Показатели достоверности ассоциаций полиморфизма в позиции 29358679 с изученными нами прижизненными показателями мясной продуктивности, основанными на оценке параметров экстерьера, приведены в таблице 2.
Таблица 2
Показатели мясной продуктивности овец породы манычский меринос с разными генотипами по полиморфизму гена FRY в позиции 29358679
Indicators of meat productivity of Manchurian Merino sheep with different genotypes based on the polymorphism of the FRY gene at position 29358679
|
Показатель |
Дикие гомозиготы, n = 16 |
Гетерозиготы, n = 11 |
Мутантные гомозиготы, n = 3 |
|||
|
M±m |
Cv, % |
M±m |
Cv, % |
M±m |
Cv, % |
|
|
1 |
2 |
3 |
4 |
5 |
6 |
7 |
|
Живая масса, кг |
52,59 ± 2,25 |
16,54 |
48,68 ± 2,44 |
15,86 |
41,53 ± 1,06**# |
3,61 |
|
Высота в холке, см |
64,86 ± 0,43 |
2,55 |
63,48 ± 0,44* |
2,17 |
62,88 ± 0,72* |
1,63 |
|
Высота в крестце, см |
67,12 ± 0,48 |
2,77 |
65,82 ± 0,58 |
2,79 |
65,11 ± 0,71* |
1,54 |
|
Ширина груди, см |
23,96 ± 0,22 |
3,62 |
23,51 ± 0,23 |
3,04 |
22,29 ± 0,35**# |
2,22 |
|
Глубина груди, см |
29,05 ± 0,41 |
5,32 |
27,7 ± 0,4 |
4,52 |
27,96 ± 1,27 |
6,42 |
|
Ширина в плечах, см |
22,31 ± 0,33 |
5,78 |
21,36 ± 0,33 |
4,92 |
20,83 ± 0,74 |
5,01 |
|
Ширина зада, см |
16,06 ± 0,22 |
5,29 |
15,25 ± 0,19** |
3,88 |
14,25 ± 0,31**# |
3,04 |
|
Обхват груди, см |
93,65 ± 1,55 |
6,41 |
90,69 ± 0,81 |
2,84 |
87,85 ± 0,69**# |
1,12 |
|
Обхват пясти, см |
8,75 ± 0,24 |
10,64 |
8,18 ± 0,13 |
4,94 |
7,67 ± 0,41 |
7,53 |
|
Обхват предплечья, см |
13,77 ± 0,38 |
10,76 |
12,27 ± 0,49* |
12,64 |
11,67 ± 0,57** |
6,89 |
Окончание табл. 2
|
1 |
2 |
3 |
4 |
5 |
6 |
7 |
|
Обхват плеча, см |
23,27 ± 0,43 |
7,11 |
22,34 ± 0,57 |
8,12 |
21,62 ± 1,49 |
9,72 |
|
Обхват бедра, см |
38,38 ± 0,63 |
6,42 |
38,9 ± 0,41 |
3,31 |
38,31 ± 2,65 |
9,77 |
|
Косая длина туловища, см |
61,5 ± 1,12 |
7,04 |
60,68 ± 1,27 |
6,64 |
58,50 ± 2,47 |
5,98 |
По сравнению с дикими гомозиготами носители мутантного генотипа имеют значительно меньшую живую массу, снижение составляет около 21,1 % (P = 0,014). Коэффициенты вариации в трех группах распределены неравномерно: 16,54; 15,86 и 3,61 %, что указывает на умеренную вариабельность разброса данных, особенно низкую у мутантных гомозигот. Достоверных различий по живой массе между носителями дикого гомозиготного и гетерозиготного генотипов выявить не удалось.
Высота в холке у диких гомозигот превышает показатели гетерозигот примерно на 2,4 %, при этом различие статистически значимо (P = 0,027). Мутантные особи имеют еще более меньшую высоту – снижение примерно на 3,1 % относительно диких. Коэффициенты вариации близки и находятся на низком уровне, что свидетельствует о высокой однородности внутри групп. Различия между группами широко не выражены, но тенденция к снижению высоты в холке у носителей мутантного аллеля имеется.
Дикие гомозиготы имеют высоту в крестце, достоверно не отличающуюся от носителей гетерозиготного генотипа. Мутантные гомозиготы показывают снижение этого признака на 3 % по сравнению с дикими гомозиготами. Коэффициенты вариации у всех групп находятся в диапазоне от 1,54 до 2,79 %, что говорит о хорошей однородности и отсутствии сильных вариаций внутри групп.
Разница по ширине груди между дикими гомозиготами и гетерозиготами не достигает уровня статистической значимости (P = 0,155). Мутантные гомозиготные особи демонстрируют снижение ширины груди на 6,9 % по сравнению с дикими гомозиготами, что статистически значимо (P = 0,006). Коэффициенты вариации в группах колеблются от 2,22 до 3,62 %, показывая достаточно низкую внутреннюю вариабельность и стабильность данных.
Глубина груди достоверно не различалась в нашем исследовании между носителями раз- личных аллельных вариантов по изучаемому полиморфизму. Внутри групп низкие коэффициенты вариации – 5,32; 4,52 и 6,42 %, что свидетельствует о хорошей однородности и стабильности.
Показатель ширины в плечах, как и глубина груди, не показал достоверных различий по величине между исследованными группами животных. Коэффициенты вариации демонстрируют характер стабильных данных внутри групп и относятся к низкому уровню вариабельности.
У диких гомозигот средняя ширина зада равна 16,06 см, у гетерозигот – 15,25 см, снижение составило около 5 %, что статистически значимо (P = 0,007). Мутантные гомозиготные особи имеют еще меньшую ширину зада – 14,25 см, снижение более 11 % по сравнению с дикими гомозиготами, с достаточно высокой статистической значимостью (P = 0,028). Вариабельность внутри групп от 5,29 до 3,04 %, что подчеркивает стабильность измерений и низкий уровень разброса данных.
Группы диких гомозигот и гетерозигот достоверно не отличаются по средним показателям обхвата груди: дикие гомозиготы – 93,65 см, гетерозиготы – 90,69 см. Мутантные гомозиготы демонстрируют снижение на 6,1 % по сравнению с дикими гомозиготами, до 87,85 см, что является статистически значимым (P = 0,002). Коэффициенты вариации низкие – 6,41; 2,84 и 1,12 %, что говорит о высокой однородности в группах по этому признаку.
Между дикими гомозиготами и гетерозиготами не наблюдается достоверное снижение обхвата пясти. Мутантные гомозиготные особи также не показывают отличий, по сравнению с дикими гомозиготами. Коэффициенты вариации в диапазоне от 10,64 % у диких гомозигот и до 4,94 % у гетерозигот, что говорит о более стабильных значениях показателя у гетерозигот.
Наибольшая разница по обхвату предплечья наблюдается у мутантных гомозигот по сравнению с дикими – около 15 % (P = 0,021). Мутант- ные гомозиготы при этом статистически достоверно не отличаются от гетерозигот. Внутри групп коэффициенты вариации составляют от 6,89 до 12,64 %, что можно отнести к низкому уровню.
Три параметра – обхват плеча, обхват бедра и косая длина туловища в нашем исследовании не показали достоверных различий между группами животных с разными генотипами по замене в позиции 29358679 гена FRY . Также стоит отметить, что коэффициенты вариации этих параметров в группах также мало отличались и показывали низкий уровень вариабельности в выборках.
Общая картина показывает, что при сравнении трех групп большинство морфометрических признаков демонстрируют снижение значений от диких к мутантным гомозиготам, особенно заметное в параметрах, связанных с костными обхватами и шириной туловища. Статистическая значимость подтверждает, что наличие мутантного генотипа оказывает влияние на эти характеристики. Внутри групп коэффициенты вариации указывают на высокую стабильность измерений и умеренную внутреннюю вариативность.
Результаты и их обсуждение. Нами проведено исследование структуры перспективного гена-кандидата FRY для выявления полиморфизмов, ассоциированных с прижизненными параметрами мясной продуктивности у овец породы манычский меринос. Данные о структуре гена у 30 баранчиков извлечены из базы данных полногеномного секвенирования с использованием специализированного программного обеспечения. По имеющимся данным, ген FRY является достаточно консервативным геном, мало меняющим свою структуру в эволюционном плане от низших насекомых до млекопитающих [17]. Полученный результат показал, что в составе гена у овец имеется достаточно большое количество полиморфизмов разных типов, распределенных по всей его длине. Часть из них встречается очень редко, частота минорного аллеля составляет меньше 5 %. То есть в нашей выборке они присутствовали у 1–2 голов, и провести ассоциативный анализ с достоверным результатом не представляется возможным. Соответственно, такие полиморфизмы отфильтровывались и не использовались в дальнейшем анализе. После предварительной оценки связи наличия отдельных полиморфизмов с живой массой баранчиков нами были выбраны две однонуклеотидных замены с целью выявления ассоциаций с другими признаками мясной продуктивности. В результате обнаружена связь этих полиморфизмов с большинством исследованных параметров экстерьера. Это открывает возможность использования их в качестве молекулярно-генетических маркеров для селекции как по живой массе, так и по определенным параметрам фенотипа высокой мясной продуктивности.
Выбранный для исследования ген FRY (Furry, microtubule binding protein) оказался в сфере нашего внимания по результатам проведения полногеномных ассоциативных исследований отдельных локусов генома с параметрами мясной продуктивности у овец российских пород. Анализ данных показал наличие рядом с ним однонуклеотидных полиморфизмов, связанных с живой массой и промерами баранчиков, что послужило причиной подробного рассмотрения гена FRY в качестве кандидата, влияющего на параметры экстерьера, связанные с высоким выходом баранины [7]. Поэтому для настоящего исследования поставлена цель изучить структуру гена FRY и выявить полиморфизмы, которые будут непосредственно связаны с изучаемыми показателями мясной продуктивности.
Живая масса является важным интегральным показателем мясной продуктивности у овец. Однако она складывается из целого ряда параметров, таких как масса костного скелета, масса мышц, масса внутреннего и подкожного жира, масса внутренних органов, масса крови и т. д. Поэтому прижизненное проведение оценки мясной продуктивности требует определения и других параметров, характеризующих размеры отдельных частей тела животного для получения более полного и точного прогноза выхода баранины. Соответственно, выявление ассоциаций отдельных локусов генома с показателями живой массы, хотя и является важным результатом для определения возможности их использования в качестве молекулярно-генетических маркеров при селекции, тем не менее требует проверки их связи с другими прижизненными параметрами мясной продуктивности овец. Также это необходимо для использования в селекционной работе, когда в качестве используемого молекулярного маркера выбирается тот, который позволяет прогнозировать не только живую массу, но и определенные особенности экстерьера. В этом случае селекция идет не только на параметры, определяющие выход баранины, но и связанные с соотношением отдельных частей туши, которые имеют разную стоимость на рынке.
Для исследования ассоциаций с рядом прижизненных показателей мясной продуктивности нами выбраны два полиморфизма, показавшие достоверную связь с живой массой и располагающиеся на противоположных концах гена FRY . Обе замены располагаются в интронах гена FRY . Полиморфизм в позиции 29358679 внесен в международную базу данных под индексом «rs429507742». При его наличии нуклеотид тимин меняется на цитозин. Замена с координатами 29040877 также классифицирована и имеет наименование «rs402517549». Признаком замены является наличие в этой позиции аденина вместо гуанина. Проведенное исследование показало, что оба выбранных полиморфизма имеют связь не только с живой массой, но и некоторыми другими параметрами мясной продуктивности.
Дикие и мутантные гомозиготы по замене в позиции 29040877 сильно отличались по среднему показателю живой массы – разница достигала 22 %. Такая разница даже превышает показатели для животных с разными генотипами по гену миостатина [18]. Это указывает на высокие перспективы использования этого полиморфизма в качестве молекулярного маркера при селекции на повышение живой массы ма-нычских мериносов. Кроме этого, два показателя прижизненной оценки – высота в холке и глубина груди – также показали достаточно высокую разницу между носителями двух вариантов гомозиготных генотипов. Оба параметра оказались на 8 % ниже у мутантных гомозигот. Таким образом, генотипирование по полиморфизму в локусе 29040877 может быть использовано для отбора животных как с высокой живой массой, так и более высоких, с развитой грудью.
Разница по показателю живой массы между носителями дикого и мутантного гомозиготного генотипов по замене в позиции 29358679 была почти такой же, как и для замены в позиции 29040877. При этом ширина зада у животных с мутантным гомозиготным генотипом была на 11 % меньше. Также существенно меньшим (на 15 %) оказался обхват предплечья, характеризующий выраженность мышц передних ко-
В е с т н и к Кр а с ГА У. 2026. № 7 (232) нечностей. Полученные результаты показывают, что использование в качестве молекулярного маркера полиморфизма в локусе 29358679 позволит вести селекцию на повышение живой массы, причем с увеличением размера задней части тела. Кроме этого, животные будут иметь более развитую мускулатуру конечностей, что позволит им делать длинные переходы и больше проводить времени на пастбище.
Несмотря на то, что по показателям ассоциации с живой массой носители разных генотипов по заменам 29358679 и 29040877 показали схожие результаты, по другим прижизненным показателям мясной продуктивности получен различный результат. Так, животные с высокими значениями достоверности ассоциаций высоты в холке и глубины груди по полиморфизму 29040877 не имели существенных различий в ширине зада и обхвате предплечья. А маныч-ские мериносы, разделенные по генотипам по замене 29358679, не имели значительной разницы в высоте в холке и глубине груди. На основании этого можно предположить, что генотипирование по обоим заменам в комплексе может обеспечить улучшение продуктивных качеств животных по всем перечисленным признакам, однако это необходимо подтвердить при дальнейших исследованиях.
Заключение. В проведенном исследовании мы использовали результаты полногеномного секвенирования баранчиков породы манычский меринос для извлечения данных и анализа структуры гена FRY . Среди 214 полиморфизмов, показавших достоверную связь с параметрами живой массы в 9 месяцев, были выбраны две однонуклеотидных замены, расположенные в интронах на противоположных концах гена. Проведенный анализ связи этих полиморфизмов с параметрами экстерьера, характеризующими мясную продуктивность, позволил выявить существенные различия. Замена в позиции 29040877 была достоверно ассоциирована с высотой в холке и глубине груди. При этом полиморфизм в локусе 29358679 показал связь с шириной зада и обхватом предплечья. Полученный результат позволяет рекомендовать изученные полиморфизмы для использования в качестве молекулярно-генетических маркеров при селекции овец по живой массе, высоте в холке, глубине груди, ширине зада и обхвату предплечья.
