
Сравнительный анализ изменений молекулярной структуры кератина шерсти после окрашивания
Журнал: Вестник Алматинского технологического университета @vestnik-atu
Рубрика: Технология текстиля и одежды, дизайн
Статья в выпуске: 3 (153), 2026 года.
Бесплатный доступ
В статье представлен сравнительный анализ структурных изменений натуральной и окрашенной шерсти методом инфракрасной Фурье-спектроскопии. В качестве объектов исследования использованы образцы неокрашенной белой и коричневой шерсти, а также шерсть, окрашенная розовым и бледноголубым красителями. Целью работы являлась оценка влияния процесса окрашивания на вторичную структуру α-кератина и состояние дисульфидных связей. Установлено, что для неокрашенных образцов характерна сохранённая α-спиральная конформация кератина, что подтверждается положением полосы Amide I в диапазоне 1631–1643 см⁻¹ и наличием устойчивых S–S связей в области 528–561 см⁻¹. Существенных различий между белой и коричневой шерстью не выявлено. После окрашивания наблюдается смещение полосы Amide I до 1625,99 см⁻¹, что свидетельствует о частичном изменении кератиновой структуры. При этом розовый краситель оказывает умеренное воздействие, тогда как бледно-голубой вызывает выраженные структурные изменения, сопровождающиеся окислением дисульфидных связей и появлением полосы сульфоновой кислоты при 1055 см⁻¹. Результаты исследования подтверждают, что химическая природа красителя определяет степень деградации кератиновой матрицы. Метод ИК-Фурье спектроскопии может быть рекомендован для контроля структурной целостности шерстяных волокон при технологической обработке.
Короткий адрес: https://sciup.org/140316630
IDS: 140316630 | УДК: 675.026 | DOI: 10.48184/2304-568X-2026-3-241-251
Comparative analysis of changes in the molecular structure of wool keratin after dyeing
The article presents a comparative analysis of structural changes in natural and dyed wool using Fouriertransform infrared spectroscopy (FTIR). The study objects included samples of undyed white and brown wool, as well as wool dyed with pink and pale blue dyes. The aim of the work was to evaluate the effect of the dyeing process on the secondary structure of α-keratin and the state of disulfide bonds. It was found that the undyed samples are characterized by a preserved α-helical conformation of keratin, which is confirmed by the position of the Amide I band in the range of 1631–1643 cm⁻¹ and the presence of stable S–S bonds in the region of 528– 561 cm⁻¹. No significant differences were found between white and brown wool. After dyeing, a shift of the Amide I band to 1625.99 cm⁻¹ is observed, indicating a partial change in the keratin structure. In this case, the pink dye has a moderate effect, while the pale blue dye causes pronounced structural changes, accompanied by oxidation of disulfide bonds and the appearance of a sulfonic acid band at 1055 cm⁻¹. The research results confirm that the chemical nature of the dye determines the degree of degradation of the keratin matrix. The FTIR spectroscopy method can be recommended for monitoring the structural integrity of wool fibers during technological processing.
Жүн кератинінің молекулярлық құрылымының бояудан кейінгі өзгерістеріне салыстырмалы талдау
Мақалада табиғи және боялған жүннің құрылымдық өзгерістері Фурье-инфрақызыл спектроскопия әдісімен салыстырмалы талдауы ұсынылған. Зерттеу нысандары ретінде боялмаған ақ және қоңыр жүн үлгілері, сондай-ақ қызғылт және ақшыл-көк бояулармен боялған жүн қолданылды. Жұмыстың мақсаты бояу процесінің α-кератиннің соңғы құрылымына және дисульфидті байланыстардың жағдайына әсерін бағалау болды. Боялмаған үлгілер үшін кератиннің α-спиральды конформациясы сақталғаны анықталды, бұл Amide I жолағының 1631–1643 см⁻¹ аралығында орналасуымен және 528–561 см⁻¹ аймағындағы тұрақты S–S байланыстарының болуымен расталды. Ақ және қоңыр жүн арасында айтарлықтай айырмашылықтар анықталған жоқ. Бояудан кейін Amide I жолағының 1625,99 см⁻¹-ге дейін ығысуы байқалады, бұл кератин құрылымының ішінара өзгергенін көрсетеді. Сонымен қатар, қызғылт бояу орташа әсер етсе, ал ақшыл-көк бояу айқын құрылымдық өзгерістерге әкеледі, бұл дисульфидтік байланыстардың тотығуымен және 1055 см⁻¹-де сульфон қышқылының жолағының пайда болуымен қатар жүреді. Зерттеу нәтижелері бояудың химиялық табиғаты кератин матрицасының деградация дәрежесін анықтайтынын растайды. Фурье-ИК спектроскопия әдісі технологиялық өңдеу кезінде жүн талшықтарының құрылымдық тұтастығын бақылау үшін ұсынылуы мүмкін.
Текст научной статьи Сравнительный анализ изменений молекулярной структуры кератина шерсти после окрашивания
МРНТИ 675.026
Натуральная шерсть остаётся одним из наиболее востребованных природных волокон благодаря своей сложной и уникальной структуре, обеспечивающей высокие показатели теплозащитных, гигиенических и эксплуатационных свойств. Основу шерсти составляет кератин - фибриллярный белок, обладающий выраженной иерархической структурой: макрофибриллы, микрофибриллы, элементарные и кристаллитные фибриллы, аморфные области, основанные преимущественно на а-спиральной конфигурации [1-3]. Характерными особенностями кератина являются высокое содержание серосодержащих аминокислот (цистеин), формирование дисульфидных связей, плотная сетка внутримолекулярных и межмолекулярных взаимодействий, что обусловливает высокую прочность и химическую устойчивость волокна [2].
Структурные и химические свойства шерсти существенно влияют на её поведение при технологической обработке, включая окрашивание, валяние, стирку и термическое воздействие. Окрашивание является одним из наиболее распространённых видов модификации шерстяных волокон. При взаимодействии красителей с функциональными группами кератина происходят изменения на молекулярном уровне, включая изменение гидратации, нарушение или частичное перераспределение внутримолекулярных связей, а также возможное окисление дисульфидных связей [4]. Известно, что интенсивная обработка красителями или реагентами фиксирующего действия изменяет соотношение а-спиралей и в-структур, что влияет на прочность волокна, его упругость и способность к деформации [4,5].
Особый интерес представляет анализ неокрашенной шерсти разного естественного цвета (белой, коричневой), поскольку пигментация, связанная с меланином, оказывает собственное влияние на структуру волокна. Меланин способен изменять теплопроводность, сорбционные свойства и устойчивость к фотодеградации, что отражается в спектроскопических характеристиках материала.
Сравнение естественно окрашенной шерсти, искусственно окрашенной шерсти и войлока, прошедшего процесс валяния, позволяет выявить связь между технологическими процессами и структурными изменениями кератина. Для изучения таких трансформаций необходимы методы, позволяющие анализировать структуру белковых волокон без разрушения образца. В этом отношении ИК-Фурье спектроскопия занимает ведущие позиции. Спектроскопия белковых материалов позволяет оценивать динамику и состояние амидных полос - Amide I, Amide II, Amide III, относящихся к колебаниям пептидных групп, а также фиксировать характеристики липидного слоя (C-H), серосодержащих групп (S-S, S=O, C-S) и боковых цепей аминокислот [6-8].
Особое значение имеет применение приставки нарушенного полного внутреннего отражения, которое позволяет анализировать поверхностные слои и обеспечивает высокое соотношение сигнала или шума даже у плотных текстильных материалов [9]. Благодаря проникновению излучения на глубину около 1-2 мкм ATR-метод особенно чувствителен к структурным изменениям наружного слоя шерсти, где происходят процессы связывания красителей, разрушения кутикулы и модификации липидного барьера.
Полосы поглощения, относящиеся к амидной области, отражают характер вторичной структуры белка и позволяют судить о соотношении а-спиральных, в-слоистых и неупорядоченных структурных элементов. Изменение интенсивности или смещение этих полос свидетельствует о перестройке кератиновой структуры, обусловленной процессами окрашивания, термического воздействия, валяния или окисления. Полосы, соответствующие области колебаний серосодержащих групп, указывают на образование продуктов окисления дисульфидных связей цистина, таких как сульфоксиды и сульфонаты, что имеет принципиальное значение при анализе воздействия химических реагентов и красителей на шерстяное волокно [10-13].
Целью настоящей работы является сравнительный анализ молекулярной структуры неокрашенной и окрашенной шерсти на основе данных ИК-Фурье спектроскопии с целью выявления характера взаимодействия красителей с белковой матрицей волокна.
Исследования войлока показывают, что механическое трение и влажно-тепловая обработка, использующиеся в технологии валяния, изменяют поверхностный слой волокна, вызывая частичное разрушение кутикулы, перераспределение липидов и повышение доли в-структур в амидном спектре [14,15]. Это отражается в смещении пиков и изменении их интенсивности, что делает ИК-Фурье спектрометрию эффективным инструментом анализа структурных модификаций войлочного материала.
С учётом вышеперечисленного, сравнительный анализ ИК-Фурье спектроскопии образцов шерсти, различающихся по цвету, имеет высокую научную и практическую значимость, которая позволяет выявить влияние окрашивания на вторичную структуру кератина, определить степень окисления серосодержащих групп, проанализировать структурные изменения шерсти.
Такие исследования могут быть использованы для разработки более щадящих технологий окрашивания, повышения долговечности шерстяных изделий, оптимизации процессов валяния и создания материалов с улучшенными эксплуатационными свойствами.
Материалы и методы исследований
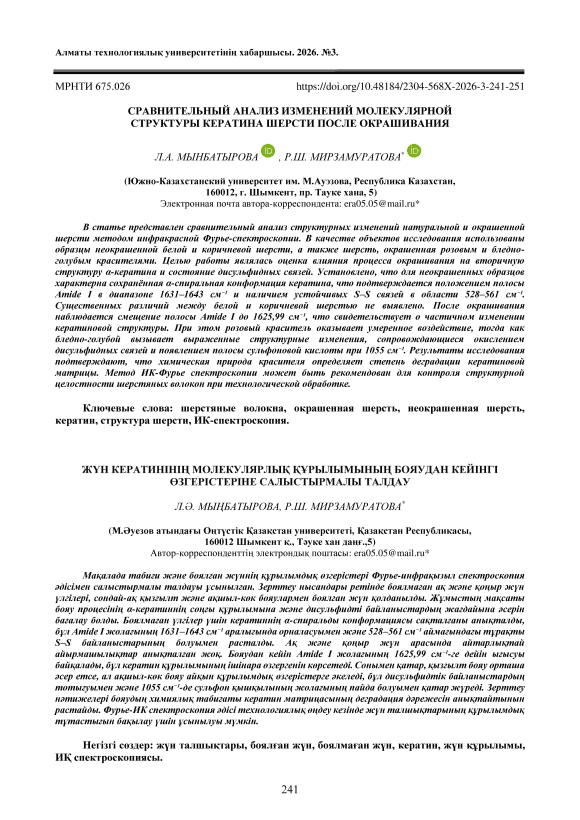
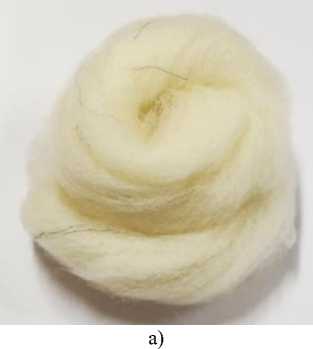
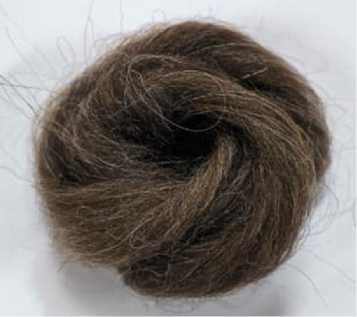
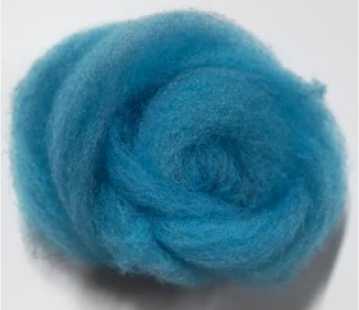
В качестве объектов исследования использовали образцы натуральной шерсти, различающиеся по цвету и предварительной обработке. Для анализа было отобрано четыре типа образцов, предоставленных исследователем:
б)
в)
Рисунок 1. Шерстяные волокна
а) образец 1 - шерстяное волокно, неокрашенное, естественного белого цвета;
б) образец 2 - шерстяное волокно, неокрашенное, естественного коричневого цвета;
в) образец 3 - шерстяное волокно, подвергнутое окрашиванию, цвет - бледно-голубой;
г) образец 4 - шерстяное волокно, подвергнутое окрашиванию, цвет - розовый.
г)
Шерсть окрашивали анилиновыми красителями. Бледно-голубой цвет получили краской фирмы Ashford, а розовый — краской фирмы Pro Fiber Set. Все образцы были предварительно очищены от поверхностных загрязнений ручным встряхиванием и мягким механическим удалением пыли.
Спектральные исследования проводили методом ИК-Фурье спектроскопии с нарушенным полным внутренним отражением. Использовали ИК-Фурье спектрометр Shimadzu IR Prestige-21, оснащённый приставкой ATR Miracle фирмы Pike Technologies.
Полученные спектры обрабатывали с использованием встроенного программного обеспечения спектрометра: выполняли базовую коррекцию, нормализацию, идентификацию пиков и анализ амидных полос для оценки структурных особенностей белкового волокна.
Результаты и их обсуждение
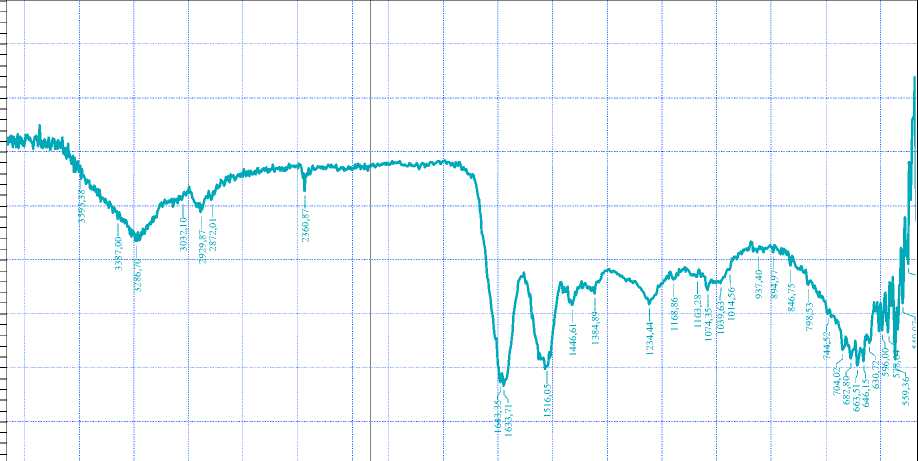
Проведённый детальный анализ ИК-спектра, полученного методом инфракрасной спектроскопии с преобразованием Фурье для неокрашенного белого образца шерстяного волокна (рис. 2), позволяет всесторонне охарактеризовать его молекулярный состав и особенности вторичной структуры кератина.
%T 102
IR Prestige 21 (ATR Miracle) 1/cm
“1------1------1------1------1------1------1------1------1------1------1------1------1------1------1-------1------1------1-------1------1------1------1------1------1------1------1------1------1------1------1------1------1 I I f I------1------1------1------1------1------1------1------1------1------1------1------1------1------1-------1------1------1------1------1------1------1------1------1------1------1------1------1------1------1------1------1------1------1------1------1------1-------1------1------1------1------1------1------1------1------1------1------r
3900 3600 3300 3000 2700 2400 2100 1950 1800 1650 1500 1350 1200 1050 900 750 600
Рисунок 2. ИК-Фурье спектр шерстяного волокна белого цвета (Образец 1)
Спектральная картина демонстрирует устойчивое присутствие всех ключевых функциональных групп белковой природы, что указывает на высокую степень сохранности структуры а-кератина, типичного для натуральной шерсти.
В высокочастотной области спектра, выше 2700 см⁻¹, фиксируются полосы, обусловленные валентными колебаниями связей N-H, O-H и CH. Среднеинтенсивная амидная полоса A в диапазоне 3286–3387 см⁻¹ отражает характерные колебания N–H групп пептидной основы, стабилизированных системой водородных связей, что подтверждает белковую природу материала. Слабые сигналы в районе 3593 см⁻¹ соответствуют валентным колебаниям O-H групп и указывают на присутствие гидроксильных боковых цепей аминокислот, таких как серин или треонин.
Наиболее информативной для анализа присутствия белка является область расположения амидных полос. Доминирующая полоса Amide I, зарегистрированная при 1633.71 и 1643.35 см-1, типична для а-спиральной структуры, что соответствует натуральному состоянию а-кератина. Высокая интенсивность этой полосы свидетельствует о сохранности карбонильных групп C=O пептидной цепи и отсутствии значимых структурных нарушений. Полоса Amide II, расположенная при 1516.05 см-i, отражает деформационные колебания N-H и валентные колебания C–N, что также служит индикатором целостности белкового остова. Соотношение интенсивностей Amide I и Amide II подтверждает отсутствие признаков деградации кератиновой структуры.
В области 1500 см⁻¹, спектр демонстрирует характерный набор полос, связанных с колебательными элементами пептидных и боковых групп. Полоса Amide III в диапазоне 1234.44– 1168.86 см⁻¹ подтверждает наличие устойчивых связей C–N и N–H, формирующих базовую структуру полипептидной цепи. Дополнительные пики в области 1039–1074 см⁻¹ связаны с валентными колебаниями C-O и C-O-C групп, что может отражать присутствие гликопротеиновых фрагментов или окисленных серосодержащих соединений, естественных для шерстяного волокна.
Особое значение для оценки прочностных характеристик кератина имеют полосы, относящиеся к валентным колебаниям дисульфидных и тиольных групп. Сигналы при 630–682 см⁻¹ соответствуют C–S колебаниям цистеиновых остатков, а полосы в интервале 524–559 см⁻¹ указывают на S-S связи, формирующие дисульфидные мостики. Наличие этих полос свидетельствует о сохранности поперечной связки кератиновых фибрилл, что является ключевым фактором механической прочности и стабильности шерстяного волокна.
В целом инфракрасный спектр образца 1 полностью соответствует спектральному профилю неокрашенного, не подвергавшегося актив- ной обработке α-кератина. Чёткая выраженность основных амидных полос, наличие дисульфидных связей и отсутствие дополнительных пиков, которые могли бы указывать на процессы деградации - такие как гидролиз или глубокое окисление, - подтверждают высокую степень структурной сохранности материала. Таким образом, данный образец может рассматриваться как эталонный и использоваться для сопоставления с окрашенными или неокрашенными образцами другого цвета шерстяного волокна в рамках дальнейших исследований.
IR Prestige 21 (ATR Miracle) 1/cm
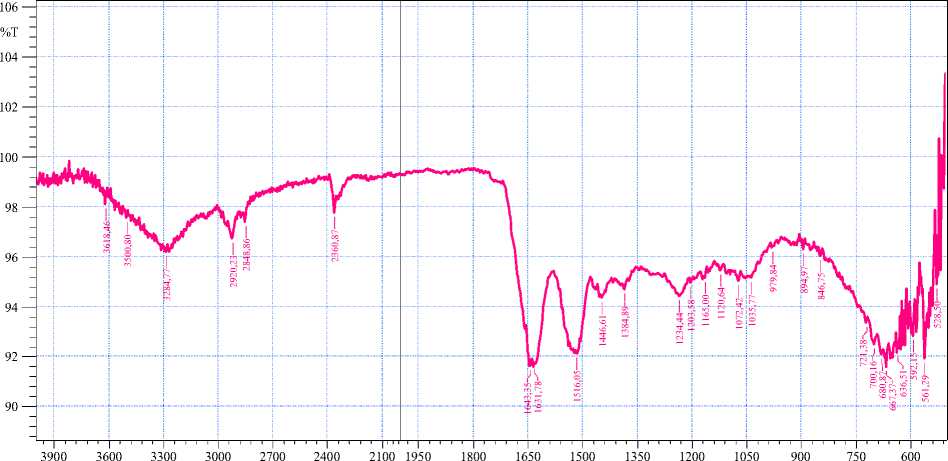
Рисунок 3. ИК-Фурье спектр шерстяного волокна коричневого цвета (Образец 2)
Проведённый сравнительный анализ ИК-Фурье спектров для двух образцов натуральной шерсти — неокрашенной белой (Образец 1) и неокрашенной коричневой (Образец 2) — позволил выявить как их фундаментальное структурное сходство, так и отдельные отличия, связанные преимущественно с присутствием природного пигмента в шерсти коричневого цвета. Оба материала демонстрируют характерные признаки натурального α-кератина, что проявляется в устойчивости основных амидных полос и сохранности структурных элементов полипе-птидной цепи.
Спектры обоих образцов практически идентичны в высокочастотной зоне, где фиксируются валентные колебания N–H групп. Полоса Amide A, расположенная при 3284.77 см⁻¹ у образца 1 и 3286.70 см⁻¹ у образца 2, демонстрирует одинаковую интенсивность, что свидетельствует о сходной степени вовлечённости N–H связей в водородные взаимодействия. Это позволяет заключить, что пространственная организация белковых цепей в данной области не нарушена и одинакова в обоих случаях.
Анализ ключевой структурной области -амидных полос - показывает полное соответствие спектров. Доминирующий Amide I, отражающий колебания карбонильных групп C=O, располагается в обеих шерстях в пределах 1631–1644 см⁻¹. Пики при 1631.78 и 1643.35 см⁻¹ у белого волокна и при 1633.71 и 1643.35 см⁻¹ у коричневого волокна указывают на преобладание α-спиральной конформации, характерной для натурального кератина. Вторая важная амидная полоса - Amide II - также сохраняет идентичное положение в спектрах, проявляясь при 1516.05 см⁻¹, что свидетельствует о неизменной структуре пептидных связей. Полоса Amide III в районе 1234 см⁻¹ дополняет картину, отражая сложное сочетание валентных и деформационных колебаний C–N и N–H групп и подтверждая целостность вторичной структуры.
Низкочастотная область, где располагаются полосы дисульфидных и тиольных групп, также демонстрирует высокую степень совпадения. Полосы валентных колебаний C–S и S–S связей цистеина отмечены в обеих спектральных кривых в диапазонах 528–540 см⁻¹ и 663–682 см⁻¹. Наличие этих сигналов однозначно указывает на сохранность дисульфидных связей, играющих ключевую роль в поддержании механической прочности и упругости волокна. Столь согласо- ванная спектральная картина позволяет заключить, что оба образца не подвергались активной химической обработке и демонстрируют типичную структуру натурального кератина.
Несмотря на выраженное сходство, определённые различия всё же фиксируются, и они преимущественно связаны с присутствием меланина в коричневом волокне. Одним из таких различий является интенсивность полосы в области 2360.87 см⁻¹, которая относится к поглощению атмосферного CO₂. Хотя этот пик не является структурно значимым для кератина, различия в значения скорректированных площадей — высокая у белого образца и заметно ниже у коричневого — могут отражать влияние волокнистой матрицы, в частности сорбционных свойств, изменённых присутствием пигмента.
В области 700–850 см⁻¹ оба спектра демонстрируют множественные пики, однако их положение немного варьирует: например, для белой шерсти наблюдается полоса около 721 см⁻¹, тогда как для коричневой — около 744 см-1. Эти сдвиги, вероятно, обусловлены колебаниями ароматических или хиноидных групп меланина — фенольного полимера, который имеет собственные спектральные особенности и может накладываться на колебания боковых групп аминокислот.
Особый интерес представляет сравнение соотношения площадей полос Amide I и Amide II. Для белой шерсти это соотношение составляет около 4.6, тогда как для коричневой достигает значительно более высокого значения — примерно 11. Такая разница может быть обусловлена частичным спектральным перекрытием меланина с областью Amide II либо вариациями в распределении упорядоченных и неупорядоченных участков внутри пигментированного волокна. Важно отметить, что даже при этих различиях положение пиков остаётся неизменным, что указывает на стабильность вторичной структуры.
Таким образом, оба исследованных образца демонстрируют спектральные характеристики, типичные для а-кератина. Выявленные различия в интенсивности отдельных полос и в соотношении амидных пиков связаны не с нарушениями структуры белка, а с природными особенностями пигментированного волокна. Присутствие натурального меланина приводит лишь к незначительным вариациям в спектре, не затрагивая общую конформацию полипептидной цепи. Это подтверждает, что ни белая, ни коричневая шерсть не подвергались активной обработке, и обе могут служить достоверной основой для последующего сравнения с окрашенными образцами, что позволит точно оценивать степень деградации кератиновой структуры.
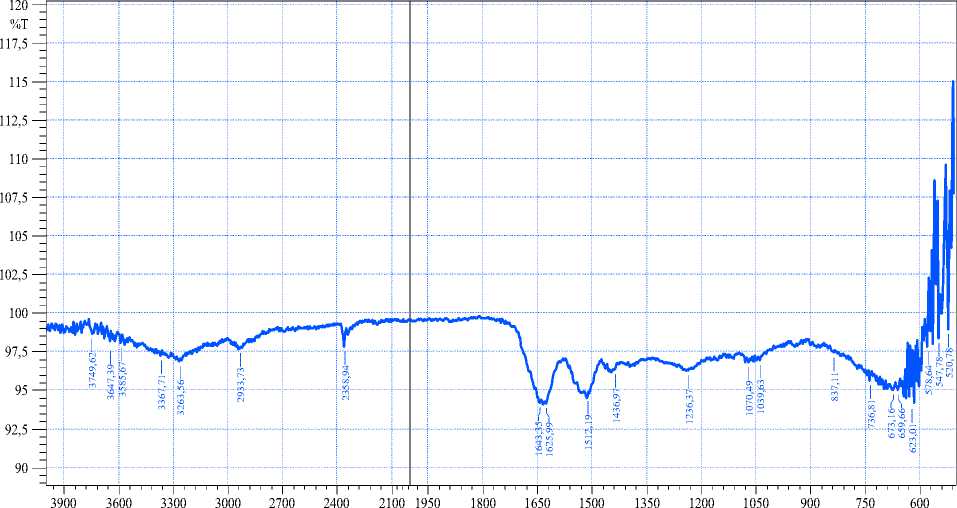
Исследование ИК-Фурье спектров розовой окрашенной шерсти (Образец 3) позволило выполнить детальное сопоставление её структурных характеристик с натуральными эталонами — белой и коричневой шерстью (Образцы 1 и 2).
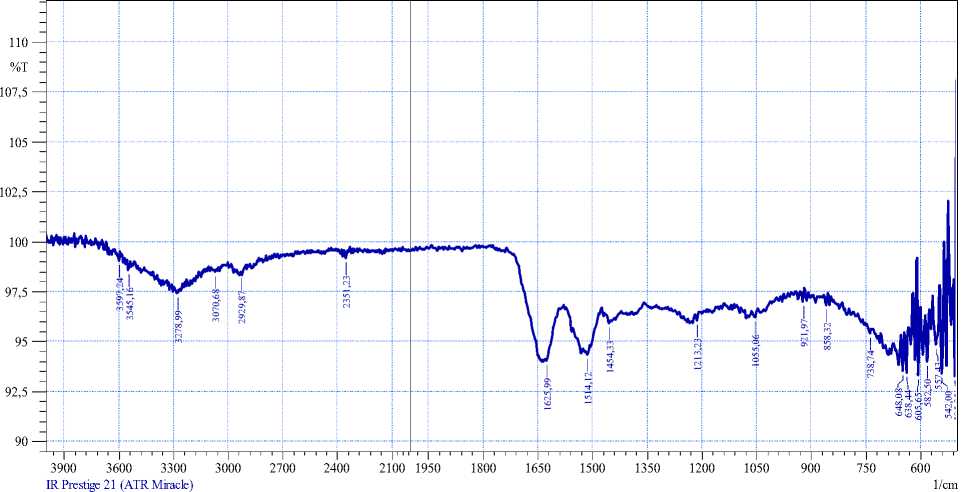
Рисунок 4. ИК-Фурье спектр шерстяного волокна розового цвета (Образец 3)
Целью анализа являлась оценка влияния процесса окрашивания на состояние кератиновой матрицы, а также выявление возможных признаков её деградации. Полученные данные показали, что спектр окрашенного образца заметно отличается от спектров неокрашенных волокон, отражая изменения белковой структуры.
Наиболее значимые различия обнаруживаются в области амидных полос, которые традиционно рассматриваются как индикаторы состояния вторичной структуры кератина. У натуральных образцов положение полосы Amide I находится в диапазоне 1631–1643 см⁻¹, что соответствует преимущественно а-спиральной конформации. В случае окрашенного образца основной пик смещён до 1625.99 см⁻¹, что свидетельствует о частичном нарушении водородных связей и ослаблении спиральной организации. Аналогичную тенденцию демонстрирует и полоса Amide II: если в натуральной шерсти она фиксируется при 1516.05 см⁻¹, то в окрашенной — при 1512.19 см-1. Сдвиг в область более низких частот указывает на изменение микросреды пептидных групп под воздействием красителя и на возможное увеличение доли неупорядоченных или агрегированных структур. Таким образом, амидная область ясно показывает, что воздействие красителя приводит к умеренной деградации вторичной структуры и к ослаблению а-спиральной составляющей волокна.
Дополнительные сведения о химических изменениях кератина даёт анализ полос, связанных с дисульфидными мостиками и продуктами их окисления. В спектрах натуральной шерсти наблюдается характерный набор пиков в области 528–561 см⁻¹, отражающих нормальное состояние S-S-сшивок. У окрашенного образца регистрируется пик при 520.78 см⁻¹, что подтверждает сохранность существенной части дисульфидных соединений. Одновременно отсутствие заметного усиления полос в диапазоне 1039–1070 см⁻¹, где проявляются вибрации продуктов окисления C–O, позволяет сделать вывод о том, что процесс окрашивания не сопровождался мощным окислительным воздействием. Фиксируемая слабая полоса при 1070.49 см⁻¹ отражает лишь минимальные перестройки, не приводящие к грубому разрушению кератина, что отличает мягкие красители от активных осветляющих реагентов.
Существенным признаком модификации структуры волокна является появление в спектре новых интенсивных полос, отсутствующих у натуральной шерсти. В диапазоне 700–900 см⁻¹ в образце окрашенного волокна фиксируются пики при 736.81 см⁻¹ и 837.11 см⁻¹, характерные для вибраций функциональных групп органической молекулы красителя. Эти полосы указывают на присутствие красителя внутри волокна и подтверждают его взаимодействие с кератином. В высокочастотной области наблюдаются изменения в поведении полос, связанных с N-H и OH колебаниями (3367.71, 3585.67 и 3647.39 см⁻¹). Такие изменения обычно отражают участие полярных групп белка в дополнительных водородных связях, возникающих при взаимодействии с молекулой красителя, а также возможную перестройку гидратационного состояния волокна.
Совокупность всех спектральных особенностей позволяет заключить, что розовая окрашенная шерсть демонстрирует явные признаки структурной модификации. Наблюдается ослабление а-спиральной структуры, смещение амидных полос, частичное разрушение водородных связей и изменение локальной микросреды пептидных групп. При этом дисульфидные мостики в значительной степени сохраняют целостность, а выраженных признаков сильного окислительного повреждения не выявлено. Появление характерных полос красителя подтверждает его интеграцию в структуру волокна и участие в формировании новых межмолекулярных взаимодействий.
В целом структура образца 3 оказывается менее стабильной по сравнению с натуральными образцами, что в полной мере соответствует природе окрашенного материала. Несмотря на отсутствие грубой деструкции, зафиксированные изменения демонстрируют, что процесс окрашивания приводит к умеренной, но отчётливо выраженной модификации белковой матрицы шерсти.
IR Prestige 21 (ATR Miracle) 1/cm
Рисунок 5. ИК-Фурье спектр шерстяного волокна бледно-голубого цвета (Образец 4)
Сравнительное исследование инфракрасных спектров с преобразованием Фурье позволило выявить характерные изменения, возникающие в структуре кератина после окрашивания шерстяного волокна. Для анализа был использован образец 4 — шерсть бледно-голубого оттенка, и два эталонных натуральных материала: белая (Образец 1) и коричневая шерсть (Образец 2). Основной целью являлась оценка того, каким образом краситель и сопровождающие его технологические процессы воздействуют на вторичную структуру белка, поперечные сшивки и полярные функциональные группы кератина.
Прежде всего, изменения затронули амидные области — наиболее информативную зону для анализа конформации белка. В натуральных образцах полоса Amide I стабильно фиксируется в диапазоне 1631–1643 см⁻¹, что соответствует преимущественно а-спиральной структуре кератина. В окрашенном образце она смещается до 1625.99 см⁻¹. Такое понижение частоты примерно на 6–8 см⁻¹ свидетельствует о нарушении водородных связей внутри спиральных фрагментов и увеличении доли неупорядоченных структур или агрегированных в-слоёв. Полоса Amide II также демонстрирует лёгкое смещение (с 1516.05 до 1514.12 см-1), что отражает изменения в конфигурации пептидной связи и указывает на модификацию условий гидратации или химическое воздействие на белковую матрицу.
Характер спектральных изменений позволяет утверждать, что вторичная структура кератина в окрашенном образце частично нарушена. Это типичный результат для волокон, прошедших технологическую обработку с участием активных химических соединений.
Значимые различия проявляются и в области поперечных дисульфидных связей. Натуральные образцы демонстрируют лишь слабые полосы, связанные с продуктами окисления цистеина, тогда как в образце 4 появляется интенсивная полоса при 1055.06 см-1. Она соответствует колебаниям сульфоновых кислотных групп и отражает более глубокую степень окисления аминокислотных остатков. Полоса S– S связей в области около 542 см⁻¹ сохраняется, однако снижение её относительной интенсивности указывает на частичное разрушение дисульфидной сетки. Поскольку такие мостики являются ключевыми для механической прочности и устойчивости волокна, их деградация свидетельствует о заметном химическом воздействии, сопровождающем процесс окрашивания.
Ещё одним подтверждением модификации структуры является появление новых полос, отсутствующих в натуральных эталонах. Особенно отчётливо в окрашенном образце выражены пики в диапазоне 700–1100 см⁻¹ (738.74, 858.32 и 921.97 см⁻¹). Они связаны с колебаниями ароматических фрагментов, сульфонатных групп и других структурных элементов органического голубого красителя. Это указывает на то, что краситель не только адсорбируется на поверхности, но и вступает во взаимодействие с функциональными группами кератина, формируя устойчивые связи в структуре волокна.
Особое внимание привлекает полоса валентных колебаний O–H при 3597.24 см⁻¹, которая демонстрирует изменённую интенсивность по сравнению с натуральными образцами. Такие изменения отражают перераспределение водородных связей, что характерно для волокон, подвергшихся химическому воздействию и изменению степени гидратации. В данном случае это также может быть связано с формированием новых связей между молекулами красителя и гидрофильными группами белка.
В совокупности полученные данные позволяют сделать вывод, что образец 4 претерпел умеренную, но отчётливо фиксируемую химическую модификацию. Наиболее значительные изменения касаются частичной дестабилизации вторичной структуры, окисления и ослабления дисульфидных связей, а также появления новых полос, отражающих присутствие органического красителя в структуре волокна. Эти спектральные особенности характеризуют окрашенную шерсть как материал, в котором структура кератина нарушена по сравнению с неокрашенными образцами, что является закономерным результатом технологической обработки.
Проведённый сравнительный ИК-Фурье анализ двух окрашенных образцов шерстяного волокна — розового (Образец 3) и бледно-голубого (Образец 4) — позволил проследить различия в степени воздействия красителей на структуру кератина. Наиболее информативными индикаторами изменений выступили амидные полосы, отражающие состояние вторичной структуры белка, а также области, связанные с дисульфидными связями и продуктами их окисления.
В спектральном диапазоне амидных колебаний оба образца демонстрируют одинаковое положение полосы Amide I, зафиксированной на уровне 1625.99 см⁻¹. Сдвиг в область более низких частот характерен для нарушенных водородных связей и частичной денатурации а-спиральных участков кератина, что позволяет утверждать, что оба красителя в определённой степени воздействовали на упорядоченность белковой матрицы. В то же время положение полосы Amide II показало небольшое различие: для розового образца частота составила 1512.19 см-1, тогда как для голубого — 1514.12 см-1. Более низкое значение в розовом случае указывает на слегка более выраженное изменение локальной микросреды пептидной связи, однако количественные показатели интегральной площади демонстрируют иную картину.
Соотношение площадей полос Amide I и Amide П, являющееся надёжным критерием степени структурного повреждения пептидного остова, оказалось значительно ниже у образца 4. Для голубого образца отношение составило около 1.5, тогда как для розового — около 2.4. Пониженное значение прямо указывает на более глубокую перестройку вторичной структуры именно в голубом случае, что согласуется с визуальными особенностями спектра и повышенной выраженностью отдельных колебательных мод.
Особое внимание уделено области дисульфидных связей (520–550 см⁻¹) и зоне появления продуктов их окисления. Для голубого образца чётко фиксируется интенсивный пик около 1055 см⁻¹, соответствующий сульфоновой кислоте (SO₃H). Наличие этой полосы является прямым и однозначным признаком разрыва дисульфидных связей и последующего окислительного превращения цистеина, что говорит о значительно более интенсивном воздействии красителя на прочностно-ответственные структуры кератина. В розовом образце в аналогичном диапазоне наблюдается лишь слабое проявление колебаний, не позволяющее говорить о выраженном окислении S-S связей. Несмотря на то что интегральная площадь в низкочастотной области у голубого образца выше, её увеличение, вероятно, связано с наложением колебаний самого красителя и не отражает реального усиления содержания дисульфидных связей — напротив, присутствие сильной полосы SOsH свидетельствует об их разрушении.
Характерные полосы красителей также демонстрируют различия. Розовый краситель проявляется несколькими слабыми пиками в области 736–837 см⁻¹, тогда как голубой образец демонстрирует более насыщенный спектральный рисунок с дополнительными колебательными модами в областях 738.74, 858.32 и 921.97 см⁻¹. Наличие большего числа уникальных полос обычно отражает более активное взаимодействие красителя с функциональными группами волокна, что ещё раз подтверждает его более активное влияние.
Все совокупные данные показывают, что бледно-голубой краситель оказывает значительно более выраженное воздействие на структуру шерстяного волокна. Голубой образец отличается более сильной перестройкой вторичной структуры кератина, что подтверждается низким значением соотношения Amide I/Amide II, а также наиболее интенсивным окислением S-S связей, прямым индикатором которого является отчётливая полоса сульфоновой группы при 1055 см⁻¹. В розовом образце повреждение также присутствует, но оно значительно менее выражено и не сопровождается столь сильным разрушением дисульфидного каркаса.
Таким образом, образец 4 можно охарактеризовать как находящийся в более глубоко деградированном структурном состоянии по сравнению с образцом 3. Розовый краситель вызывает лишь умеренные изменения, тогда как бледно-голубой приводит к комплексному нарушению как вторичной структуры, так и дисульфидных связей, что определяет его более активное воздействие на кератиновую основу шерсти.
Заключение
Проведённое исследование ИК-Фурье спектров натуральной и окрашенной шерсти позволило комплексно оценить влияние различных красителей на структурное состояние кератина. Анализ амидных полос Amide I и Amide II показал, что окрашивание приводит к частичной денатурации α-спиральных участков белка и изменению микросреды пептидных связей. При этом характер этих изменений зависит от типа красителя: розовый краситель (Образец 3) вызвал умеренные перестройки вторичной структуры, в то время как бледно-голубой (Образец 4) спровоцировал более значительное нарушение упорядоченности полипептидной цепи.
Сравнение соотношения площадей Amide I/Amide II подтвердило различия в степени повреждения: более низкое значение у голубого образца (≈1,5) свидетельствует о глубокой перестройке белковой матрицы, тогда как у розового оно выше (≈2,4), что указывает на относительно щадящее воздействие. Анализ дисульфидных связей и продуктов их окисления позволил выявить интенсивное окисление S–S связей у бледно-голубого образца, подтверждаемое отчет-ливой полосой SO₃H при 1055 см⁻¹, тогда как в розовом образце признаки окисления были минимальными.
Характерные спектральные пики красителей также показали различия в их взаимодействии с кератином: голубой краситель демонстрировал более широкий и насыщенный набор полос, отражающих активное включение в структуру волокна и формирование дополнительных межмолекулярных связей.
В целом, исследование показало, что окрашивание неизбежно сопровождается структурными модификациями шерстяного волокна, однако степень этих изменений существенно зависит от химической природы красителя.
Бледно-голубой краситель оказывает наиболее выраженное воздействие на вторичную структуру и дисульфидные мостики кератина, тогда как розовый влияет умеренно, не вызывая значительного разрушения белковой матрицы. Полученные результаты имеют практическое значение для разработки более щадящих технологий окрашивания шерсти, позволяющих сохранить механическую прочность и долговечность волокон, а также для выбора красителей с контролируемым воздействием на структуру материала.
