
Влияние соевого ингибитора трипсина на гематологические показатели в условиях водной и пищевой депривации у крыс
Рубрика: Ветеринария
Статья в выпуске: 2 т.266, 2026 года.
Бесплатный доступ
Показано, что такие протеазы как тромбин, трипсин и катепсин G, играют ключевую роль не только в процессе расщепления белков во внеклеточном пространстве, но и в регуляции различных физиологических процессов. Их функции опосредуются взаимодействием с рецепторами, активируемыми протеазами (PARs), которые широко экспрессируются в различных органах и тканях. Сериновые протеазы, циркулирующие в крови, обычно не проявляют своей ферментативной активности из-за наличия белков-ингибиторов, что предотвращает их взаимодействие с PARs. В настоящее время также известны экзогенные ингибиторы протеаз, такие как соевый ингибитор трипсина (СИТ), который может замедлять процессы гемостаза, фибринолиза и агрегации тромбоцитов. Ранее проведённые исследования показали взаимосвязь между биохимическими показателями крови и активностью трипсина — основного агониста PAR2 — в крови, при водной и пищевой депривации на фоне введения СИТ. Однако влияние введение СИТ на гематологические показатели при различных формах депривации остаётся недостаточно изученным. В связи с этим, в данном исследовании показано действие СИТ на гематологические параметры у крыс при водной и пищевой депривации. Было выявлено, что при водной депривации на фоне дополнительного введения СИТ наблюдалось повышение уровня лейкоцитов на 38% (р˂0,05), гемоглобина на 13%, гематокрита на 11% и снижение количества тромбоцитов на 14%. В то же время при пищевой депривации происходили противоположные изменения, при которых прослеживалось снижение количества лейкоцитов на 20%, гемоглобина на 5%, гематокрита на 8% и тромбоцитов на 25% (р˂0,05). Таким образом, гематологические показатели являются значимыми информативными показателями при оценке компенсаторно-адаптационных процессов у крыс в условиях метаболического стресса (голод и жажда), а введение СИТ позволяет уменьшить его негативные последствия.
Короткий адрес: https://sciup.org/142248495
IDS: 142248495 | УДК: 612.11 | DOI: 10.31588/2413_4201_1883_2_266_55
Effects of soybean trypsin inhibitor on hematological parameters under water and food deprivation in rats
Proteases such as thrombin, trypsin and cathepsin G have been shown to play a key role not only in protein breakdown in the extracellular space, but also in the regulation of various physiological processes. Their functions are mediated by interactions with protease-activated receptors (PARs), which are widely expressed in various organs and tissues. Serine proteases circulating in the blood typically exhibit no enzymatic activity due to the presence of inhibitory proteins, which prevents their interaction with PARs. Currently, exogenous protease inhibitors are also known, such as soybean trypsin inhibitor, which can slow down the processes of hemostasis, fibrinolysis and platelet aggregation. Previous studies have shown a relationship between blood biochemical parameters and the activity of trypsin, the main PAR2 agonist, in the blood during water and food deprivation against the background of soybean trypsin inhibitor administration. However, effect of soybean trypsin inhibitor administration on hematological parameters under various forms of deprivation remains poorly understood. In this regard, this study demonstrates the effect of soybean trypsin inhibitor on hematological parameters in rats under water and food deprivation. It was found that during water deprivation against the background of additional soybean trypsin inhibitor administration, an increase in leukocyte levels by 38% (p<0.05), hemoglobin by 13%, hematocrit by 11% and a decrease in platelet count by 14% were observed. At the same time, food deprivation resulted in opposite changes, with a 20% decrease in leukocyte count, 5% in hemoglobin, 8% in hematocrit and 25% in platelets (p<0.05). Thus, hematological parameters are significant informative indicators for assessing compensatory and adaptive processes in rats under metabolic stress (hunger and thirst), and the introduction of STI can reduce its negative consequences.
Текст научной статьи Влияние соевого ингибитора трипсина на гематологические показатели в условиях водной и пищевой депривации у крыс
PARs широко экспрессируются в различных системах органов, включая сердечнососудистую, опорно-двигательную, дыхательную, желудочно-кишечную, иммунную и центральную нервную системы [4]. PARs участвуют в регуляции физиологических процессов, таких как свёртывание крови, воспаление, сосудистый тонус, заживление ран и др. [5, 6, 7].
В последние годы особое внимание уделяется участию PARs в развитии воспалительных и аутоиммунных заболеваниях. Выявлено, что генетическая деактивация PAR2, одного из четырех типов PARs, основным агонистом которых является трипсин, снижает воспалительный ответ в различных моделях патологических состояний. В настоящее время это легло в основу интенсивного изучения фармакологического ингибирования PAR2 для разработки терапевтических средств при воспалениях [8].
Показано, что гиперактивация PAR2, как правило, сопровождающаяся повышенной активностью сериновых протеаз в крови, это является ключевым регулятором воспалительных процессов при заболеваниях почек, воспалении дыхательных путей и патологического ремоделирования сосудов [9, 10, 11]. Обнаружено, что PAR2 модулируют острые и хронические воспалительные процессы в ЖКТ и суставов, как у людей, так и у животных [11, 12, 13].
Установлено, что иммунная система играет ключевую роль в развитии и регуляции воспалительных, пролиферативных и репаративных механизмов, функционировании центральной нервной системы и обменных процессов [14]. Продемонстрировано, что существует взаимосвязь между пищеварительной и иммунной системами на всех этапах иммунного ответа [15]. Выявлено, что такие физиологические стрессорные факторы, как голод и жажда также значительно влияют на иммунные процессы в организме [16].
Ранее в наших экспериментах было обнаружено, что ограничение доступа к воде достоверно увеличивает активность трипсина в крови у крыс, а ограничение корма снижает данный показатель по сравнению с животными, имеющими свободный доступ к корму и воде [17]. Одновременно было отмечено, что имеются различия в содержании форменных элементов крови у крыс в условиях водной и пищевой депривации. На фоне жажды у животных наблюдали тенденцию к увеличению эритроцитов и уровня гемоглобина, а также увеличение общего количества лейкоцитов преимущественно за счет увеличения эозинофилов. В условиях пищевой депривации регистрировали снижение уровня лейкоцитов, выраженное уменьшение концентрации моноцитов и снижение гематокрита. Это, по-видимому, отражает адаптационно-компенсаторные процессы в организме в условиях голодания [18].
Нейтрофилы являются первичными эффекторными клетками врожденного иммунного ответа, которые первыми мигрируют к очагам воспаления [19]. При этом, нейтрофилы выделяют целый ряд сериновых протеаз (нейтрофильная эластаза, катепсин G и др.), увеличение активности которых интенсифицирует воспаление путем вовлечения PARs [20].
Известно, что сериновые протеазы (трипсин, тромбин и др.), циркулирующие в крови, не проявляют свою ферментативную активность благодаря наличию соответствующих белков-ингибиторов, которые снижают их преждевременную и/или чрезмерную активацию, либо полностью их инактивируют [21].
Наряду с этим обнаружено, что имеются также экзогенные ингибиторы протеаз, одним из которых является - соевый ингибитор трипсина (СИТ). Выявлено, что СИТ замедляет процессы гемостаза препятствуя свертыванию крови, фибринолизу и агрегации тромбоцитов. Ингибиторы трипсина воздействуют на некоторые биохимические параметры, связанные с голоданием, и рассматриваются как потенциальные кандидаты перспективные в плане лечения ожирения и метаболического синдрома [22].
Ранее нами была выявлена взаимосвязь активности трипсина и биохимических показателей крови при водной и пищевой депривации на фоне введения СИТ [23]. Показано, что введение СИТ в этих условиях частично ингибирует активность трипсина, тем самым, препятствуя развитию нарушений обменных процессов в организме.
Однако вопрос о том, нормализует ли введение СИТ сдвиги гематологических показателей, в том числе и характеризующих иммунореактивность организма, в условиях метаболического стресса (голод, жажда) остаётся недостаточно изученным.
В связи с этим целью данного исследования явилось изучение основных гематологических показателей у крыс в состоянии жажды и голода на фоне введения СИТ.
Условия, материалы и методы. Эксперименты были выполнены на лабораторных крысах-самцах популяции «Wistar», с массой тела 250-300 г, подразделенных на 3 группы (по 7 животных в каждой). Животных содержали в виварии в поликарбонатных клетках на подстилке из деревянных опилок, получали автоклавированный стандартный экструдированный корм и профильтрованную водопроводную воду. Все эксперименты проводили в соответствии с приказом Минздрава РФ № 199 от 1.04.2016 г. «Об утверждении правил надлежащей лабораторной практики», в соответствии с требованиями Всемирного общества защиты животных (WSPA) и Европейской конвенции о защите экспериментальных животных, а также одобренного протокола комиссии по биомедицинской этике ФГБНУ «НИИ нормальной физиологии им. П.К. Анохина» от 01.02.2023 года.
Контрольная группа имела свободный доступ к корму и воде. В опытной группе 1 животным в течение суток ограничивали доступ к воде, а в опытной группе 2 - к корму на фоне однократного внутрибрюшинного введения 0,5 мл 1% раствора СИТ Sigma T9008 у всех групп крыс отбирали кровь для анализа гематологических показателей. После этого животным предоставляли свободный доступ к воде и корму и через час снова отбирали пробы крови для анализа.
Кровь для анализа отбирали из хвостовой вены, используя вакуумные пробирки с антикоагулянтом (К3-ЭДТА). Гематологический анализ крови проводили на ветеринарном автоматическом гематологическом анализаторе DF50Vet производства компании Dymind Biotech (КНР) с использованием соответствующих наборов реагентов.
Статистическую обработку данных проводили по алгоритмам программ Statistica 8.0 и Excel. Нормальность распределения проверяли с помощью критерия Шапиро-Уилка, что позволило использовать при статистической обработке результатов t критерий Стьюдента для малых групп, изменения показателей считали значимыми при p<0,05.
Результаты и обсуждение. Результаты исследований показали, что введение СИТ значительно влияет на гематологические показатели животных при различных видах депривации.
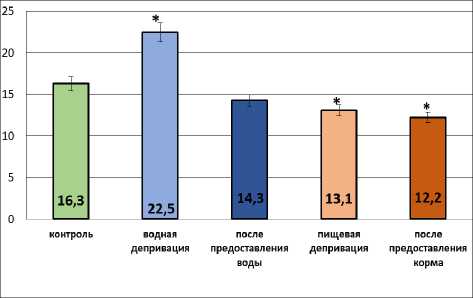
На фоне водной депривации количество лейкоцитов увеличивалось до 22,5±2,49×10⁹/л (на 38%) (p<0,05), а при пищевой депривации снижалось — до 1з,1±1,69х10 9 /л (на 20%) относительно значений контрольной группы (рис. 1A). После предоставления свободного доступа к воде и корму общее количество лейкоцитов продолжало оставаться сниженным: 14,3±0,49×10⁹/л (на 12%) и 12,2±1,22×10⁹/л (на 25%) (p<0,05) соответственно по сравнению с контрольными значениями. Данные о различных изменениях общего количества лейкоцитов при водной и пищевой депривации, по-видимому, обусловлены тем, что водная депривация является более сильным стрессорным фактором по сравнению с пищевой. Следует отметить, что жажда сопровождается гиперактивацией ренин-ангиотензиновой системы, сопряженной с интенсивным усилением про-воспалительных механизмов [24]. Вероятно, использованные в исследовании дозы СИТ недостаточны для компенсации данной иммунной реакции на стресс.
А
Б
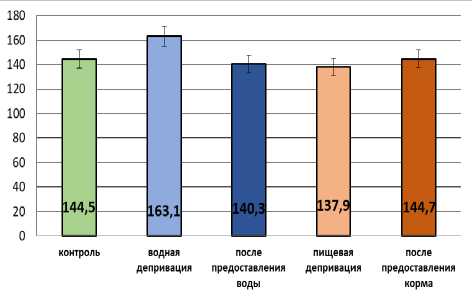
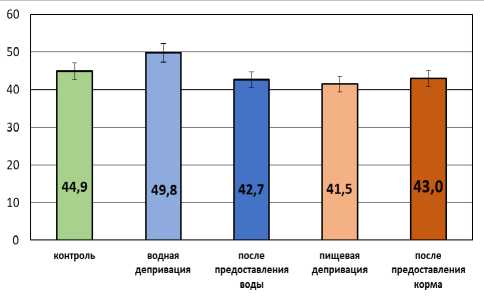
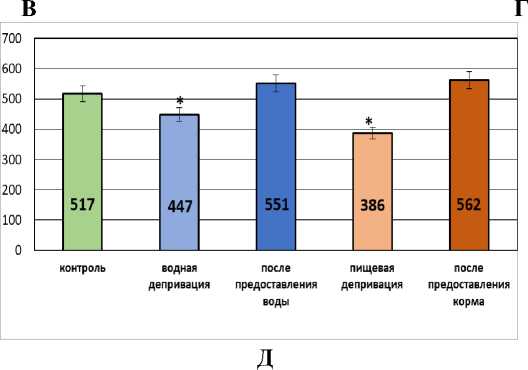
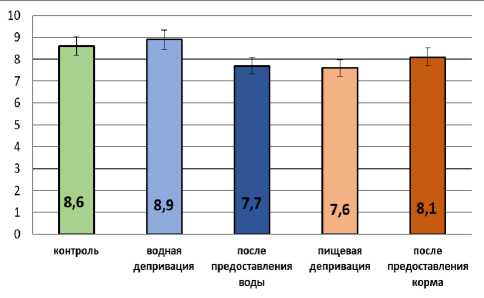
Рисунок 1 - А - содержание общего количества лейкоцитов, 109/л, Б - содержание ритроцитов, 1012/л, В – содержание гемоглобина, г/л, Г – содержание гематокрита, %, Д – содержание тромбоцитов, 109/л в крови крыс при водной и пищевой депривации на фоне предварительного введения
СИТ
Примечание: *p<0,05- по сравнению с недепривированным контролем
Водная депривация на фоне СИТ привела к увеличению уровня гемоглобина до 163±8,5 г/л (на 13%), что можно рассматривать как адаптивный ответ организма на дегидратацию. С другой стороны, снижение уровня гемоглобина на 5% в условиях голодания связано с нехваткой железа, необходимого для эффективной транспортировки кислорода (рис. 1В). Этот процесс можно объяснить метаболическими изменениями, происходящими в организме при ограничении поступления питательных веществ, что приводит к уменьшению общего количества циркулирующих эритроцитов до 7,6±0,36×10¹²/л (на 11%) (рис. 1Б) и, как результат, уровня гемоглобина. Аналогичные изменения были зафиксированы в уровне гематокрита (рис. 1Г). При водной депривации наблюдалась тенденция к увеличению до 49,8%, тогда как при пищевой де- привации данный показатель снижался на 8% относительно контрольных значений. После предоставления воды и корма уровень гематокрита продолжал оставаться сниженным на 5% и 4% соответственно в сравнении с контролем.
Введение СИТ в условиях метаболического стресса привело к изменениям в уровне тромбоцитов (рис. 1Д). Водная и пищевая депривация вызвали снижение количества тромбоцитов до 447±53,8×10⁹/л (на 14%) и до 386±59,4×10⁹/л (25%) (p<0,05) по сравнению с контрольной группой. После предоставления воды и корма уровень тромбоцитов вернулся к значениям, близким к контрольным.
При анализе компонентов лейкоцитарной формулы были обнаружены значительные изменения их процентного содержания в условиях водной и пищевой депривации на фоне введения СИТ.
Данные, полученные в ходе экспериментов, свидетельствуют о существенном снижении процентного содержания нейтрофилов на 27% (p<0,05) и 43% (p<0,05), а также моноцитов на 52% (p<0,05) и 35% (p<0,05) соответственно, по сравнению с контрольными показателями (рис. 2).
Известно, что количество нейтрофилов, которые ранее традиционно считались первой линией защиты от инфекций и практически не рассматривались в контексте регуляции обмена веществ, может меняться в зависимости от циркадных ритмов и метаболических состояний [25].
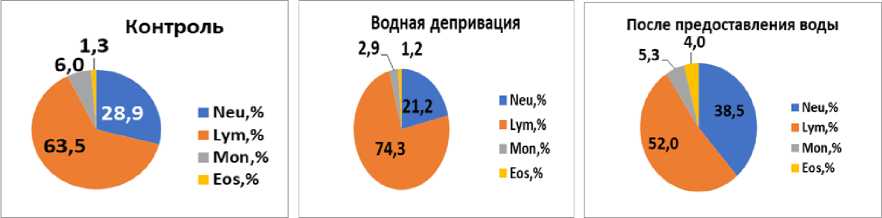
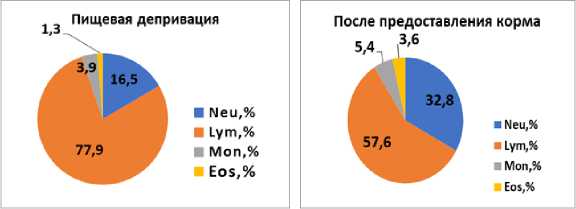
Рисунок 2 – Процентное содержание в крови крыс нейтрофилов (Neu),%, лимфоцитов (Lym), %, моноцитов (Mon), эозинофилов (Eos),% при водной и пищевой депривации, а также после подкрепления
Известно, что количество нейтрофилов, которые ранее традиционно считались первой линией защиты от инфекций и практически не рассматривались в контексте регуляции обмена веществ, может меняться в зависимости от циркадных ритмов и метаболических состояний [25].
В нейтрофилах во внутриклеточных гранулах и везикулах хранятся белки, которые при стимуляции нейтрофилов перемещаются на поверхность клетки и высвобождаются в фагоцитарные вакуоли или во внеклеточное пространство, среди этих белков основные - протеолитические ферменты, в том числе сериновые протеазы, которые являются основными компонентами и высвобождаются в очагах воспаления [26]. В последние годы стало ясно, что сериновые протеазы нейтрофилов действуют как регуляторы клеточной сигнализации и иммунной регуляции [27]. Так, показано, что сериновые протеазы, вырабатываемые нейтрофилами, влияют на активность PAR2, либо сигнализируя о воспалении усиливая их активацию, либо подавляют активность PAR2, через обезоруживание рецептора [28]. Введение СИТ на фоне метаболического стресса приводит к уменьшению количества нейтрофилов и тем самым свидетельствует о уменьшении интенсивности воспалительного ответа за счет снижения активности трипсина в кро- ви на фоне жажды и голода [17].
Значимое снижение количества моноцитов на фоне введения СИТ в наших исследованиях может быть связано со снижением активности PAR2, что согласуется с данными, где дефицит PAR2 связан с ослаблением атеросклероза и снижает прогрессирование поражений сосудов за счет подавления инфильтрации моноцитами [29].
Важно отметить, что процентное содержание эозинофилов не продемонстрировало достоверных изменений в условиях метаболического стресса, вызванного жаждой и голодом. Последующее предоставление воды и корма привело к статистически значимому увеличению уровня нейтрофилов на 33% (p<0,05) и 14%, а также к повышению уровня эозинофилов в 3,1 (p<0,05) и 2,8 раза (p<0,05) по сравнению с контрольными значениями (рис.2).
Выводы. Таким образом, можно полагать, гематологические показатели крови – одни из информативных показателей в оценке уровня адаптации крыс в условиях метаболического стресса, а введение СИТ позволяет уменьшить негативные последствия голода и жажды.
Описанные изменения клеточного состава крови отражают модулирующее воздействие иммунных процессов при компенсации метаболических изменений, связанных с жаждой и голодом.
