
Хищные птицы как агенты тафоценоза остатков мелких млекопитающих плейстоцена в пещере Цагаан-Агуй, Монголия

Журнал: Археология, этнография и антропология Евразии @journal-aeae-ru
Рубрика: Палеоэкология. Каменный век
Статья в выпуске: 4 т.52, 2024 года.
Бесплатный доступ
Статья посвящена реконструкции влияния хищных птиц на тафоценоз мелких млекопитающих в пещере Цагаан-Агуй и определению состава последних для климатической и палеоландшафтной характеристики окрестностей пещеры в период накопления слоев 4 и 5.1-5.3 Большого грота. Изучены скопления костей мелких млекопитающих, обнаруженные в этих слоях в 2022-2023 гг. (раскоп 2) и связанные, вероятно, с периодическим функционированием гнезд крупных пернатых хищников в потолке пещеры. С помощью статистических методов (вычисления выполнены в программной среде R) в сочетании с визуализацией распределения костей определены границы скоплений и объяснены различия в концентрации костных остатков между литологическими слоями. Прослежено влияние на осадконакопление отверстия в потолке пещеры («органной трубы») над раскопом 2, служившего источником поступления красноцветных отложений с поверхности известнякового массива. Установлено, что хищные птицы сыграли основную роль в аккумуляции остатков мелких млекопитающих в слоях 4 и 5.1-5.3. Сосредоточение на одном участке костей мелких животных разных видов свидетельствует о том, что они не связаны с жизнедеятельностью этих животных в пещере и преимущественно поступали как охотничья добыча. Таксономический состав млекопитающих, остатки которых найдены в слоях 4 и 5.1-5.3, позволяет говорить о стабильности палеоклиматических условий во время их аккумуляции, несмотря на значительный перерыв в осадконакоплении; преобладают представители открытых полупустынных ландшафтов или сухих степей с выходами скал.
Похожие статьи в разделе Археология
Короткий адрес: https://sciup.org/145147464
IDS: 145147464 | УДК: 902/904+567/569 | DOI: 10.17746/1563-0102.2024.52.4.029-038
Raptorial birds as taphonomic agents for small mammal remains in Pleistocene deposits at Tsagaan Agui Cave, Mongolia
The study assesses the role of raptorial birds in the formation of small mammal taphocoenosis at Tsagaan Agui Cave in the Gobi Altai region of Mongolia and reconstructs paleoclimatic conditions there through the composition of small mammalian remains in layers 4 and 5.1-5.3 of the cave’s Main Chamber. Concentrations of small mammal bones were revealed in these layers in excavation pit 2 during our 2022 and 2023 field seasons. We hypothesize that these concentrations are correlated with nests of large raptorial birds in the ceiling of the cave. We employed mathematical statistics, the R software environment, and generated graphs to reveal the boundaries of these concentrations and explain differences in the patterns of their accumulation between lithological layers. Sedimentation in excavation pit 2 was disturbed by water inflowing from a chimney in the cave ceiling, which was the source of red sediments from the surface of the surrounding limestone massif. Our results indicate that raptorial birds played a pivotal role in the accumulation of small mammal remains in layers 4 and 5.1-5.3. These concentrations, located in only one area, suggest that they are the remains of prey species rather than resultingfrom the activity of these animals inside the cave. The taxonomic composition of the small mammals recovered from Tsagaan Agui layers 4 and 5.1-5.3 indicates stable climatic conditions during their accumulation despite a considerable hiatus in the sedimentation cycle. Most species in these concentrations are inhabitants of open stony semidesert landscapes or dry steppes with exposed cliffs.
Текст научной статьи Хищные птицы как агенты тафоценоза остатков мелких млекопитающих плейстоцена в пещере Цагаан-Агуй, Монголия
Тафоценоз пещеры Цагаан-Агуй является уникальным источником палеонтологических данных для реконструкции поведения животных и человека, эволюции видов и изменений внутри фаунистического комплекса Гобийского Алтая в плейстоцене. В пещере выделено 13 слоев во Входном гроте, 14 в Большом гроте и на Предвходовой площадке. Отложения в Большом гроте содержат археологический материал, относящийся к верхнему (слои 2.1–3) и среднему (слои 4–14) палеолиту. Остатки мелких млекопитающих с этого памятника ранее никогда не становились предметом исследования. В данной работе рассматриваются скопления костей грызунов (Rodentia) и зайцеобразных (Lagomorpha), связанные с деятельностью хищных птиц и выявленные с помощью планиграфи-ческого анализа и методов статистики. Подобные явления редки в пещерных летописях в силу специфики накопления отложений, поэтому пернатые хищники редко становились объектами исследования в качестве агентов тафоценозов пещер – животных, влияющих на аккумуляцию, сохранность и целостность тафономических остатков [Lyman, 2002; Wolverton, Nagaoka, 2018]. Наиболее легко выявляемые филиновые ниши [Оводов, Мартынович, Надаховский, 1998] известны вокруг пещеры Цагаан-Агуй в современности [Martynovich, 2002]. Чаще филины обживают небольшие скальные навесы и гроты, однако в Австрии вид Bubo Bubo и представители орлиных являлись агентами плейстоценовых тафоценозов нескольких пещер [Fladerer et al., 2023]. С их деятельностью связано накопление остатков зайцев и пищух. В Португалии известны копролиты бородача-ягнятника (Gypaetus barbatus) в отложениях навеса Лагар-Велью, который интерпретируется как место гнездования этого хищника ок. 29 000 кал. л.н. [Sanz et al., 2023]. Костный материал, происходящий из его погадок и копролитов, указывает на потребление мелких и средних копытных. В большинстве случаев изучение птиц в пеще- рах ограничивается таксономией, без реконструкции их влияния на тафоценоз. Последнее важно для понимания роли различных агентов – хищных птиц и млекопитающих (гиена, волк, лисица, соболь, кошачьи), а также человека – в аккумуляции костных остатков и их возможных модификациях в пещерных археологических памятниках. Другим важным аспектом является реконструкция состава мелких млекопитающих в изучаемом микрорегионе, поскольку пернатые хищники были коллекторами фауны с достаточно обширных территорий вокруг пещер. Мы предполагаем, что хищные птицы имели гнезда в сквозной полости («органной трубе») в потолке пещеры Цагаан-Агуй, начало функционирования которых приходится на время накопления слоев 4–5.1 раскопа 2 в Большом гроте, и основная аккумуляция остатков мелких млекопитающих в этих стратиграфических подразделах связана с оставленными ими погадками. На этапе формирования слоя 3 поступление воды и осадочного материала из «органной трубы» стало интенсивным, что прослеживается по мощности связанных с этими процессами отложений. Очевидно, поэтому гнезда здесь больше не обустраивались. Пространство под отверстием фиксируется в слоях как компактное по площади скопление костей преимущественно зайцев и грызунов, в т.ч. из желудочно-кишечного тракта (далее – ЖКТ), без копролитов, а подобная диета характерна для хищных птиц более мелких, чем стервятники – крупные падальщики, в рацион которых входят средние копытные [Ibid.]. Остатки зайцев в пещере, вероятно, также связаны с деятельностью лисиц и человека. В данной работе мы доказываем функционирование гнезд в «органной трубе» пещеры Цагаан-Агуй, объясняя специфику аккумуляции фаунистических остатков с помощью методов планиграфии и математической статистики. Таксономическое определение мелких млекопитающих и земноводных позволило провести предварительную реконструкцию палеогеографических условий в окрестностях пещеры.
Материалы и методы
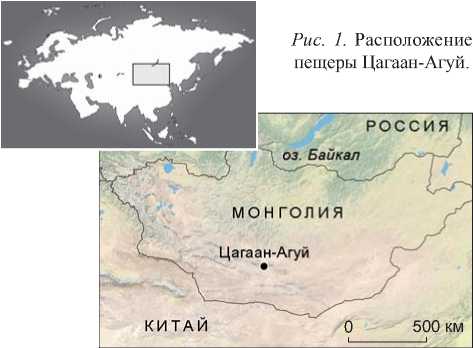
Пещера Цагаан-Агуй расположена в Баянхонгор-ском аймаке в 42 км к северо-востоку от сомонного центра Баянлиг (44°42ʹ53.3ʹʹ с.ш., 101°10ʹ13.4ʹʹ в.д.), в известняковом массиве Цагаан-Цахир, входящем в горную систему Гобийского Алтая, к юго-западу от хр. Бага-Богд-Уул (рис. 1). Эта территория в южной части Монголии граничит с Северо-Западным Китаем. Она населена фауной пустынь и полупустынь, характеризуется резким перепадом дневных и ночных температур. Пещера изучалась в 1987–1989 и 1995– 2000 гг. [Деревянко, Петрин, 1995; Деревянко и др., 2000]. В 2021–2023 гг. нами были исследованы отложения в раскопе 2 Большого грота на площади 4 м2 (кв. A’18, B’18, A’19, B’19), откуда поступил основной материал, анализируемый в статье. Стратиграфия раскопа, исходя из профиля примыкающего продольного разреза пещеры, включает 13 слоев и прослоев (слои 1–8), однако отложения на данный момент пройдены до слоя 8. Важным фактором тафоцено-за в этой части пещеры являлась «органная труба» – сквозная субвертикальная полость в потолке пещеры, выходящая на поверхность известнякового массива (рис. 2). Образование таких объектов связывают с раз-
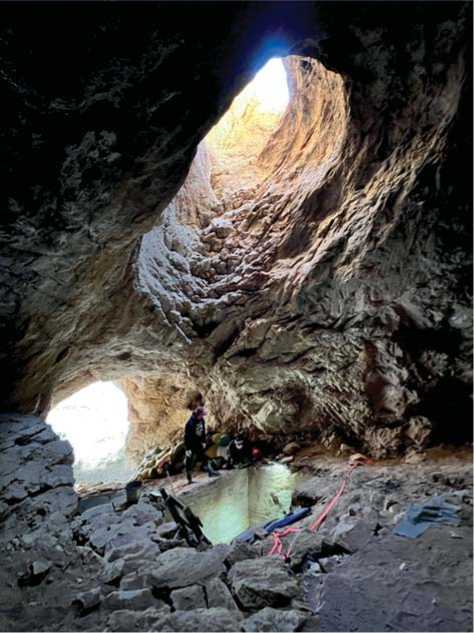
Рис. 2. Вид по направлению восток–запад на раскоп 2 и «органную трубу» над ним в Большом гроте пещеры Цагаан-Агуй.
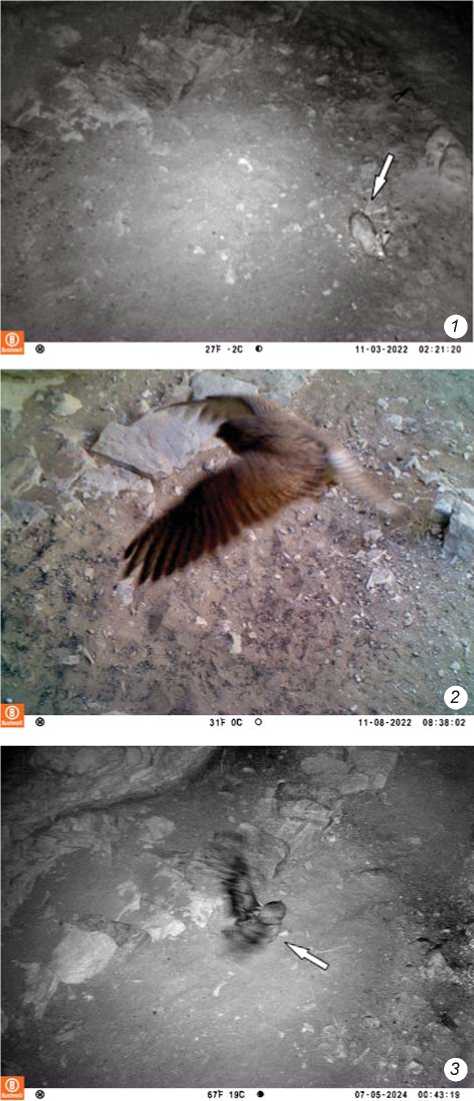
Рис. 3 . Снимки, сделанные в 2022–2023 гг. фотоловушкой Bushnell Trophy Cam HD Agressor Low-Glow 16MP, установленной на Предвходовой площадке.
1 – заяц-толай Lepus tolai ; 2 – самка пустельги Falco sp. (tinnunculus?) ; 3 – представитель семейства совиных Strigidae.
личными карстовыми процессами [Ford, Williams, 2007, p. 41; James, Banner, Hardt, 2014; Лаврова, 2020]. Следы предполагаемого функционирования гнезд зафиксированы в среднепалеолитических слоях 4 и 5.1–
5.3, между накоплением которых был значительный перерыв. Четвертый является нижним в эоловой пачке слоев 2.1–4. Он был погребен очень быстро, о чем говорят кости животного семейства Equidae, найденные в сочленении, а также характер залегания каменных артефактов. В кв. А’18 и В’18 на время аккумуляции слоев 2.1–4 приходится активное поступление воды и осадочного материала через «органную трубу». Отложения имеют ярко-оранжевый цвет из-за высокого содержания поступающих снаружи красноцветов, плотно сцементированы, включают крупные карбонатные стяжения и являются археологически и палеонтологически немыми. Граница этих отложений с непотревоженными слоями маркируется марганцевой линзой, прослеживающейся и горизонтально, и вертикально.
Слой 5 раскопа 2 в ходе работ 2022–2023 гг. был разделен на три отдельные литологические структуры – 5.1, 5.2 и 5.3. Он является верхним в пачке отложений, которые подвергались размыванию, не связанному с «органной трубой». Полость в потолке уже существовала на этапе формирования слоев 5.1–5.3, однако поступления из нее были незначительными, а примесь красноцветных отложений с поверхности массива полностью отсутствует. Граница слоев 4 и 5.1 нечеткая, несмотря на их различный генезис: отмечаются линзы, которые видны в плане, но не заметны на профилях стенок раскопа. Они могут указывать на размыв более поздних отложений до аккумуляции слоя 4.
В непотревоженных слоях раскопа 2 в пещере Ца-гаан-Агуй, помимо скелетных остатков, присутствуют копролиты гиен, а также кости, переработанные в ЖКТ гиен и хищных птиц. Палеонтологический анализ ко стей из ЖКТ, а также тип эрозии на поверхностях костных фрагментов позволили разделить их на переваренные гиенами и хищными птицами. У гиен диета состояла из крупных, реже среднеразмерных копытных. Выявлены ко сти лошадей, горных козлов, шерстистого носорога и неопределенного быка. Крупные хищные птицы также обитали в пещере и ее окрестностях. В слое 3 был найден клюв представителя семейства орлиных (?). На данный момент они не обитают в пещере постоянно, однако мелкие птицы гнездятся в «органной трубе», и остатки их жизнедеятельности попадают на кв. B’19 и разносятся на соседние участки. Чтобы отслеживать современную фауну, нами была установлена фотоловушка, которая зафиксировала посещение пещеры пустельгой (небольшая хищная птица отряда соколообразных), представителем семейства совиных, зайцем-толаем и пищухой (рис. 3).
Для подтверждения выдвинутой гипотезы о существовании гнезд в «органной трубе» пещеры над кв. В’19 нами была изучена фауна мелких млеко- питающих по материалам раскопок квадратов В’18 (слой 4), А’19 и В’19 (слои 5.1–5.3) в 2021 и 2022 гг. Для отбора фаунистических остатков вся извлеченная порода просеивалась, промывалась через сита с размером ячеи 1,4 мм и сушилась. Готовый концентрат (матрикс) просматривался в полевых условиях под бинокулярным микроскопом Nikon. Дополнительно в лаборатории зубы грызунов очищались в ультразвуковой ванне ПСБ-Галс. Дальнейшие тафономические и морфологические исследования материала проводились с использованием стереомикроскопа Leica MZ16 (с цифровой камерой AxioCam ERc 5s). Установлена таксономическая принадлежность 368 зубов и челюстей мелких млекопитающих к трем отрядам – Anura,
Lagomorpha, Rodentia (см. таблицу ). Ископаемый костный материал сильно раздроблен и представлен в основном изолированными зубами. Поэтому особое внимание уделялось фиксации посмертных изменений поверхностей костей и зубов [Andrews, 1990, p. 1–22, 45–88; Fernández-Jalvo, Andrews, 1992; López, Chiavazza, 2019; Royer et al., 2019].
Определимые крупные кости посткраниальных скелетов зайцев, пищух, тушканчиков и хомяков из кв. B’19 и А’19 были изучены и посчитаны отдельно в рамках палеонтологического анализа всех остатков млекопитающих. Они отсутствуют в таблице, но включены в базу данных для построения карт плотности находок. Некоторые кости зайца были из-
Видовой состав мелких млекопитающих и земноводных по одонтологическим материалам из слоев 4 и 5.1–5.3 в пещере Цагаан-Агуй
|
Вид / семейство |
Слой 4 |
Слои 5.1–5.3 |
|||
|
Кв. В’18 |
Кв. А’19 |
Кв. В’19 |
Кв. А’19 |
Кв. В’19 |
|
|
Ranidae – настоящие лягушки |
– |
1 |
– |
– |
2 |
|
Lepus sp. L. – зайцы |
– |
– |
– |
– |
2 |
|
Lepus cf. tolai Pall. – заяц-толай |
– |
– |
– |
– |
3 |
|
Ochotona sp. Link – пищухи |
– |
3 |
16 |
2 |
55 |
|
Ochotona cf. daurica Pall. – даурская пищуха |
– |
– |
– |
5 |
2 |
|
Ochotona daurica Pall. – даурская пищуха |
– |
– |
– |
– |
8 |
|
Spermophilus sp. F. Cuv. – суслики |
– |
– |
– |
– |
5 |
|
Dipodidae – тушканчиковые |
– |
– |
– |
– |
13 |
|
Allactaga sp. F. Cuv – земляные зайцы |
– |
2 |
10 |
– |
15 |
|
Allactaga cf. sibirica Forst. – монгольский тушканчик |
– |
– |
4 |
– |
7 |
|
Allactaga cf. bullata Allen – гобийский тушканчик |
– |
1 |
2 |
– |
18 |
|
Dipodinae – трехпалые суслики |
– |
1 |
– |
– |
– |
|
Dipus sp. Gmel. – мохноногие тушканчики |
– |
1 |
4 |
– |
19 |
|
Dipus sagitta Pall. – мохноногий тушканчик |
– |
– |
13 |
– |
– |
|
Cricetidae – хомяковые |
– |
– |
2 |
– |
9 |
|
Cricetulus sp. Milen-Edw. – серые хомячки |
3 |
1 |
15 |
– |
39 |
|
Cricetulus cf. migratorius Pall. – серый хомячок |
– |
– |
– |
– |
5 |
|
Allocricetulus sp. Argyr. – эверсманновы хомячки |
– |
1 |
– |
– |
– |
|
Ellobius cf. tancrei Pall. – обыкновенная слепушонка |
– |
– |
– |
– |
1 |
|
Meriones sp. Ill. – малые песчанки |
– |
– |
– |
– |
1 |
|
Alticola sp. Blanf. – скальные полевки |
– |
3 |
3 |
1 |
16 |
|
Alticola cf. argentatus Severtz. – серебристая полевка |
– |
– |
– |
– |
3 |
|
Alticola cf. barakshin Bannikov – гоби-алтайская полевка |
– |
– |
– |
– |
1 |
|
Eolagurus sp. Argyr – желтые пеструшки |
– |
1 |
1 |
– |
16 |
|
Eolagurus luteus Eversm. – желтая пеструшка |
– |
3 |
7 |
– |
9 |
|
Eolagurus przewalskii Büchner – пеструшка Пржевальского |
– |
– |
– |
– |
6 |
|
Eolagurus cf. simplicidens – ископаемая пеструшка |
– |
– |
– |
– |
2 |
|
Microtus sp. Schrank – серые полевки |
– |
– |
– |
1 |
6 |
|
Всего |
3 |
18 |
77 |
9 |
263 |
влечены индивидуально, но основная их масса получена в результате просева отложений. В верхней части разреза (слои 1–3) эти находки единичны. Большинство определенных ко стей зайца отно сится к слоям 4 (933 экз.) и 5.1–5.3 (612 экз.), в нижележащих 6-м и 7-м их на порядок меньше (66 и 21 экз.). Скопление костей в кв. В’19 находилось на границе слоев 4 и 5.1. Его основанием служили валунчики известняка, координаты которых были зафиксированы в ходе раскопок, что позволило нанести их очертания на план и профиль (рис. 4, а , б ).
Чтобы изучить, как кости зайца распределены в отложениях пещеры, мы нанесли на профиль (рис. 4, а ) и план (рис. 4, б ) все точки снятых координат просеянного грунта, где определены костные остатки зайца, а также кости этого животного, изъятые отдельно, что позволило получить общее представление о распределении находок. Согласно методике раскопок, каждый квадратный метр делился на четыре подквадрата, получавшие дополнительное цифровое обозначение (рис. 4, б ), соответственно грунт собирался для просева с площади 0,25 м2.
Распределение костей зайца внутри слоев 4 и 5.1– 5.3 было исследовано с помощью построения карт плотно сти находок и статистической процедуры
«оценка плотности ядер» («kernel density estimation») [Beardah, Baxter, 1996; Ларионова, 2019, с. 49; Spagnolo et al., 2020]. Так как большинство костей зайца получено в результате просева грунта, подсчет их количества на единицу площади (подквадрат 0,5 × 0,5 м) является адекватным методом. Координаты находок внутри подквадрата были заданы случайным образом функцией Excel СЛУЧМЕЖДУ. На основе этого набора данных строились карты плотности и рассчитывалась плотность ядер со шкалой 0,25 м2. Вычисления производились в программной среде R с помощью пакета spatstat [R Core Team, 2023; Baddeley, Turner, 2005].
Результаты
Слой 4, предположительно включающий погадки из гнезд, датируется ок. 45 000 кал. л.н. Хронологические рамки аккумуляции нижележащего слоя 5 остаются неясными, но, вероятнее всего, он существенно древнее: по итогам исследований в 1995– 2000 гг. для него была получена экспериментальным радиотермолюминесцентным методом дата 227 ± ± 57 тыс. л.н. [Деревянко и др., 2000]. Разный воз-
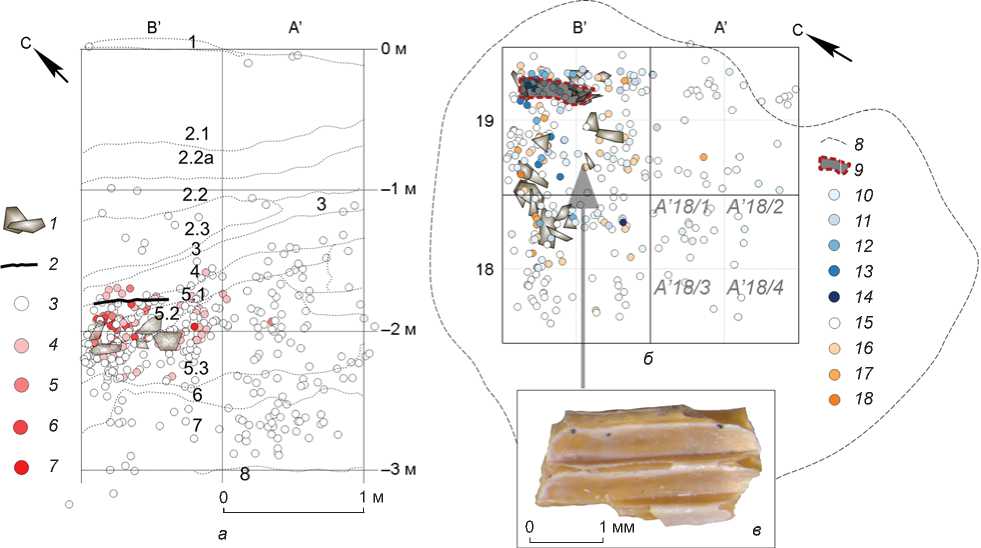
Рис. 4. Стратиграфический профиль восточной стенки ( а ) и план ( б ) раскопа 2 с проекцией отснятых точек просеянного грунта и обозначением количества костей зайца; зуб мелкого млекопитающего со следами воздействия пищеварительных ферментов на эмаль ( в ).
1 – крупные камни; 2 – верхний контур скопления погадок на профиле; 3–7 – количество костей зайца в просеянном грунте: 3 – 1–4, 4 – 5–15, 5 – 16–32, 6 – 33–68, 7 – 69–117; 8 – проекция отверстия «органной трубы»; 9 – верхний контур скопления погадок на плане; 10–14 – количество костей зайца, слой 4: 10 – 1–4, 11 – 5–11, 12 – 12–32, 13 – 33–52, 14 – 53–117; 15–18 – количество костей зайца, слои 5.1–5.3: 15 – 1–4, 16 – 5–13; 17 – 14–40, 18 – 41–68.
раст имеют и археологические комплексы, обнаруженные в этих слоях. Материалы слоя 4 относятся к финалу среднего палеолита, тогда как нижележащие комплексы отличаются более архаичным обликом, в т.ч. биполярным расщеплением и ранними формами леваллуазской технологии [Хаценович и др., 2022].
Костный материал из исследованных отложений имеет высокую степень раздробленности. Часть зубов зайцеобразных и грызунов семейств тушканчиковых и хомяковых сохранилась во фрагментированных нижних челюстях, остальные представлены в изолированном виде. Целые черепа отсутствуют. Цвет костей неоднородный, от желто- до пепельнокоричневого, на некоторых имеются минеральные образования в виде черных пятен. Определить образцы мелких млекопитающих до вида и дифференцировать верхне- и среднеплейстоценовые формы пока затруднительно ввиду малочисленности выборки и бедности сравнительной коллекции.
Важно отметить, что на большинстве зубов фиксируются изменения поверхности эмали от воздействия желудочной кислоты плотоядных млекопитающих или птиц (рис. 4, в ). У таких экземпляров наблюдаются частично растворенная эмаль,
в
г
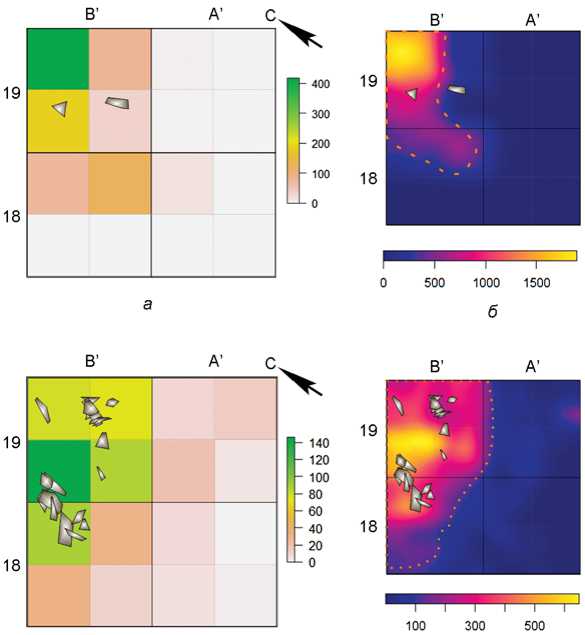
Рис. 5. Результаты анализа плотности распределения костей зайца в слоях 4 ( а , б ) и 5.1–5.3 ( в , г ).
а , в – карты плотности по подквадратам 0,5 × 0,5 м; б , г – оценка плотности ядер.
шероховатая поверхность и отчасти округлая форма. Следовательно, остатки ископаемых грызунов в кв. А’19 и В’19 скапливались в результате жизнеде-
Судя по полученным результатам, скопление погадок в слое 4 сохранилось наилучшим образом. Начало функционирования «органной трубы» привело
ятельности хищников.
Ископаемые остатки распределены по слоям и квадратам неравномерно. Наибольшее их количество найдено в слоях 5.1–5.3 кв. В’19. Отмечается значительная доля тушканчиковых и пищух – соответственно 27 и 24 % от находок в этом квадрате. Вероятно, они играли немалую роль в рационе пернатых и четвероногих хищников. Большое количество остатков тушканчиковых и пищух указывает и на многочисленность этих млекопитающих.
Распределение ко стей зайца в слоях 4 и 5.1–5.3 различается значительно, несмотря на общий генезис этих ископаемых остатков, связанный с погадками хищных птиц. В слое 4 их концентрация наиболее высока, и абсолютное большинство зафиксировано в подквадрате В’19/1 (рис. 5, а , б ). В слоях 5.1–5.3 скопление остатков зайца присутствует, но его центр смещен к западу (кв. В’19/3) и костей в нем почти в 3 раза меньше, чем в центре скопления в слое 4 (ср. рис. 5, а и в , б и г ). Кроме того, в слоях 5.1–5.3 они встречаются почти по всей площади раскопа (рис. 5, в ).
к напластованию «пустых» красноцветных отложений в кв. В’18, чем, вероятно, объясняется его форма (рис. 5, а , б ). В слоях 5.1–5.3, сформированных в ак-вальной обстановке, влажная среда способствовала размыванию скопления остатков мелких млекопитающих, их распространению на большую площадь. Наличие крупных камней в основании скопления препятствовало его полному разрушению, но небольшое количество костей зайца оказалось за его пределами (кв. В’18/2–4, А’19, А’18/1, А’18/3), вероятно, из-за оплыва.
Обсуждение
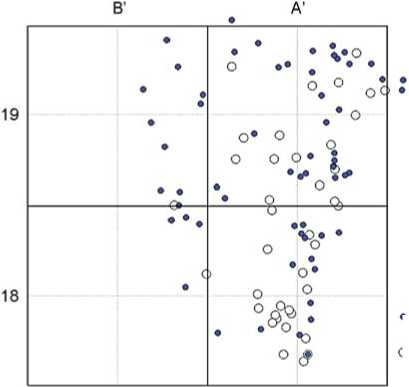
Сопоставление зон наибольшей концентрации костей зайца, а также скопления камней в слоях 5.1–5.3 позволяет предложить следующую реконструкцию (рис. 6, а ). Основная часть гнезд находилась над подквадратами В’19/1 и В’19/3, в отложениях которых сконцентрировалось большинство костей мелких жи-
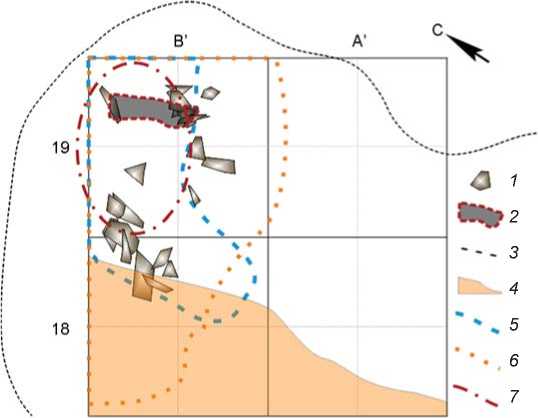
Рис. 6. Реконструкция расположения гнезд над раскопом 2 и скоплений остатков мелких млекопитающих в слоях 4 и 5.1–5.3 ( а ), план распределения костей зайца в слое 6 ( б ).
1 – крупные камни; 2 – верхний контур скопления погадок; 3 – проекция отверстия «органной трубы»; 4 – отложения, поступившие из «органной трубы» в слой 4; 5 , 6 – границы скоплений соответственно в слоях 4 и 5.1–5.3; 7 – реконструкция расположения гнезд над раскопом 2; 8 – каменные артефакты в слое 6; 9 – кости зайца в просеянном грунте (1–4 шт.).
•8
О 9
вотных. Наиболее четкая граница зоны их концентрации в ходе раскопок фиксировалась с юго-восточной стороны (кв. В’19/1 и В’19/3), где сохранилось скопление камней. Юго-западная часть этой зоны в слое 4 оказалась срезана, что, по-видимому, связано с намывом из «органной трубы», привнесшим сцементированные ярко-оранжевые отложения в кв. В’18 (рис. 6, а ). Содержимое нижней части скопления погадок, уходящей в более увлажненные слои 5.1–5.3, было разнесено по большей площади. Этим, вероятно, объясняется сравнительно низкая концентрация костей зайца в скоплении и за его пределами. Размыв содержимого погадок мог происходить как в сторону выхода из пещеры, так и к ее стене – согласно наклону отложений. Еще одним фактором дисперсии концентрации костей по площади раскопа 2 могла быть активность лисицы, количество остатков которой возрастает в слоях 5.1–5.3. Результаты анализа позволяют предположить несколько вариантов формирования исследуемого скопления остатков мелких млекопитающих. Но наиболее вероятной является их аккумуляция вследствие бытования гнезд хищных птиц на протяжении накопления слоев 4 и 5.1–5.3. Таким образом, сосредоточение костей зайца в слоях 4 и 5.1–5.3 имеет один и тот же механизм, а различия в распределении связаны с постдепозиционными изменениями, в меньшей степени затронувшими слой 4.
Возможно, именно тяжело е скопление камней в слоях 5.1–5.3 в сочетании с высокой влажностью привело к деформации нижележащего песчаного слоя 6, что фиксируется не только на стратиграфи- ческом профиле, но и в распределении находок: все они, включая кости зайца, одна из которых несет возможные следы разделки тушки человеком, смещены в сторону центральной оси пещеры, оставляя линию квадратов В’ практически пустой (рис. 6, б).
Анализ остатков мелких млекопитающих позволил провести предварительные палеогеографические реконструкции для времени накопления слоев 4 и 5.1– 5.3. Как известно, грызуны и зайцеобразные благодаря своим биологическим и экологическим особенностям (относительно короткий цикл жизни, способность достигать высокой численности, тонко реагировать на изменения окружающей среды и др.) дают ценный и убедительный материал для характеристики условий их существования [Ербаева, 1970, с. 27–28].
Общий облик ископаемой фауны грызунов и зайцеобразных в окрестностях пещеры Цагаан-Агуй сходен с современным. Соотношение видов мелких млекопитающих указывает на то, что в среднем – позднем неоплейстоцене на территории Центральной Монголии среди них преобладали представители открытых полупустынных ландшафтов или сухих степей с выходами скал.
В Монголии тушканчики населяют степи и полупустыни разнообразных типов, избегая мест с густым травостоем. В местах, где полупустыня переходит в пустыню, сибирский тушканчик придерживается степных участков и полностью исчезает в настоящей пустыне [Банников, 1954, с. 205], но встречается в глинистых и щебнистых [Млекопитающие Казахстана, 1978, с. 250–251]. Гобийский тушканчик также обитает в каменистой солянковой и кустарниковой пустыне, избегая песков [Банников, 1954, с. 224]. Мохноногий тушканчик является характерным обитателем барханных песков. Он селится не только на голых барханах, но и на заросших кустарниками песках [Виноградов, 1937, с. 155]. Даурская пищуха – типичный представитель открытых полупустынных ландшафтов. Обитает в разнообразных степях, наиболее многочисленна в разнотравных и ковыльно-полынных. Наличие полыни в Монголии в некоторой степени определяет численность даурской пищухи [Банников, 1954, с. 184].
Интерес представляют остатки желтой пеструшки, которая явно была многочисленна в окрестностях пещеры в конце среднего плейстоцена. В слое 5.3 найдена нижняя челюсть среднеплейстоценовой формы Eolagurus cf. simplicidens . От современных Eolagurus luteus они отличаются широко слитыми треугольниками в основании параконида первого моляра. В настоящее время пеструшка спорадически встречается по песчаным массивам в Гоби и до оз. Увс-Нур на севере [Там же, с. 296], хотя еще в XX в. этот вид был вполне обычен в прикаспийских и казахстанских пустынях и полупустынях. Во второй половине XIX в. желтая пеструшка полностью вымерла в большинстве районов Казахстана. Ее основной современный ареал сосредоточен на северо-западе Китая, в районе Синьцзяна [Громов, Ербаева, 1995, с. 428– 429]. Известно, что желтая пеструшка чутко реагирует на изменения климата. Ее размножение и активность напрямую зависят от годовых температуры и количества осадков [An et al., 2023]. Для Северного Синьцзяна желтая пеструшка является ключевым видом пустынной степи. Вероятно, современные погодные условия в Монголии не благоприятствуют распространению этого вида.
Скальные полевки, о статки которых найдены в пещере, обычно заселяют горы и мелкосопочни-ки, обязательно с выходами скал (камней). Живут они в щелях скал, норы почти не роют [Млекопитающие Казахстана, 1978, с. 209]. Найденные о статки настоящих лягушек указывают на присутствие водоема в некотором удалении от пещеры. Остальные выявленные роды – суслики, хомяковые и зайцы – еще раз подтверждают существование открытых сухих ландшафтов.
Выводы
Таким образом, исследованные материалы слоев 4 и 5.1–5.3 кв. А’19 и В’19 в пещере Цагаан-Агуй свидетельствуют о сходстве состава фауны мелких млекопитающих в позднем неоплейстоцене с современным. Представители большинства определенных родов и видов в настоящее время населяют окрестности этой пещеры. Разнообразие мелких млекопитающих привлекало различных хищных птиц, которые селились в скальных нишах и навесах, а также в «органной трубе» пещеры, оказывая существенное влияние на ее тафоценоз. Полученные данные указывают на то, что крупные пернатые хищники сыграли основную роль в аккумуляции остатков мелких млекопитающих в слоях 4 и 5.1–5.3 раскопа 2. Так как на одном участке сконцентрированы кости представителей разных видов (кв. В’19), мы предполагаем, что они не связаны с жизнедеятельностью этих животных в пещере и преимущественно происходят из погадок крупных хищных птиц, гнездившихся в «органной трубе» над раскопом 2. В слоях 5.1–5.3 часть костей могла быть также принесена или растащена лисицей, поскольку количество ее остатков здесь возрастает. Интересно, что скопление погадок не было потревожено гиенами и людьми, заселявшими пещеру в это время. Таксономический состав млекопитающих указывает на относительно стабильные палеоклиматические условия в период аккумуляции слоев 4 и 5.1–5.3, несмотря на значительный перерыв в о садконакоплении. В это время господствовали сухие щебнистые литофильные полупустыни с небольшими водоемами, способными поддерживать популяцию лягушек. Современный климат в окрестностях массива Цагаан-Цахир засушливее, водоемов нет, представленность видов мелких млекопитающих ниже, а земноводные отсутствуют.
Исследования проведены в рамках проекта Российского научного фонда № 19-78-10112-П.
